KISA ARAŞTIRMA RAPORU makalesi
Front. Ecol. Evol., 12 Kasım 2026
Sec. Filogenetik, Filogenomik ve Sistematik
Cilt 14 – 2026 | https://doi.org/10.3389/fevo.2026.1983890
- CY
Chang Yang 1,2
- XZ
Xiang Zhang 3,4
- JL
Jianlong Li 3,4
- ZZ
Zhen Zhang 1,5
- YG
Yongjun Guo 2
- QX
Qiang Xu 3,4
- HW
Haiyan Wang 1,5*
- HY
Haolin Yu 1† *
-
1. Çin Bilimler Akademisi Deniz Bilimleri Enstitüsü, Qingdao, Çin
-
2. Tianjin Tarım Üniversitesi Balıkçılık Fakültesi, Tianjin Su Ekolojisi ve Akvakültür Ana Laboratuvarı, Tianjin, Çin
-
3. Hainan Üniversitesi Deniz Biyolojisi ve Balıkçılık Fakültesi, Haikou, Çin
-
4. Güney Çin Denizi Deniz Kaynaklarının Kullanımı Ana Laboratuvarı, Hainan Üniversitesi, Haikou, Çin
-
5. Deniz Organizmaları Taksonomisi & Filogeni Pilot Laboratuvarı, Çin Bilimler Akademisi Deniz Bilimleri Enstitüsü, Qingdao, Shandong, Çin
Makale metrikleri
Özet
Yapay resifler, balıkçılık kaynaklarını artırmak ve bozulan deniz habitatlarını geri kazandırmak için yaygın olarak kullanılmakta, ancak tropikal deniz çiftlikleri sistemlerinde biyolojik toplulukların resif uzaklığına yönelik uzamsal tepkilerine dair nicel bilgiler sınırlı kalmaktadır. Bu çalışma, Çin’in Hainan Eyaleti, Sanya konumundaki Wuzhizhou Adası deniz çiftliğinde farklı av gruplarının resif uzaklığına yönelik uzamsal tepki mesafelerini araştırmıştır. 2019-2021 yılları arasında 28 istasyonda gerçekleştirilen beş araştırmaya dayanarak, oltalama, ağ ağı, tuzak, dalış yoluyla örnekleme ve taban trawlingi olmak üzere beş örnekleme yöntemiyle toplam 263 av türü toplanmıştır. Avlar; toplam av, resife bağımlı, resife yaklaşan, kum-labya taban tercih eden ve güçlü yüzen olmak üzere beş gruba ayrılmıştır. Genelletilmiş ekpolinom modelleri (GAM’ler), yanıt değişkeni olarak Shannon-Wiener çeşitliliği (H), Pielou dengeliliği (J), Margalef zenginliği (d) ve Göreli Önem Endeksi (IRI) kullanılarak uyarlanmıştır. GAM’ler, topluluk indeksleri ile resif uzaklığı arasındaki ilişkileri karakterize etmek için kullanılmış; örnekleme yöntemine düzeltilmiş modeller ise örnekleme heterojenliğine duyarlılığı değerlendirmek amacıyla yürütülmüştür. Güçlü yüzen grubunda, incelenen tüm indeksler için resif uzaklığı düzleştirme fonksiyonları anlamlı olmamış; hiçbir geçiş tepki mesafesi bildirilmemiştir. Tahmin edilen tepki mesafeleri, toplam av grubu için 830-1120 m, resife yaklaşan grubu için 1420-1560 m ve kum-labya taban tercih eden grubu için 1100-1450 m arasında değişmekte, resife bağımlı grubu için ise tek bir geçiş tepki mesafesi olan 890 m belirlenmiştir. Bu sonuçlar, resif uzaklığına yönelik gruba özgü uzamsal tepkileri ortaya koymakta ve tropikal deniz çiftlikleri sistemlerinin uzamsal değerlendirmesi ile farklılaştırılmış yönetimi için nicel bilgi referansı sağlamaktadır.
1 Giriş
Tropikal mercan resifleri yüksek biyoçeşitliliği ve yapısal olarak karmaşık toplulukları destekler; bu topluluklar resif habitatlarını barınma, beslenme ve diğer ekolojik işlevler için kullanır (Taylor ve ark., 2017; Brandl ve ark., 2019; Ahmed ve Tamim, 2025). Dolayısıyla habitat bozulması tür bileşimini ve resifle ilişkili toplulukların mekânsal dağılımını değiştirebilir. Yapay resifler giderek habitat karmaşıklığını geri kazandırmak, balık kaynaklarını artırmak ve deniz çiftliklerini desteklemek için kullanılmaktadır; özellikle tropikal kıyı ekosistemlerinde doğal mercan resifleri ile yapay yapılar birlikte topluluk dağılımlarını şekillendirebilir (Ramm ve ark., 2021; Higgins ve ark., 2022).
Kuzey Çin Denizi’nin tropikal sularında deniz çiftlikleri ve yapay resif geri kazandırma, ekosistem iyileşmesini ve balık kaynağı artırımını desteklemek için giderek daha yaygın kullanılmaktadır. Wuzhizhou Adı, yüksek balık çeşitliliğine ve heterojen habitatlara sahip tropikal bir deniz ekosistemidir; burada yapay resif inşası, stok artırma ve mercan geri kazandırma çalışmalarına başvurulmuştur (Wang ve ark., 2024). Önceki çalışmalar, Wuzhizhou Adı çevresindeki mercan ve bentik habitatların önemli balık çeşitliliğini ve mekânsal heterojenliğini belgelemiştir ve bu geri kazandırma odaklı deniz çiftliği sisteminin ekolojik karmaşıklığını vurgulamıştır (Huang ve ark., 2020). Ancak mevcut çalışmaların çoğu tür bileşimi, bolluk, biyoçeşitlilik veya habitat durumu üzerine odaklanırken, avlanmaya dayalı topluluk yapısının resif-uzaklık gradyanı boyunca hangi mekânsal ölçekde değiştiği yeterince nicellenememiştir (Liu ve ark., 2022). Bu mekânsal tepkilerin nicellenmesi, yapay resiflerin ekolojik etkilerini değerlendirmeye ve işlevsel grupların resif habitatlarına olan mekânsal bağımlılıklarında fark gösterip göstermediğini belirlemeye yardımcı olabilir.
Önceki çalışmalar, mercan kayalıklarına yakınlığın, mercan kayalıkları ve buna komşu olmayan habitatlar boyunca balık bolluğu, tür zenginliği, topluluk bileşimi ve habitat kullanımında sürekli alansal gradyanlar oluşturabileceğini göstermiştir (Sievers ve ark., 2020; Bradley ve ark., 2024). Ekolojik eşik çalışmalarında, sürekli çevresel gradyanlar boyunca biyolojik yanıtlarda değişim noktaları veya bölgelerinin belirlenmesinin değeri vurgulanmıştır (Huggett, 2005). Burada, yakalama temelli topluluk endekslerindeki alansal değişimleri mercan kayalıklarına uzaklık gradyanı boyunca özetlemek için operasyonel bir ölçüt olarak model türetilmiş geçiş yanıt uzaklığını terimini kullanıyoruz. Bu uzaklığı, yapay-mercan kayalığı referansından dışarı doğru ilerlerken uyarlanmış topluluk yanıtındaki birincil model türetilmiş geçiş olarak tanımlıyoruz. Elde edilen uzaklık, bir topluluk endeksinde algılanabilir bir geçişi tanımlar ve veri setine ve uyarlanmış modele bağlıdır. Bu yaklaşım, önceden tanımlanmış sınıf bazlı değerlendirmeler, mercan kayalıkları ile buna komşu olmayan habitat karşılaştırmaları veya maksimum etki menzilleri bazlı değerlendirmelerden (Zalmon ve ark., 2012) farklıdır; çünkü mercan kayalıklarına uzaklığı sürekli bir değişken olarak korur ve a priori bir alansal sınır dayatmadan alansal yanıtların doğrusal olmayan biçimde karakterleştirilmesine olanak tanır. Bu ölçüt, mercan kayalıklarına yakınlığa karşı yanıtları farklılık gösterebilecek işlevsel gruplar ve topluluk endeksleri arasında karşılaştırmalara olanak tanır.
Rese yakınlığına yönelik uzaysal yanıtları nicelendirmek, topluluk indislerinin sürekli bir rese mesafe gradyanı boyunca nasıl değiştiğini ve ortaya çıkan yanıt örüntülerinin işlevsel gruplar arasında farklılık gösterip göstermediğini tahmin tiên gerektirir (Altman ve Royston, 2006). Önceden tanımlanmış mesafe sınıfları arasındaki karşılaştırmalar, uzaysal gruplar arasındaki farkları tespit edebilir; ancak yorumlamaları seçilen sınıf sınırlarına bağlıdır ve sınıflar içindeki çeşitliliği gizleyebilir. Düzenleme ve kısıtlı düzenleme, çok değişkenli topluluk bileşimini ve bunun çevresel gradyanlarla ilişkisini betimlemek için kullanışlıdır (Legendre ve Gallagher, 2001); ancak düzenleme temelli analizler çoğunlukla topluluk bileşimindeki çok değişkenli örüntüleri betimlerken, bu çalışma, model temelli geçiş yanıt mesafaları türetmek için bireysel topluluk indisleri ile rese mesafesi arasındaki açık ilişkileri gerektirir. Basit doğrusal regresyon, rese mesafesini sürekli bir tahmin edici olarak kabul eder, ancak model ölçeğinde sabit eğim varsayar; bu da doğrusal olmayan mesafe–yanıt ilişkilerini yetersiz biçimde yansıtabilir. Genel ekolojik modeller (GAM’ler), bu çalışma için uygun bir çerçeve sunar; çünkü topluluk indisleri ile rese mesafesi arasında, önceden doğrusal ya da sabit dereceli bir polinom yanıtı dayatmadan, düzleştirilmiş ilişkileri tahmin eder. Düzleştirme cezaları, eğri karmaşıklığını düzenlerken, doğrusal olmayan örüntülerin temsil edilmesine olanak tanır (Wood ve Augustin, 2002; Pedersen ve ark., 2019). Denizciliminde ve res balıkları araştırmalarında yapılan başvurular, GAM’lerin uzaysal ve çevresel yanıtları analiz etmedeki yararlığını ayrıca ortaya koyar (Grüss ve ark., 2018; Urquhart ve ark., 2023). Burada bu çerçeve, uyduzulmuş yanıt örüntülerinin işlevsel gruplar ve topluluk indisleri arasında betimlenmesini ve karşılaştırılmasını sağlar ve yöntemlerde belirtilen uygulama ölçütü kullanılarak modelden türetilmiş geçiş yanıt mesafalarının çıkarıldığı eğrileri sunar.
Reef bağımlılığı ve hareketliliğindeki farklılıklara dayanarak, reef bağımlı grupların resif mesafesine karşı nispeten yerel yanıtlar göstermesi, reef yaklaşıcı grupların ise daha geniş alan yanıtları göstermesi bekleniyordu. Kum-limbottom tercih edenlerin resif mesafesi arttıkça artan temsil oranı göstermesi, güçlü yüzücülerin ise karşılaştırıldığında nispeten zayıf mesafe ilişkili yanıtlar göstermesi bekleniyordu. Tepki mesafaları, bu göstergelerin topluluk yapısının farklı boyutlarını temsil etmesi nedeniyle topluluk göstergeleri arasında değişmesi bekleniyordu. Bu doğrultuda, sürekli resif-mesafe yanıtlarını nicelendirmek ve gruplar arası model tabanlı tepki mesafalarını türetmek için GAM’lar kullanıldı.
2 Materyaller ve yöntemler
2.1 Araştırma dönemi ve istasyon dağılımı
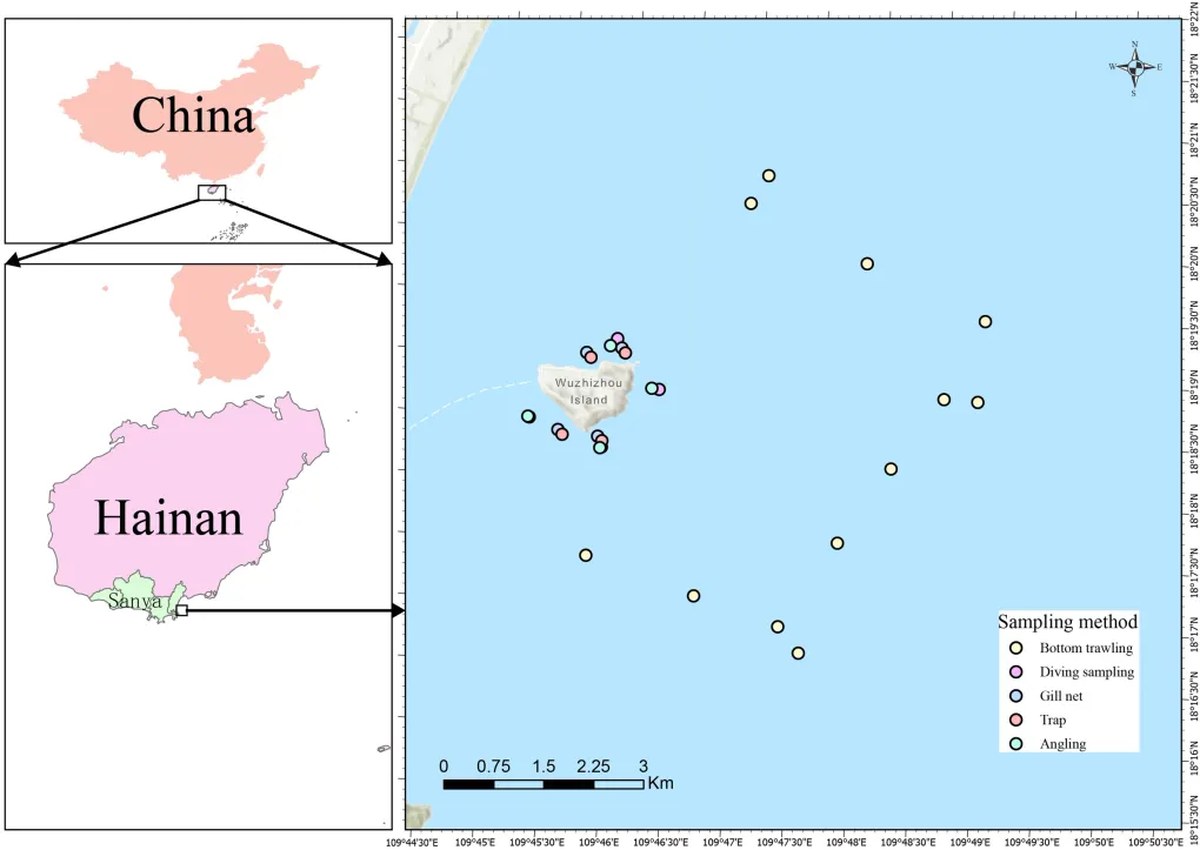
Çalışma, Çin’in Hainan Eyaleti, Sanya şehrindeki Wuzhizhou Adası Ulusal Denizsel Oltuculuk Gösteri Bölgesinde (18°19′10.37″ K, 109°45′36.00″ D) yürütüldü. Birinci faz deniz oltuculuğu yaklaşık 66,75 ha alanı kapsar ve her biri 33,375 ha olan doğu ve batı yapay resif bölgelerinden oluşur; su derinliği yaklaşık 10-30 m’dir. Yapay resifler Wuzhizhou Adası etrafında birkaç fazda konuşlandırılmış ve adaya komşu bir yapay resif kompleksi oluşturmuştur. Alan analizi için bu yapay resifler tek bir resif kompleksi olarak değerlendirilmiş ve resif mesafesinin 0 m’ye karşılık geldiği alan referansı olarak dış sınırı kullanılmıştır. Resif mesafesi, her bir örneklem istasyonundan yapay resif kompleksinin dış sınırına kadar olan en kısa yatay mesafe olarak tanımlanmış ve örneklem istasyonlarının coğrafi koordinatları ile haritalanmış resif sınırı kullanılarak ArcGIS 10.8 içinde hesaplanmıştır. Mesafeler metre cinsinden ifade edilmiştir. 2019-2021 yılları arasında toplam beş araştırma seferi gerçekleştirilmiştir. Balık kaynağı araştırmaları yapay resif alanında oltuculuk, ağ örmecilik, tuzak ve dalış örneklemesi kullanılarak yürütülmüştür. Tüm araştırmalar ilgili prosedürlere uyularak, inşaat projelerinin deniz biyolojik kaynakları üzerindeki etkisinin değerlendirilmesine ilişkin uluslararası standart ve yönergelere uygun şekilde gerçekleştirilmiştir. 2019 yılında toplam dokuz taban trawling istasyonu taranmış; Nisan, Ağustos ve Aralık aylarında her biri için farklı üç istasyon örneklenmiştir. Haziran 2020’de dört dalış örneklemesi istasyonu gerçekleştirilmiştir. Nisan 2021’deki araştırmalar dört oltuculuk istasyonu, dört ağ örmecilik istasyonu, dört tuzak istasyonu ve dört taban trawling istasyonunu içermiştir. Toplamda tüm araştırmalar boyunca 28 örneklem istasyonu tamamlanmıştır (Şekil 1). Detaylı örneklem çabası ve teçhizat özellikleri Ekleme Tablosu S1 içinde sunulmuştur.
Şekil 1
2.2 Topluluk yapısı analiz yöntemleri
Göreceli Önem Endeksi (IRI) her bir örnekleme yöntemi içinde her tür için şu şekilde hesaplanmıştır (Hyslop, 1980; Ren ve ark., 2022):
N, W ve F sırasıyla göreceli bolluk, göreli biyokütle ve gözlem sıklığını ifade eder. IRI > 1000 değerine sahip türler baskın türler olarak kabul edildi (Feng ve ark., 2025). Örneklem yöntemleri arasındaki tür örtüşmesi bir Venn diyagramı ile görselleştirildi (Ekleme Şekli S1).
2.3 Balıkçılık av grubunun sınıflandırılması
İşlevsel sınıflandırma, mevcut araştırmadaki tür varlığı sıklığı yerine yetişkin evre yaşam alanı özelliklerine dayanıyordu. Tür alışkanlıkla ilgili bilgiler öncelikle FishBase (http://www.fishbase.org), Deniz Türlerinin Dünya Kaydı (https://www.marinespecies.org) ve tabaka ilişkisi, resif bağımlılığı ve su katmanı kullanımı gibi bilgiler de dahil olmak üzere hakem değerlendirmesinden geçmiş literatürden elde edildi. Dört ekolojik grup açık niteliksel kriterler kullanılarak tanımlandı. Resif bağımlı türler, yetişkin yaşam alanları tutarlı şekilde mercan resifleri, kayalı resifler, yapay resifler, resif çatlakları veya yapısal açıdan karmaşık diğer resif alanları olarak tanımlanmış ve komşu yumuşak tabanlı alanları düzenli olarak kullanmayan türlerdi. Resife yaklaşan türler, resiflere veya resif kenarlarına bağlı olsa da aynı zamanda komşu kum, çamur, deniz otu veya diğer resif dışı alanlardan da düzenli olarak bildirilen, dolayısıyla zorunlu değil seçmeli resif bağımlılığı gösteren türlerdi. Kum-çamur tabanı tercih eden türler, çoğunlukla kumlu, çamurlu veya diğer gevşek tabanlarla ilişkili ve zayıf veya ara sıra resif ilişkisi gösteren türlerdi. Güçlü yüzen türler, belirli bir bentik tabana açıkça bağımlılığı olmayan, yüksek hareket kabiliyetine sahip pelajik veya nektonik gruplardı. Birden fazla yaşam alanı türünden bildirilen türler için sınıflandırma hiyerarşik bir karar kuralına uydu: çoğunlukla resif yapılarına kısıtlı türler resif bağımlı gruba; hem resifi hem de komşu resif dışı alanları kullanan türler resife yaklaşan gruba; çoğunlukla yumuşak tabanlı alanlarla ilişkili türler kum-çamur tabanı tercih eden gruba; ve taban özgüllüğü olmayan yüksek hareket kabiliyetine türler de güçlü yüzen gruba atandı. Toplam av kategorisi, kaydedilen tüm türleri içeriyordu ve ekolojik bir işlevsel grup yerine birleştirilmiş bir referans olarak korundu.
Her istasyon için beş grubun her biri üzerinde Shannon-Wiener çeşitlilik indeksi (H), Margalef zenginlik indeksi (d) (Kunakh ve ark., 2023) ve Pielou dengelilik indeksi (J) (Gosselin, 2006) hesaplanmıştır. Ardından her istasyondaki her tür için göreceli önem indeksi, beş grup göre toplanmıştır. Hesaplama formülleri aşağıdaki gibidir:
Shannon-Wiener Çeşitlilik İndeksi (H):
burada H tür çeşitliliğini ifade eden Shannon-Wiener çeşitlilik indeksidir. s örnekteki toplam tür sayısı (tür zenginliği). pi i-th türün göreceli bolluğudur ve i-th türden bireylerin toplam birey sayısına oranı olarak hesaplanır. ni i-th türden birey sayısıdır. N örnekteki tüm türlerin toplam birey sayısıdır.
Margalef Zenginlik İndeksi (d):
burada d tür zenginliğini örnek boyutuna göre ölçen Margalef zenginlik indeksidir.
Pielou Dengelilik İndeksi (J).
burada J topluluktaki tür dengeliliğinin derecesini gösteren Pielou dengelilik indeksidir. H Shannon-Wiener çeşitlilik indeksidir. Hmax teorik maksimum çeşitlilik (türlerin dengeli dağıldığı maksimum değer) olup, toplam tür sayısının doğal logaritmasına eşittir.
2.4 GAM modeli uydurma
Model uydurulmadan önce, aday çevresel değişkenler önce elenmiştir. Model kararlılığını etkileyebilecek olası çoklu bağlantılılık sorunlarını çözmek için sürekli çevresel değişkenler test edilirken varyans enflasyon faktörü (VIF) kullanılmıştır. VIF, açıklayıcı her değişkenin geri kalan sürekli açıklayıcı değişkenlere regresyonu yapılarak ve ortaya çıkan belirleme katsayısının çoklu bağlantılılık derecesini nicelendirmek için kullanılmasıyla hesaplanmıştır. VIF değerleri 1 ile sonsuz arasında değişir; 1 değeri çoklu bağlantılılığın olmadığını, daha yüksek değerler ise daha güçlü çoklu bağlantılılığı gösterir. 5’in altındaki değerler genellikle kabul edilebilir kabul edilirken, 5’i aşan değerler potansiyel olarak sorunlu çoklu bağlantılılığı işaret edebilir (Dormann et al., 2013). VIF değerlendirmesi ve veri erişilebilirliğine dayanarak, daha sonraki analiz için son seçilen bağımsız değişkenler resif mesafesi (sürekli bir açıklayıcı değişken) ve avcılık yöntemi (kategorik bir değişken) olmuştur. Aynı kriterlere dayanarak, farklı av grupları için Shannon-Wiener çeşitlilik indeksi (H), Margalef zenginlik indeksi (d), Pielou dengelilik indeksi (J) ve IRI bağımlı değişkenler olarak seçilmiştir. Resif mesafesi ve avcılık yöntemi, birden fazla GAM uydurmak için bağımsız değişkenler olarak kullanılmıştır. Resife bağımlı, resife yaklaşan ve kum-çamur tabanı tercih eden gruplar için IRI, GAM’larda yanıt değişkeni olarak dahil edilmiş ve sonrasında post-hoc tutarlılık değerlendirmesine dahil edilmiştir.
GAM formülü aşağıdaki gibidir:
GAM formülünde g bağlantı fonksiyonu, Y yanıt değişkeni, α kesim noktası, Xi i-ninci bağımsız değişken, Si i-ninci bağımsız değişken için kübik eğri düzleştirme fonksiyonu ve ϵ artıkları temsil eder. Endeksler, resif mesafesi ve avcılık yöntemi arasındaki ilişkileri analiz etmek için Gauss GAM modeli kullanıldı. Genelştirilmiş toplama modelleri, R 4.3.2 içindeki mgcv paketi kullanılarak uyarlandı. Shannon-Wiener çeşitliliği (H) ve Margalef zenginliği (d) model uyumundan önce log10 ile dönüştürülürken, Pielou dengeliliği (J) ve IRI orijinal ölçekleri üzerinde analiz edildi. Tüm modeller için kimlik bağlantılı Gauss hata dağılımları kullanıldı. Resif mesafesi, kübik regresyon eğrisi (bs = “cr”) kullanılarak uyarlandı. mgcv’de bir boyutlu düzleştirme için varsayılan temel boyut kullanıldı ve (k = 10) karşılık geldi. Model yapıları, adımlı prosedürler kullanılarak seçilmek yerine çalışma hedeflerine göre a priori belirlendi. Model performansı açıklamak için AIC, düzeltilmiş R2 ve açıklanan sapma kullanıldı.
Örneklem ekipmanlarının taksonomik seçiciliği ve yaşam alanı kapsamı bakımından farklılaşması nedeniyle, örneklem yöntemindeki heterojenliğin olası etkisini değerlendirmek için ek bir GAM kümesi uyarlandı. Birincil analizler, birleştirilmiş tarama veri setinde topluluk göstergeleri ile resif mesafesi arasındaki genel ilişkiyi betimlemeyi hedeflediği için resif mesafesini sürekli açıklayıcı değişken olarak dahil etti. Ekipmana bağlı örneklem farklarının olası etkisini değerlendirmek amacıyla, tamamlayıcı modellerde ayrıca örneklem yöntemi kategorik sabit etki olarak eklendi. İlgili model çıktıları ve uyarlanan tepki eğrileri Tamamlayıcı Materyal içinde sunulmaktadır. Örneklem yöntemleri tarama yılları ve resif mesafesi aralıkları boyunca dengeli dağılmadığından, örneklem yöntemi ve resif mesafesi etkileri istatistiksel olarak tamamen ayrıştırılamadı. Bu nedenle tamamlayıcı modeller, gözlemlenen resif mesafesi örüntülerinin örneklem yöntemi heterojenliğine duyarlılığını değerlendirmek için kullanıldı; resif mesafesinin bağımsız nedensel etkisini tahmin etmek için değil.
2.5 Geçiş tepki mesafelerinin belirlenmesi ve sonrası tutarlılık değerlendirmesi
Reef mesafesine ilişkin anlamlı bir düzleşme gösteren topluluk endekleri için (p < 0.05), uyumlanan düzleşme teriminden model türetilmiş bir geçiş yanıt mesafesi çıkarıldı. Merkeziştirilmiş düzleşme terimi, gözlemlenen reef mesafesi aralığı boyunca tahmin edildi. Ardışık uyumlanan düzleşme değerleri işaret değiştirdiğinde bir sıfır geçişi belirlendi ve karşılık gelen geçiş mesafesi, iki komşu tahmin noktası arasındaki doğrusal enterpolasyonla tahmin edildi. Birden fazla sıfır geçişi oluştuğunda, artan reef mesafesi gradyanı boyunca ilk geçiş, birincil model türetilmiş geçiş yanıt mesafesi olarak korundu. Bu kriter, reef referansından dışarıya doğru ilerlerken karşılaşılan ilk model türetilmiş geçişi belirlemek ve birden fazla geçiş arasında öznel bir post-hoc seçimini önlemek için kullanıldı. Shannon-Wiener çeşitlilik endeksi (H), Margalef zenginlik endeksi (d), Pielou dengelilik endeksi (J) ve IRI topluluk yapısının farklı boyutlarını temsil ettiğinden ve farklı yanıt yönleri gösterebileceğinden, istatistiksel olarak desteklenen geçiş yanıt mesafeleri ortalamaya alınmadı veya tek bir merkez değere indirgenmedi. Aynı grup içindeki birden fazla endek anlamlı geçiş yanıt mesafeleri sağladığında, o grup için minimum ve maksimum yanıt mesafeleri bildirildi. Yalnızca bir endek istatistiksel olarak desteklenen bir geçiş yanıt mesafesi sağladığında, bu değer o karşılık gelen grup için yanıt mesafesi olarak bildirildi.
GAM’den her topluluk endeksi için geçiş tepki mesafası belirlendikten sonra, örneklem istasyonları ilgili geçiş tepki mesafasının içinde ve dışında olmak üzere iki uzaysal gruba ayrıldı. Ardından ilgili topluluk indekslerinin bu iki grup arasındaki dağılımının anlamlı biçimde farklılaşıp farklılaşmadığını değerlendirmek için Kruskal-Wallis testleri uygulandı. Bu analiz, GAM’ler tarafından belirlenen uzaysal örüntülerin bir tahmin sonrası tutarlılık değerlendirmesi işlevi gördü. İstatistiksel anlamlılık p < 0,05 olarak belirlendi. Anamlılık testlerini tamamlamak amacıyla, parametrik olmayan etki büyüklüğü ölçüsü olarak Cliff delta’sı (δ) hesaplandı (Birkner ve ark., 2026) ve ilgili %95 güvenirlik aralıkları bootstrap metodu ile tahmin edildi (Young ve Lewis, 1997). Her iki grup için örneklem büyüklükleri, ortancalar ve çeyrekler arası açıklıklar da raporlandı (Burmeister ve Aitken, 2012). Bu post-hoc karşılaştırmalar, ekolojik eşiklerin bağımsız doğrulaması yerine, gözlemlenen uzaysal farkların GAM kaynaklı tepki örüntüleriyle tutarlılığının değerlendirilmesinde kullanıldı.
3 Bulgular
3.1 Topuluk yapısı
Üç yıllık araştırma döneminde toplam 263 balıkçı türü toplanmış olup, bunlardan 7’si yalnızca cins düzeyinde belirlenmiştir. Tüm yakalama grupları arasında 231 balık türü, 13 denizyıldızı türü, 8 mürekkep balığı türü, 7 kabuklu türü ve 4 salyangoz türü yer almaktadır. Her avcılık yöntemi için baskın türler IRI değerine göre seçilmiştir. Her avcılık yöntemi için yakalama gruplarının göreceli önem indeksleri Ek Tablolar S2–S6‘da gösterilmektedir. Oltalama için toplam 30 tür örneklenmiş ve 3 baskın tür belirlenmiştir: Scolopsis ciliata (IRI = 5028.212), Thalassoma lunare (IRI = 2429.493) ve Cephalopholis boenak (IRI = 1629.085) (Ek Tablo S2). İnce ağ için 9 tür örneklenmiş ve 1 baskın tür belirlenmiştir: Abudefduf sexfasciatus (IRI = 2373.866) (Ek Tablo S3). Tuzak için 9 tür örneklenmiş ve 2 baskın tür belirlenmiştir: Ostorhinchus fleurieu (IRI = 5223.601) ve Cephalopholis boenak (IRI = 1824.357) (Ek Tablo S4). Dalış örneklemesi için 26 tür toplanmış ve 4 baskın tür belirlenmiştir; bunlar esas olarak bentik omurgasızlardan oluşmakta ve yüksek baskınlık göstermektedir. Baskın türler Metapenaeopsis barbata (IRI = 4963.810), Holothuria atra (IRI = 1879.126), Oratosquilla sp. (IRI = 1301.721) ve Stichopus chloronotus (IRI = 1293.168) (Ek Tablo S5). Tabanda sürüklenen ağ için 206 tür örneklenmiş ve bu beş avcılık yönteminden en yüksek sayıya ulaşılmış, ancak baskın türler nispeten azdır. Yalnızca 1 baskın tür belirlenmiştir: Sepiella maindroni (IRI = 4841.307), bu da sürüklenen ağ operasyonlarının yaygın hedeflerinden biridir (Ek Tablo S6).
Venn diyagramı (Ek Şekil S1), beş av yönteminin tümünde ortak tür bulunmadığını göstermektedir. Av gruplarının bileşimi, av yöntemiyle anlamlı düzeyde ilişkilidir. Dalış örnekleme ile elde edilen av grubu, diğer dört av yönteminin hiçbirisiyle örtüşmemiştir.
3.2 GAM sonuçları ve tepki mesafaları
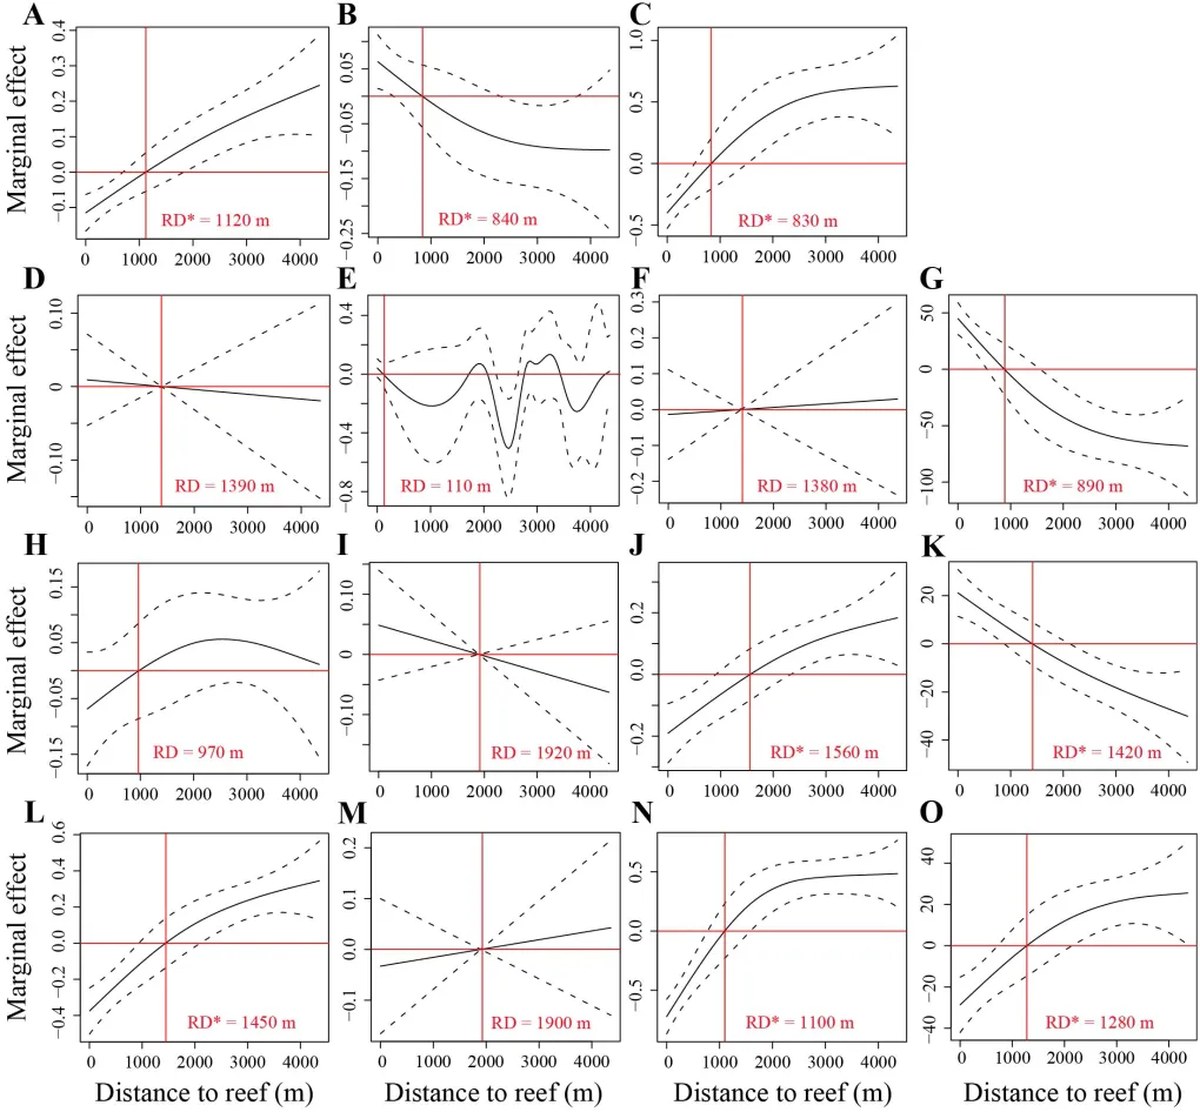
Cemiyet indekslerinin mercan uzaklığına yanıtları değerlendirmek için toplam 15 GAM uyarlanmıştır. Güçlü yüzen grup için GAM’lar, Shannon-Wiener çeşitlilik indeksi (H), Pielou eşitlik indeksi (J) ve Margalef zenginlik indeksi (d) için anlamlı mercan uzaklığı düzlemleri göstermemiştir (p sırasıyla 0,707, 0,271 ve 0,064). Güçlü yüzen grup, 28 araştırma istasyonunun 13’ünde kaydedilmiştir. Bunların on ikisi mercandan yaklaşık 1419-4360 m uzaklıkta konumlanan taban trawlı istasyonlarıken, yalnızca biri 0 m uzaklıkta konumlanan bir ağ ağı istasyonudur; bu noktada yalnızca iki tür ve iki birey kaydedilmiştir. Dolayısıyla alan tekrarları son derece sınırlıydı ve farklı örnekleme yöntemleriyle kapsanan mesafe aralıkları yeterince örtüşmemiştir. Bu örnekleme sınırlamaları, geçiş tepki mesafalarının tahminini ve yorumlanmasını kısıtlamaktadır. İlgili model sonuçları Ek Şekil S6 ve S7‘de sunulmaktadır. Buna göre, makalede mevcut verilerin bu beklentiyi test edemediği ve herhangi bir tepki mesafasının tahmin edilemediği açıkça belirtilmiştir. Anamlı mercan uzaklığı etkisi gösteren modeller için (p < 0,05), istatistiksel olarak türetilmiş tepki mesafaları, uyarlanmış düzlemlerden alınmıştır (D tablosu 1; Şekil 2).
D tablosu 1
| Grup | Yanıt değişkeni | t değeri | Tahmini değer | F değeri | Anlamlılık | P değeri | AIC değeri |
|---|---|---|---|---|---|---|---|
| Toplam av | log (Shannon-Wiener) | 7.66 | 0.24 | 14.34 | *** | <0.001 | -16.77 |
| Pielou | 26 | 0.77 | 4.4 | * | <0.05 | -20.24 | |
| log (Margalef) | 4.78 | 0.36 | 18.02 | *** | <0.001 | 32.42 | |
| Resfe bağlı | log (Shannon-Wiener) | 1.21 | 0.04 | 0.086 | – | >0.05 | -10.21 |
| Pielou | 22.96 | 0.78 | 1.63 | – | >0.05 | -8.42 | |
| log (Margalef) | -2.13 | -0.16 | 0.05 | – | >0.05 | 26.18 | |
| IRI res türleri için | 8.56 | 69.47 | 18.26 | *** | <0.001 | 283.36 | |
| Resfe yaklaşan | log (Shannon-Wiener) | -1.36 | -0.06 | 1.42 | – | >0.05 | -6.96 |
| Pielou | 15.15 | 0.59 | 1.13 | – | >0.05 | -9.77 | |
| log (Margalef) | -4.13 | -0.16 | 9.75 | ** | <0.01 | -9.11 | |
| IRI res yakın türleri için | 9.87 | 46.5 | 13.02 | ** | <0.01 | 202.87 | |
| Kum-limbaz tercih eden | log (Shannon-Wiener) | 1.93 | 0.1 | 16.49 | *** | <0.001 | 1.3 |
| Pielou | 11.96 | 0.67 | 0.25 | – | >0.05 | 4.42 | |
| log (Margalef) | 4.26 | 0.24 | 33.74 | *** | <0.001 | 6.04 | |
| IRI kum türleri için | 10.34 | 78.97 | 3.59 | * | <0.05 | 201.87 |
Resfe olan mesafenin topluluk indekleri için GAM test sonuçları.
*
Şekil 2
Toplam av grubu için Shannon-Wiener çeşitlilik indeksi (H), Pielou düzlük indeksi (J) ve Margalef zenginlik indeksi (d) tümüyle mercan kayalığına olan mesafeye anlamlı yanıt verdi (p < 0.05). İlgili geçiş yanıt mesafeleri sırasıyla 1120 m, 840 m ve 830 m olarak bulundu. Shannon-Wiener çeşitlilik indeksi (H) ve Margalef zenginlik indeksi (d) mercan kayalığına olan mesafe arttıkça artarken, (J) azaldı. Böylece, topamlav grubunun yanıt mesafeleri 830–1120 m aralığında yer aldı.
Mercan kayalığına bağımlı grup için Shannon-Wiener çeşitlilik indeksi (H), Pielou düzlük indeksi (J) ve Margalef zenginlik indeksi (d) mercan kayalığına olan mesafeye anlamlı bir yanıt göstermezken, IRI mercan kayalığına olan mesafe arttıkça anlamlı biçimde azaldı (p < 0.05). İlgili geçiş yanıt mesafesi 890 m olarak belirlendi. Buna göre, mercan kayalığına bağımlı grubun yanıt mesafesi, bu tek desteklenen 890 m mesafesiyle temsil edildi.
Mercan kayalığına yaklaşan grup için Shannon-Wiener çeşitlilik indeksi (H) ve Pielou düzlük indeksi (J) mercan kayalığına olan mesafe ile anlamlı düzeyde ilişkili değilken, Margalef zenginlik indeksi (d) ve IRI anlamlı yanıtlar gösterdi (p < 0.05). Geçiş yanıt mesafeleri, Margalef zenginlik indeksi (d) için 1560 m ve IRI için 1420 m olarak bulundu. Mercan kayalığına yaklaşan grubun yanıt mesafeleri 1420–1560 m aralığında yer aldı.
Sand ve çamur tabanını tercih eden grup için Pielou eşitlilik indeksi (J) mercan kayası mesafesine göre anlamlı bir yanıt göstermedi (p > 0.05); buna karşılık Shannon-Wiener çeşitlilik indeksi (H), Margalef zenginlik indeksi (d) ve IRI anlamlıydı (p < 0.05). İlgili geçiş yanıt mesafeleri sırasıyla 1450 m, 1100 m ve 1280 m olup üç indeks de mercan kayası mesafesiyle artmıştır. Sand ve çamur tabanını tercih eden grubun yanıt mesafeleri 1100–1450 m aralığında değişmiştir.
Nümune alma yöntemi ayrıca kategorik bir kovaryat olarak modele dahil edildiğinde, mercan kayası mesafesinin düz eğrisi için çoğu değişkende istatistiksel destek azalmış; bu da görünür uzaysal örüntülerin bir kısmının nümune alma yöntemi heterojenliğine duyarlı olduğunu göstermektedir. Nümune alma yöntemi düzeltmeli GAM’lerin tam sonuçları ve uydurulmuş eğrileri Ek Tablo S7 ve Ek Şekiller S2–S5‘de verilmiştir. Nümune alma yöntemlerinin mercan kayası mesafesi gradyanı üzerindeki dengesiz dağılımı nedeniyle, bu düzeltmeli modeller geçiş yanıt mesafeleri türetmek için alternatif bir temel yerine bir duyarlılık değerlendirmesi olarak yorumlanmıştır.
3.3
Post-hoc geçiş yanıt mesafelerinin tutarlılık değerlendirmesi
Cemiyet indeksleri, Şekil 3‘de gösterilen mesafe temelli uzaysal bölümlerin hem içinde hem de dışında yer alan istasyonlar arasında karşılaştırılmıştır. Karşılaştırmalar arasında değişen nümune büyüklükleri, bölümler içinde 7 ile 16 istasyon, dışında ise 11 ile 12 istasyon arasında değişmiştir. Ek Tablo S8 uzaysal bölümleri, nümune büyüklüklerini, ortalamaları, çeyreklik açıklıkları ile medyanları, Kruskal-Wallis testi sonuçlarını ve Cliff delta’sını (δ) 95’lik bootstrap güven aralıklarıyla bildirmektedir. 15 karşılaştırmadan 9’u anlamlı farklar göstermiştir (p < 0.05); mutlak etki büyüklükleri büyük (|δ| = 0.677-1.000) ve güven aralıkları sıfırı hariç tutmaktadır.
Şekil 3
Toplam av grubu için, üç çeşitlilik endeksi de mekânsal gruplar arasında anlamlı biçimde farklıydı (p < 0.01; Şekiller 3A–C). Shannon-Wiener çeşitliliği 1120 m ötesinde daha yüksekti (δ = −0.833) ve Margalef zenginliği 830 m ötesinde daha yüksekti (δ = −1.000). Pielou eşitliği ters yönde bir görünüm gösterdi; 840 m içine daha yüksek değerlerle (δ = 0.677). Bu farklar, ilgili GAM tepkilerinin yönleriyle uyumluydu.
Rif bağımlı grubu için, 890 m’deki fark yalnızca IRI için özgüydü. IRI bu mesafe içine daha yüksek bir değerle ortaya çıktı; büyük bir etki boyutu ve istatistiğin üst sınırına yakın bir güven aralığı vardı (δ = 0.989, %95 GA: 0.933-1.000; p < 0.001; Şekil 3G). Buna karşılık, Shannon-Wiener çeşitliliği, Pielou eşitliği ve Margalef zenginliği aynı ayrım boyunca anlamlı biçimde farklılaşmadı ve etki boyutu güven aralıkları sıfırı içerdi (Şekiller 3D–F). Böylece, IRI‘deki mekânsal fark, üç çeşitlilik endeksi boyunca karşılanabilir bir kanıtla eşlenmedi.
Rife yaklaşan grubu için, Margalef zenginliği 1560 m ötesinde daha yüksekti (δ = −0.898, %95 GA: −1.000 ile −0.636), buna karşılık IRI 1420 m içine daha yüksekti (δ = 0.802, %95 GA: 0.471-1.000). Her iki karşılaştırma da anlamlıydı (p < 0.01; Şekiller 3J, K). Shannon-Wiener çeşitliliği ve Pielou eşitliği 1420 m’lik referans ayrımı kullanılarak karşılaştırıldı; her iki karşılaştırma da anlamlı değildi ve her iki güven aralığı da sıfırı içerdi (Şekiller 3H, I).
Kum-limbaz taban tercih grubu için, Shannon-Wiener çeşitliliği, Margalef zenginliği ve IRI sırasıyla 1450, 1100 ve 1280 m’lik karşılık gelen ayrımların ötesinde daha yüksekti (p < 0.001; Şekiller 3L, N, O). Eki boyutları sırasıyla −0.955, −1.000 ve −0.917’di ve güven aralıkları sıfırı hariç tuttu. Pielou eşitliği 1450 m’lik referans ayrımı boyunca anlamlı biçimde farklılaşmadı (δ = 0.045, %95 GA: −0.659 ile 0.750; p = 0.869; Şekil 3M).
4 Tartışma
4.1 Farklı avcılık yöntemleri arasında baskın tür bileşimindeki farklar
Örneklem yöntemleri arasında baskın tür bileşiminde belirgin farklar gözlemlendi; bu farklar, kullanılan av aletlerinin seçiciliği, çalışılan su katmanları ve habitat kapsamındaki farklılıkları yansıtıyor (Christiansen et al., 2020). Bu çalışmada, oltalama, ağla avcılık ve tuzak avcılığı öncelikle balıkları örneklerken, dalış örneklemesi ve taban balıkçıları daha yüksek oranda bentik veya dip canlılarını yakalamıştır. Örneğin, resiflerle ilişkili Cephalopholis boenak hem oltalama hem de tuzak örneklerinde baskındı. Bu farklılıklar, türce zengin deniz topluluklarını karakterize ederken farklı örneklem yöntemlerinin birbirini tamamlayan bilgi sağlamasını ortaya koyar (Bosch et al., 2017; Cheal et al., 2021). Ancak, birden fazla örneklem yönteminden elde edilen verilerin birleştirilmesi, av aletleri arasındaki yakalanabilirliğin eşit olduğu anlamına gelmez; çünkü farklı aletler balık topluluklarının farklı bileşenlerini seçici biçimde örnekleyebilir (Rotherham et al., 2012). Bu heterojeniliğin olası etkisini değerlendirmek için, örneklem yöntemini kategorik bir kovaryat olarak içeren tamamlayıcı GAM’lar uyarlandı. Örneklem yöntemi farklılıkları dikkate alındıktan sonra, birkaç resif-uzaklığı tepkisi için istatistiksel destek azaldı; bu da tahmin edilen bazı uzaktısal örüntülerin örneklem heterojeniliğine duyarlı olduğunu gösteriyor. Örneklem yöntemleri, araştırma yılları ve resif-uzaklığı aralıkları boyunca düzensiz dağıldığından, etkilerini resif-uzaklığının etkisinden güvenilir biçimde ayırmak mümkün değildi; bu da model tahminlerinde karmaşa (confounding) yaratabilir (Zuur et al., 2010). Sonuç olarak, yalnızca uzaklığa dayalı GAM’lardan türetilen geçiş tepkisi uzaklıkları, örneklemden bağımsız ekolojik eşikler yerine, birleştirilmiş araştırma veri setine özgü betimleyici uzaktısal örüntüler olarak yorumlanmalıdır. Tahminlerin karşılaştırılabilirliğini ve güvenilirliğini artırmak için, resif-uzaklığı gradyanı boyunca standartlaştırılmış ve uzaktısal dengeli örneklemeye ihtiyaç vardır (Caldwell et al., 2016).
4.2 Farklı gruplar arasında uzaklıktaki tepki uzaklıklarındaki uzaktısal değişkenlik
Modelden türetilen geçiş tepki mesafeleri işlevsel gruplar ve topluluk endeksleri arasında değişmekte, bu da olası olarak habitat tercihlerindeki farkları ve her bir indeks tarafından temsil edilen topluluk yapısının farklı yönlerini yansıtmaktadır. Shannon-Wiener çeşitliliği (H), Margalef zenginliği (d), Pielou dengeliği (J) ve Göreli Önem İndeksi (IRI) topluluk yapısının farklı boyutlarını karakterize etmekte ve dolayısıyla farklı uzaysal tepkiler sergileyebilmektedir (St. Pierre ve Kovalenko, 2014). Bu mesafeler, kesin ekolojik sınırlar yerine GAM düzleştirmelerinden belirlenen operasyonel geçişleri temsil etmektedir.
Toplam av grubu için, Shannon-Wiener çeşitliliği indeksi (H), Margalef zenginliği indeksi (d) ve Pielou dengeliği indeksi (J) kaynaklı istatistiksel olarak desteklenen geçiş tepki mesafeleri yaklaşık 830–1120 m arasında değişmektedir. Shannon-Wiener çeşitliliği indeksi (H) ve Margalef zenginliği indeksi (d) genellikle mercan kayalığına olan uzaklıkla artarken, Pielou dengeliği indeksi (J) farklı bir tepki deseni göstermiştir. Bu, mercan kayalığından uzaklaştıkça geçiş ve kum-limbaz taban habitatlarıyla ilişkili türlerin kademeli olarak eklenmesini yansıtabilir. Mercan kayalıklarıyla ilişkili topluluklar ile komşu çökeltili habitatlarda yaşayan topluluklar arasında benzer uzaysal değişimler diğer mercan sistemlerinde de raporlanmıştır (Schultz et al., 2012). Yapay mercan kayalıkları inşasından sonra çeşitlilik indeksleri arasındaki farklar uzun süreli çalışmalarda da gözlemlenmiş, tür zenginliği, çeşitliliği ve dengeliğin paralel olarak tepki vermeyebileceğini göstermiştir (Yuan et al., 2022).
Resfe dayalı tür grubu için yaklaşık 890 m’lik geçiş yanıt mesafesi yalnızca IRI ile desteklenirken, üç çeşitlilik endeksi önemli bir resf mesafesi yanıtı göstermedi. Bu, çıkarılan geçişin topluluk yapısının birden fazla boyutundaki koordineli bir değişimden çok, baskın resf-dependent türlerin göreli önemindeki değişimi yansıttığını gösteriyor. IRI‘deki belirgin azalmanın resf mesafesi arttıkça baskın resf-dependent türlerin resfe daha yakın yoğunlaştığını öne sürüyor. Bu örüntü, dağılımları genellikle resf yapısı, barınak erişimi ve buna eşlik eden mikrotik alanlarla sınırlanan güçlü bir habitat bağımlılığı gösteren resf-associated türlerle uyumludur (Coker et al., 2014; Nash et al., 2015). Önceki çalışmalar, resf-associated balıkların çoğunun resf yapılarından nispeten sınırlı mesafeler içindeki çevreleyici kumlu habitatları kullandığını benzer şekilde ortaya koymuştur (Rosemond et al., 2018).
Resfe yaklaşan grup için belirlenen geçiş yanıt mesafeleri, IRI ve Margalef zenginlik endeksi (d) temel alındığında 1420–1560 m aralığında değişiyordu. Resf-dependent grupla karşılaştırıldığında, resf yaklaşan türler resf kenarlarını, geçiş habitatlarını ve komşu kum-limbottom habitatları kullanabilir; bu durum daha geniş bir uzaysal resf mesafesi yanıtıyla açıklanabilir. d Margalef zenginlik endekindeki artış, resf’tan daha uzak habitatlarda ek resf yaklaşan türün görüldüğünü de öne sürüyor. Gece aktif ve resf yaklaşan olan Apogonidae familyasındaki türler gibi temsilci türler çoğunlukla suların yüzeyine yakın bölgelerde yaşar (Mabuchi et al., 2014).
Kum-limbaz taban tercihli grup için, istatistiksel olarak desteklenen geçiş tepki mesafeleri Shannon-Wiener çeşitlilik indeksi (H), Margalef zenginlik indeksi (d) ve IRI temel alındığında yaklaşık 1100–1450 m aralığını kapsamaktaydı. Bu indeksler genellikle resif mesafesiyle birlikte artmakta, resiften uzaklaştıkça kum-limbaz taban habitatlarının artan erişilebilirliğiyle uyumlu bir biçimde türlerin resif bağlantılı habitatın azalıp açık sedimanter alanın artmasıyla birlikte daha belirgin hale gelmesi beklenmektedir (Wilson ve ark., 2019).
Tahmin edilen geçiş tepki mesafeleri (830–1560 m), kayalı resiflerin yaklaşık 200–400 m yakınında veya yapay resiflerin etrafındaki 0–300 m gradyanlarında balık topluluklarındaki değişimleri belgeleyen bazı önceki çalışmalarda bildirilen mekânsal ölçekleri aşmaktaydı. Bu farklar, habitat koşullarındaki, tepki değişkenlerindeki ve analiz yaklaşımlarındaki farklılıkları yansıtıyor olabilir. Doğrudan mekânsal gözlemlerden tahmin edilen ekolojik etkileşim mesafelerinin aksine, söz konusu mesafeler uyarlanmış GAM düzlemlerinin sıfır geçtiği noktalardan türetilmiştir. Ayrıca, 0 ile yaklaşık 1419 m arasında ara örneklem istasyonlarının bulunmaması ve örneklem yöntemlerinin eşitsiz dağılımı önemli belirsizlikler getirmektedir. Bu nedenle bu tahminler, genişletilmiş bir ekolojik etkileşim yarıçapına dair kanıt olarak değil, veri setine özgü istatistiksel geçişler olarak yorumlanmalıdır.
GAM’lerin güçlü yüzen grup için uyarlanabilmesine rağmen, resif mesafesi etkileri istatistiksel olarak anlamlı değildi ve modelleme veri seti yalnızca bir ağ avı istasyonu ve 12 taban trawlı istasyonundan oluşuyordu. Mesafe kapsamındaki boşluk ve örneklem yöntemleri arasındaki yetersiz örtüşme, uyarlanan tepkilerin yorumlanmasını sınırlıyor. Yüksek hareketli balıklar birden fazla yaşama alanı kullanabilir ve daha geniş çevresel süreçlere yanıt verebilir (Brownscombe et al., 2022; Ferreira et al., 2025); ancak mevcut veriler bu olası mekanizmaları yetersiz örneklem kapsamından ayırt edemiyor. Genel olarak, istatistiksel destek gruplar arasında farklılık gösteriyordu: toplam avlanma ve kum-limsan taban tercih gruplarında üç gösterge, resife yaklaşan grupta iki gösterge ve yalnızca IRI resife bağımlı grupta destekliyordu. Birden fazla gösterke arasındaki uyum, veri seti içinde daha tutarlı bir tutarlılık sağlar, ancak tahmin edilen geçişlerin bağımsız bir doğrulamasını oluşturmaz (Nash and Graham, 2016).
4.3 Tahmin edilen tepki mesafelerinin yönetim yönümleri
Bu çalışmada türetilen geçiş tepki mesafeleri, Wuzhizhou Adası deniz çiftliğinde ekolojik izleme ve değerlendirmeler için başlangıç düzeyinde mekânsal bilgi sağlamaktadır. İşlevsel gruplar arasındaki farklar, tek bir mekânsal mesafenin resif habitatları etrafındaki topluluk tepkilerindeki değişimi yeterince temsil edemeyeceğini göstermektedir. Bu gruplara özgü örüntüler dolayısıyla gelecekteki izleme tasarımlarına ve resifle ilişkili ile çevreleyen habitatlardaki örneklem yerlerinin seçimine yol açabilir (Paxton ve ark., 2022). Ancak tahmin edilen geçiş tepki mesafeleri, sabit ekolojik etki yarıçapları olarak yorumlanmamalı veya yönetim sınırları olarak doğrudan uygulanmamalıdır. Wuzhizhou Adası’nı çevreleyen doğal ve yapay resiflerin bir arada varlığı, heterojen bir habitat mozaiği oluşturmaktadır (Huang ve ark., 2020); aynı zamanda su derinliği, taban özellikleri, mevsimsel değişim ve örneklem yöntemlerindeki farklar da gözlemlenen mekânsal örüntüleri etkileyebilir (Smith ve ark., 2017). Ayrıca bu tahminler, yalnızca tek bir deniz çiftliğinde 2019 ile 2021 yılları arasında yürütülen araştırmalardan türetilmiştir ve farklı konumlar veya dönemler için bağımsız olarak doğrulanmamıştır. Bu nedenle bu mesafeler, deniz çiftliği alan planlaması için evrensel kriterler yerine, o yere ve veri setine özgü istatistiksel referanslar olarak değerlendirilmelidir. Pratik mekânsal yönetim uygulamalarına dayanmadan önce ek doğrulamaya ihtiyaç vardır.
4.4 Çalışma sınırlamaları ve gelecekteki yönlendirmeler
Modelden türetilen geçiş tepki mesafeleri yorumlanırken birkaç sınırlamanın göz önünde bulundurulması gerekir. Örnekleme yöntemleri araştırma dönemleri ve resif mesafesi aralıkları boyunca düzensiz dağılmıştı ve ekipman seçiciliği gözlemlenen balık birikim kompozisyonu ve çeşitliliğini etkilemiş olabilir. Ek GAM’lar örnekleme yöntemini dahil etmiş olsa da, örnekleme yöntemleri arasındaki yetersiz örtüşme nedeniyle etkileri resif mesafesi etkilerinden güvenilir şekilde ayrılabilmiş değildir. Ayrıca, resif alanındaki istasyonlara 0 m referans mesafesi atanmış ve 0 ile yaklaşık 1419 m arasında ara gözlem bulunmamıştır. Sonuç olarak, tahmin edilen birkaç geçiş tepki mesafesi, örneklenmemiş bir aralık içindeki uyarlanmış düzlemlere dayanmaktaydı. Örnekleme kapsamı ve veri dağılımındaki böyle sınılamanmalar mekansal model çıkarımlarının güvenilirliğini etkileyebilir (Moudrý ve ark., 2024). Habitatin heterojenliği, özellikle su derinliği ve taban özellikleri, resifle ilişkili balık birikimlerini de etkilemiş olabilir (Costa ve ark., 2024); ancak bu etkiler bağımsız olarak değerlendirilmemiştir. Zaman açısından dengesiz, tek merkezli veri seti, zaman salinliğinin ve genelleniriliğin değerlendirilmesini daha da sınırlayarak tekrarlanan ekolojik izlemenin önemini vurgulamaktadır (Hicks ve ark., 2025). Gelecek çalışmalar standartlaştırılmış örnekleme, resif mesafesi açısından daha sürekli gradyanlar, mevsimsel tekrarlar ve detaylı habitat eşlemesi kullanmalıdır. Akustik telemetri, yüksek hareket kabiliyetine sahip balıkların habitat kullanımını ve hareket örüntülerini daha net biçimde açıklamaya yardımcı olabilir (Lowerre-Barbieri ve ark., 2025). Buna göre, tahmin edilen geçiş tepki mesafeleri evrensel ekolojik eşikler yerine veri setine özgü istatistiksel referanslar olarak değerlendirilmelidir.
Açıklamalar
Veri erişilebilirliği açıklaması
Çalışmada sunulan özgün katkılar makale/Ek Malzeme içinde yer almaktadır. İlgili sorular ilgili yazarlara yöneltilebilir.
Ahlak açıklaması
Makale, çalışmaları için etik onay gerektirmeyen hayvanlar üzerinde araştırma sunmaktadır.
Yazar katkıları
CY: Özgün taslak yazımı, Resmi analiz, Metodoloji, Doğrulama, Veri düzenleme. XZ: Yazım – inceleme ve düzenleme, Soruşturma. JL: Veri düzenleme, Yazım – inceleme ve düzenleme. ZZ: Yazım – inceleme ve düzenleme. YG: Soruşturma, Yazım – inceleme ve düzenleme. QX: Kaynaklar, Soruşturma, Yazım – inceleme ve düzenleme. HW: Yazım – inceleme ve düzenleme, Gözetim, Proje yönetimi. HY: Yazım – inceleme ve düzenleme, Doğrulama, Kavramsal oluşturma.
Fonlanma
Yazar(lar), bu çalışma ve/veya yayımı için finansal destek alındığını beyan etti. Bu çalışma, Çin Ulusal Anahtar AR-GE Programı (Grant No. 2022YFD2401300) ve Çin Ulusal Doğal Bilimler Fonu (Grant No. 42306151) tarafından desteklenmiştir.
Çıkar çatışması
Yazar(lar), bu çalışmanın ticari veya olası bir çıkar çatışması olarak değerlendirilebilecek herhangi bir finansal ilişki olmadan yürütüldüğünü beyan etti.
Üretken yapay zeka beyanı
Yazar(lar), bu el yazısının oluşturulmasında üretken yapay zeka kullanıldığını beyan etti. El yazısının yeniden gözden geçirilmesi sırasında yazarlar, yalnızca dil bilgisi, sözcük seçimi ve okunabilirlik dahil olmak üzere İngilizce metin düzenlemesi için ChatGPT-6.1 Sol kullanmış; yaptıkları düzenlemeleri gözden geçirmiş ve son el yazısı için tam sorumluluk üstlenmiştir.
Bu makaledeki figürlerle birlikte sağlanan alternatif metin (alt text) Frontiers tarafından yapay zeka desteğiyle oluşturulmuş ve mümkün olduğunca yazarların gözden geçirmesi dahil olmak üzere doğruluğun sağlanması için makul çabalar gösterilmiştir. Herhangi bir sorunu tespit ederseniz, lütfen bizimle iletişime geçin.
Yayıncının notu
Bu makalede ifade edilen tüm iddialar yalnızca yazarların görüşlerini yansıtır ve bağlı oldukları kuruluşların, yayıncının, editörlerin veya hakemlerin görüşlerini mutlaka yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
Ekleme materiali
Bu makalenin Ek Materyallerine çevrimiçi olarak şu adresten ulaşılabilir: https://www.frontiersin.org/articles/10.3389/fevo.2026.1983890/full#supplementary-material
-
Ahmed R. Tamim M. T. R. (2025).
Deniz ve kıyı ortamları: sürdürülebilir bir gelecek için zorluklar, etkiler ve stratejiler. Int. J. Sci. Educ. Sci.2, 53–60. doi: 10.56566/ijses.v2i1.325- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Altman D. G. Royston P. (2006).
Sürekli değişkenlerin ikiliye indirgenmesinin maliyeti. BMJ332, 1080.1. doi: 10.1136/bmj.332.7549.1080- Pubmed Abstract
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Birkner T. Chen C.-Y. Essex M. Dahm K. Löber U. Ulas T. ve ark. (2026).
MetadeconfoundR: yüksek boyutlu kesitsel omiks verilerinin kovaryans analizi. Bioinforma. Adv.6, vbag242. doi: 10.1093/bioadv/vbag242- Pubmed Abstract
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Bosch N. E. Gonçalves J. M. S. Erzini K. Tuya F. (2017).
Nasıl” ve “ne” önemlidir: örneklem yöntemi mercan balıklarının biyoçeşitlilik tahminlerini etkiler. Ecol. Evol.7, 4891–4906. doi: 10.1002/ece3.2979- Pubmed Abstract
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Bradley M. Dubuc A. Piggott C. V. H. Sambrook K. Hoey A. S. Depczynski M. ve ark. (2024).
Balık-mangrov bağı bağlama bağlıdır: gelgit rejimi ve mercan yakınlığı tropik mangrovların ekolojik rolünü belirler. Fish Fish.25, 523–541. doi: 10.1111/faf.12822- Pubmed Abstract
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Brandl S., Rasher D. B., Côté I. M., Casey J. M., Darling E. S., Lefcheck J. S. ve ark. (2019). Coral reef ecosystem functioning: eight core processes and the role of biodiversity. Front. Ecol. Environ. 17, 445–454. doi: 10.1002/fee.2088
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Brownscombe J. W., Shipley O. N., Griffin L. P., Morley D., Acosta A., Adams A. J. ve ark. (2022). Application of telemetry and stable isotope analyses to inform the resource ecology and management of a marine fish. J. Appl. Ecol. 59, 1110–1121. doi: 10.1111/1365-2664.14123
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Burmeister E., Aitken L. M. (2012). Sample size: how many is enough? Aust. Crit. Care 25, 271–274. doi: 10.1016/j.aucc.2012.07.002
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Caldwell Z. R., Zgliczynski B. J., Williams G. J., Sandin S. A. (2016). Reef fish survey techniques: assessing the potential for standardizing methodologies. PloS One 11, e0153066. doi: 10.1371/journal.pone.0153066
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Cheal A. J., Emslie M. J., Currey-Randall L. M., Heupel M. R. (2021). Comparability and complementarity of reef fish measures from underwater visual census (UVC) and baited remote underwater video stations (BRUVS). J. Environ. Manage. 289, 112375. doi: 10.1016/j.jenvman.2021.112375
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Christiansen H. M., Switzer T. S., Keenan S. F., Tyler-Jedlund A. J., Winner B. L. (2020). Çoklu örneklem aletlerinin Meksika Körfezi’nin doğusunda yönetilen mercan balıkları için bağıl seçiciliğinin değerlendirilmesi. Mar. Coast. Fish. 12, 322–338. doi: 10.1002/mcf2.10129
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Coker D. J., Wilson S. K., Pratchett M. S. (2014). Canlı mercan habitatlerinin mercan balıkları için önemi. Rev. Fish Biol. Fish. 24, 89–126. doi: 10.1007/s11160-013-9319-5
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Costa R. J., De Macedo Carneiro P. B., Feitosa C. V., De Sousa Barroso H., Da Silva M. V. C., Giarrizzo T. ve ark. (2024). Derinliğin Güney Amerika Mercan Sistemindeki balık ve bentonik birikimlerdeki değişimlere sürüklenmesi. Sci. Rep. 14, 29607. doi: 10.1038/s41598-024-76641-1
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Dormann C. F., Elith J., Bacher S., Buchmann C., Carl G., Carré G. ve ark. (2013). Doğrusallık: Bu sorunla başa çıkma yöntemlerinin bir değerlendirmesi ve performanslarını değerlendiren bir simülasyon çalışması. Ecography 36, 27–46. doi: 10.1111/j.1600-0587.2012.07348.x
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Feng S., Wang X., Huang L., Wang J., Lin L., Li J. ve ark. (2025). Çin’deki Xinglin Körfezi’nde balık topluluğu yapısının ve istila riskinin değerlendirilmesi. Biology 14, 988. doi: 10.3390/biology14080988
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Ferreira L. C., Galaiduk R., Radford B., Udyawer V., Meekan M., Thums M. ve ark. (2025). Deniz yırtıcılarının hareketleri, uzak mercan recifi ekosistemlerinde deniz manzarası bağlantılığını oluşturur. Mov. Ecol. 13, 72. doi: 10.1186/s40462-025-00598-7
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Gosselin F. (2006).
Eşitlik dizilerinin tür zenginliğine bağımlılığının değerlendirilmesi. J. Theor. Biol.242, 591–597. doi: 10.1016/j.jtbi.2006.04.017- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Grüss A. Chagaris D. D. Babcock E. A. Tarnecki J. H. (2018).
Kapsamlı bir anket veritabanı, büyük bir çevresel veritabanı ve genel ekolojik modeller kullanılarak ekosistem temelli balıkçılık yönetimi çalışmalarının desteklenmesi. Mar. Coast. Fish.10, 40–70. doi: 10.1002/mcf2.10002- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Hicks D. Getz E. Kline R. Cintra Buenrostro C. (2025).
Bir on yıllık izleme, Meksika Körfezi’ndeki büyük bir yapay resifte dinamik bir balık topluluğunu ortaya koyuyor. Fish. Manage. Ecol.32, e12756. doi: 10.1111/fme.12756- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Higgins E. Metaxas A. Scheibling R. E. (2022).
Mercan resifleri araştırması ve koruması için platform olarak yapay resiflerin sistematik derlemesi. PloS One17, e0261964. doi: 10.1371/journal.pone.0261964- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Huang J. Wang F. Zhao H. Xu H. Liu S. Xu Q. ve ark. (2020).
Güney Çin Denizi’nde Wuzhizhou Adı’ndaki resif bentos bileşimi ve mercan toplulukları: insan kaynaklı bozulmanın etkileri. Estuar. Coast. Shelf Sci.243, 106863. doi: 10.1016/j.ecss.2020.106863- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Huggett A. J. (2005).
Biyçeşitliliğin korunmasında ‘ekolojik eşikler’ kavramı ve yararlılığı. Biol. Conserv.124, 301–310. doi: 10.1016/j.biocon.2005.01.037- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Hyslop E. J. (1980).
Mide içeriği analizi—yöntemlerin ve uygulamalarının gözden geçirilmesi. J. Fish Biol.17, 411–429. doi: 10.1111/j.1095-8649.1980.tb02775.x- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Kunakh O. M., Volkova A. M., Tutova G. F., Zhukov O. V. (2023).
Çeşitlilik endeksinin çeşitliliği: hangi çeşitlilik ölçüsü daha iyidir? Biosyst. Divers.31, 131–146. doi: 10.15421/012314- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Legendre P., Gallagher E. D. (2001).
Tür verilerinin ordinasyonu için ekolojik açıdan anlamlı dönüşümler. Oecologia129, 271–280. doi: 10.1007/s004420100716- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Liu S., Zhou X., Zeng C., Frankstone T., Cao L. (2022).
Çin’de deniz yetiştiriciliğinin gelişiminin karakterizasyonu. Rev. Fish Biol. Fish.32, 783–803. doi: 10.1007/s11160-022-09709-8- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Lowerre-Barbieri S. K., Wall K., Friess C., Keenan S., Lembke C., Tarnecki J. ve ark. (2025).
Koruma ve balıkçılık yönetimi için önemli hareket özellikleri: kırmızı levrek örneği. Sci. Rep.15, 4614. doi: 10.1038/s41598-025-86892-1- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Mabuchi K., Fraser T. H., Song H., Azuma Y., Nishida M. (2014).
Moleküler analizlere ve morfolojik karakterlerin karşılaştırmalı yeniden değerlendirilmesine dayanan kalamarbalıkları (Percomorpha: Apogonidae) sistatiğinin revizyonu. Zootaxa3846 (2), 151–203. doi: 10.11646/zootaxa.3846.2.1- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Moudrý, V., Bazzichetto, M., Remelgado, R., Devillers, R., Lenoir, J., Mateo, R. G. ve ark. (2024). Tür dağılışı modellerinde varlık verilerinin optimize edilmesi: Örneklem boyutu, konumsal belirsizlik ve örnekleme yanlılığı önemlidir. Ecography 2024, e07294. doi: 10.1111/ecog.07294
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Nash, K. L., Graham, N. A. J. (2016). Mercan resifi balıkçılığı yönetimi için ekolojik göstergeler. Fish Fish. 17, 1029–1054. doi: 10.1111/faf.12157
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Nash, K. L., Welsh, J. Q., Graham, N. A. J., Bellwood, D. R. (2015). Mercan resifi balıklarında yaşam alanı allometrisi: diğer omurcuklularla karşılaştırma, metodolojik konular ve yönetim çıkarımları. Oecologia 177, 73–83. doi: 10.1007/s00442-014-3152-y
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Paxton, A. B., Steward, D. N., Harrison, Z. H., Taylor, J. C. (2022). Yapay resiflerin ekolojik ilkelerinin deniz planlaması bulmacasına dahil edilmesi. Ecosphere 13, e3924. doi: 10.1002/ecs2.3924
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Pedersen, E. J., Miller, D. L., Simpson, G. L., Ross, N. (2019). Ekolojide hiyerarşik genelleştirilmiş ekolevrel modeller: mgcv ile bir giriş. PeerJ 7, e6876. doi: 10.7717/peerj.6876
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Ramm, L. A., Florisson, J. H., Watts, S. L., Becker, A., Tweedley, J. R. (2021). Antroposen’de yapay resifler: tasarım, amaç ve izleme konularındaki coğrafi ve tarihsel eğilimlerin bir incelemesi. Bull. Mar. Sci. 97, 699–728. doi: 10.5343/bms.2020.0046
- CrossRef
- Google Scholar
- View reference in article
-
RenQ.LeungP. T. Y.XuQ.YanM.YangG.WeiJ.et al. (2022).
Batı Kumunun çevresindeki subtidal deniz otlaklarındaki balık toplulukları, Güney Çin Denizi. Front. Environ. Sci.9, 765702. doi: 10.3389/fenvs.2021.765702- CrossRef
- Google Scholar
- Referansı makalede gör
-
RosemondR.PaxtonA.LemoineH.FegleyS.PetersonC. (2018).
Balıkların mercan yapılarını ve komşu kum yataklarını kullanımı: yeni yapay mercanlar ile mevcut mercanlar arasında minimum tampon bölgelerin seçimi için çıkarımlar. Mar. Ecol. Prog. Ser.587, 187–199. doi: 10.3354/meps12428- Pubmed Abstract
- CrossRef
- Google Scholar
- Referansı makalede gör
-
RotherhamD.JohnsonD. D.KesbyC. L.GrayC. A. (2012).
Havzalı balık ve omurgasızları bir ışın ağacı ile örneklemek, çok gözlü file ağlarından farklı bir popülasyon ve topluluk tablosu sağlar. Fish. Res.123-124, 49–55. doi: 10.1016/j.fishres.2011.11.019- Pubmed Abstract
- CrossRef
- Google Scholar
- Referansı makalede gör
-
SchultzA. L.MalcolmH. A.BucherD. J.SmithS. D. A. (2012).
Mercan yakınlığının gevşek yapılı tabakalardaki balık topluluklarının yapısına etkileri. PloS One7, e49437. doi: 10.1371/journal.pone.0049437- Pubmed Abstract
- CrossRef
- Google Scholar
- Referansı makalede gör
-
SieversK. T.McClureE. C.AbesamisR. A.RussG. R. (2020).
Dış tropik deniz manzarasındaki mercan dışı yaşam alanları mercan mercanlarındaki balıkların yoğunluğunu ve biyokütlesini etkiler. Ecol. Evol.10, 13673–13686. doi: 10.1002/ece3.6940- Pubmed Abstract
- CrossRef
- Google Scholar
- Referansı makalede gör
-
SmithJ. A.CornwellW. K.LowryM. B.SuthersI. M. (2017).
Yapay bir mercanın etrafındaki balıkların dağılımının modellenmesi. Mar. Freshw. Res.68, 1955–1964. doi: 10.1071/MF16019- Pubmed Abstract
- CrossRef
- Google Scholar
- Referansı makalede gör
-
St. Pierre J. I. Kovalenko K. E. (2014). Habitat karmaşıklığı özelliklerinin tür zenginliği üzerindeki etkisi. Ecosphere 5, 1–10. doi: 10.1890/ES13-00323.1
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Taylor M. D. Chick R. C. Lorenzen K. Agnalt A.-L. Leber K. M. Blankenship H. L. et al. (2017). Değişen bir dünyada balıkçılık artırma ve geri kazanım. Fish. Res. 186, 407–412. doi: 10.1016/j.fishres.2016.10.004
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Urquhart J. P. Olson D. B. Babcock E. A. (2023). Kategorik sayı verileri için genelleştirilmiş ekolojik modeller: Bahamas ve Turks ve Caicos’ta kral çupra Balistes vetula’nın azalmasının bir incelemesi. Fish. Manage. Ecol. 30, 257–268. doi: 10.1111/fme.12617
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Wang C. Ma Z. Cao K. Wang X. Xi R. Jiang T. et al. (2024). Çevresel DNA temelli olarak Güney Çin Denizi’nde Wuzhizhou Adında balıkların tür çeşitliliği. Biodivers. Data J. 12, e127120. doi: 10.3897/BDJ.12.e127120
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Wilson S. K. Robinson J. P. W. Chong-Seng K. Robinson J. Graham N. A. J. (2019). Kayalık mercan resiflerindeki temel yapının yükselişi ve çöküşü. Coral Reefs 38, 625–635. doi: 10.1007/s00338-019-01818-4
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Wood S. N. Augustin N. H. (2002). Cezalı regresyon splinleri ile entegre model seçimi içeren GAM’lar ve çevresel modele uygulamaları. Ecol. Model. 157, 157–177. doi: 10.1016/S0304-3800(02)00193-X
- CrossRef
- Google Scholar
- View reference in article
-
Young K. Lewis R. J. (1997).
Güven aralıklarının kullanımı ve yorumlanması: Güven nedir? Bölüm 1. Ann. Emerg. Med.30, 307–310. doi: 10.1016/S0196-0644(97)70166-5- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Yuan H. Chen P. Li X. (2022).
Çin Daya Körfezi’nde 14 yıl boyunca yapay resiflerle ilişkili balıkçılık kaynaklarının taksonomik çeşitliliği ve ekolojik enerji değişimleri. Front. Mar. Sci.9, 1054933. doi: 10.3389/fmars.2022.1054933- CrossRef
- Google Scholar
- View reference in article
-
Zalmon I. R. Boina C. D. Almeida T. C. M. (2012).
Yapay resiflerin çevresindeki faunanın etkisi: Brezilya, Rio de Janeiro Eyaleti’nin kuzey kıyıları. J. Mar. Biol. Assoc. U. K.92, 1289–1299. doi: 10.1017/S0025315411001147- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Zuur A. F. Ieno E. N. Elphick C. S. (2010).
Yaygın istatistiksel sorunlardan kaçınmak için veri keşfi protokolü: veri keşfi. Methods Ecol. Evol.1, 3–14. doi: 10.1111/j.2041-210X.2009.00001.x- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
Özet
Anahtar kelimeler
yapay resifler, topluluk yapısı, genelleştirilmiş eklemeli model (GAM), deniz çiftlikçiliği, mekânsal tepki mesafesi
Başvuru
Yang C, Zhang X, Li J, Zhang Z, Guo Y, Xu Q, Wang H ve Yu H (2026) Wuzhizhou Adası deniz çiftliğinde resifle ilişkili toplulukların mekânsal tepki mesafelerinin genelleştirilmiş eklemeli modeller kullanılarak tahmin edilmesi. Front. Ecol. Evol. 14:1983890. doi: 10.3389/fevo.2026.1983890
Kabul tarihi
31 Ağustos 2026
Güncellenme tarihi
28 Ekim 2026
Onay tarihi
30 Ekim 2026
Yayınlanma tarihi
12 Kasım 2026
Cilt
14 – 2026
Paulo Cesar Paiva, Brezilya, Rio de Janeiro Federal Üniversitesi
Eleni A. Charmpila, Yunanistan, Atina Tarım Üniversitesi
Liangming Wang, Çin Balıkçılık Bilimleri Akademisi (CAFS), Çin
© 2026 Yang, Zhang, Li, Zhang, Guo, Xu, Wang ve Yu.
Bu makale, Creative Commons Atıf Lisansı (CC BY) koşulları altında açık erişimli olarak dağıtılmıştır. Orijinal yazar(lar)ın ve telif hakkı sahibinin(lerin) atıf edilmesi ve kabul edilen akademik uygulamalara uygun olarak bu dergideki orijinal yayının belirtilmesi koşuluyla, diğer forumlarda kullanım, dağıtım veya çoğaltma izinlidir. Bu koşullara uymayan herhangi bir kullanım, dağıtım veya çoğaltma izinlidir.
*İletişim: Haiyan Wang, haiyanwang@qdio.ac.cn; Haolin Yu, yuhaolin777@outlook.com
†Güncel adres: Haolin Yu, Astrophysics, Geophysics and Oceanology Bölümü, FOCUS-MAST araştırma grubu, Liège Üniversitesi, Liège, Belçika
Bu makalede ifade edilen tüm iddialar yalnızca yazarlara aittir ve kesinlikle bağlı oldukları kuruluşların, yayıncının, editörlerin veya hakemlerin görüşlerini yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddiala, yayıncı tarafından garanti edilmez veya desteklenmez.