ORİJİNAL ARAŞTIRMA makalesi
\n
Front. Mar. Sci., 10 Kasım 2026
\n
Derin Deniz Çevreleri ve Ekolojisi Bölümü
\n
Cilt 13 – 2026 | https://doi.org/10.3389/fmars.2026.1944194
\n
- JL
Jan Leonard Verheyen 1,2*
- SB
Saskia Brix 1,2*
- LB
Livia Brunner 3
- JM
Julian M. Burgos 4
- SH
Sebastian Hölz 5
- AL
Anne-Nina Lörz 1,2
- LD
Laure de Montety 4
- SH
Steinunn Hilma Ólafsdóttir 4
- SÁ
Stefán Á. Ragnarsson 4
- SW
Stan Waal 3
- SG
Sabine Gollner 3*
\n
-
1. Benthic Biogeography, Senckenberg am Meer, Deutsches Zentrum für Marine Biodiversitätsforschung (DZMB), University of Hamburg c/o Institut für Zell- und Systembiologie der Tiere (IZS), Hamburg, Almanya
-
2. Institute of Marine Ecosystem and Fishery Science, Marine Ecosystem Dynamics and Management, University of Hamburg, Faculty of Mathematics, Informatics and Natural Sciences, Department of Biology, Hamburg, Almanya
-
3. Ocean Systems (OCS), NIOZ Royal Netherlands Institute for Sea Research, Texel, Hollanda
-
4. Demersal Division, Marine and Freshwater Research Institute, Hafnarfjörður, İzlanda
-
5. Research Unit Marine Geodynamics, Research Division Dynamics of the Ocean Floor, GEOMAR Helmholtz Centre for Ocean Research Kiel, Kiel, Almanya
\n
Makale metrikleri
\n
Detayları görüntüle
\n
Özet
\n
Derin ve üst yamaç hidrotermal çıkışlarında yaşayan hayvan toplulukları, çıkış sıvısı koşulları, jeolojik yapı, zemin bileşimi ve çevreleyen raf ekosistemleri tarafından şekillenmektedir. Bu çalışmada, İzlanda’nın kuzeyinde bulunan iki zıt hidrotermal alan karşılaştırılmaktadır: yaklaşık 100 metre derinlikte, yastık lav ve çakıl zemininden oluşan, sırtın üzerinde yerel yüksek sıcaklıklı çıkışlarla karakterize edilen ve raf sisteminin bir parçası olan Kolbeinsey çıkış alanı ile yaklaşık 400 metre derinlikte, aktif anhidrit bacaları ve sıcak sedimanlardan oluşan üst yamaçta yer alan, sediman destekli Grimsey çıkış alanı. Görüntü tabanlı megafauna anketleri ve fiziksel makrofauna örneklemesi kullanılarak, ince ölçekli habitat değişiminin çıkış alanlarının içinde ve arasında farklı topluluk örüntüleriyle ilişkili olduğu gösterilmiştir. Kolbeinsey’de hidrotermal aktivite uzaysal olarak sınırlıydı ve sert zeminleri kaplayan mikrobiyal halılar ile küçük sediman yamaları olarak özellikle görülebiliyordu; bu halılar, geniş sert zeminli habitatların içinde yer alıyordu. Bu çevreleyen sert zeminler, yaygın rafla ilişkili süspansiyon beslenen türlerden oluşan zengin megafauna topluluklarını destekliyordu. Grimsey’de sert zemindeki mikrobiyal halılar, genellikle bacalarda, az sayıda görülebilir megafauna (görselde başına 0,4 birey) barındırıyorduysa da, fiziksel örneklemeler, görüntülerle tek başına görülemeyen çıkış etkisindeki sedimanlarda ve sert zeminlerdeki makrofauna topluluklarını ortaya koymuştu. Grimsey alanının çevresindeki bazı denizanasları, muhtemelen mikrobiyal kökenli beyaz iplikçikli malzemeyle kaplıydı. İki çıkış alanının da içinde, görüntü tabanlı ve fiziksel örneklemeler biyoçeşitliliğin tamamlayıcı yönlerini ortaya koydu ve görsel olarak seyrek habitatların küçük gövdeli ve sedimanla ilişkili fauna barındırabileceğini gösterdi. Topluluk bileşimi habitatlar arasında farklılık gösterirken, Kolbeinsey ile Grimsey arasındaki bölgesel farklılıklar muhtemelen derinlik, jeoloji, zemin erişilebilirliği ve çıkış sıvısı etkisindeki değişimlere yansımaktadır. Bu bulgular, nadir ve uzaysal olarak kısıtlı ekosistemler için çıkış alanına özgü koruma önlemlerini destekleyen önemli bir biyoçeşitlilik temel düzeyi sunmakta ve çıkış alanları içindeki ince ölçekli habitat heterojenliğini vurgulamaktadır.
\n
1 Giriş
\n
İsveç’in Atlantik Ortası Kırığı üzerinde yer alması, levha ayrılma hareketi ve sıcak nokta faaliyetinin sık sık magmatik aktivite ve aktif hidrotermal dolaşımı tetiklemesine yol açmaktadır (Zindler ve ark., 1979; Hardarson ve Fitton, 1997). İskoçya’daki hidrotermal sistemler Reykjanes Kırığı, Kolbeinsey Kırığı ve Kuzey İskoçya açıklarındaki Tjörnes Kırık Kuşağı gibi ilişkili transform faylarında ortaya çıkar; bu sistemler Eyjafjörður’daki Strýtan gibi sığ kıyı sistemlerinden, birkaç yüz metre derinliğindeki sırt-çizgisi alanlarına kadar değişmektedir (Fricke ve ark., 1989; Gudmundsson ve ark., 1993; Hannington ve ark., 2001; Marteinsson ve ark., 2001; Twing ve ark., 2022) (Şekil 1). İskoçya raf ve eğim suları, Atlantik ve Arktik su kütlelerinin karışımıyla şekillenmekte; bu durum üretkenliği artırırken aynı zamanda belirgin aralar arası ve on yıllık değişkenlik yaratmaktadır (Malmberg ve Kristmannsson, 1992; Astthorsson ve ark., 2007). Ayrıca, Kuzey Denizleri’nde Atlantik kökenli suyun giderek artan etkisi, bu eşleşmiş sistemi değiştirmeye başlamıştır (Asbjørnsen ve ark., 2020; Cerfonteyn ve ark., 2023). Sığ İskoçya hidrotermal alanları, endemik hidrotermal uzmanlarından ziyade bölgesel raf ve boreal faunasından büyük ölçüde oluşan toplulukları barındırmaktadır (Taylor ve ark., 2021; Brix ve ark., 2022).
\n
Şekil 1
\n
Jeotermal bacalar derinlik açısından geniş bir aralıkta bulunur ve çeşitli biyolojik toplulukları barındırır (Levin ve ark., 2024). InterRidge Küresel Veritabanında belgelenen 721 bacalanın 666’sı aktif olduğu doğrulanmış veya tahmin edilmiştir (Beaulieu ve Szafrański, 2020); ancak sığ sularda yer alan bacalar derin deniz bacalarına göre çok daha az keşfedilmiş olup dünyada yalnızca birkaç on tanesi bilinmektedir (Zhang ve ark., 2020; Menini ve ark., 2023). Tüm bacalar toplulukları, jeotermal sıvıların çevresel deniz suyuna karıştığı keskin kimyasal ve termal geçişlerle karşılaşır. Derin deniz bacaları, kemosenteze doğrudan veya dolaylı olarak bağımlı, büyük boyutlu ve genellikle endemik türlerin yoğun popülasyonlarını destekler ve yüzlerce tür zorunlu sakin olarak kabul edilir (Van Dover, 2002; Tarasov ve ark., 2005; Desbruyères ve ark., 2006; Chapman ve ark., 2019; Alfaro-Lucas ve ark., 2024). Sığ sularda yer alan bacalar üst 200 metrede bulunur; burada güneş enerjisiyle üretilen organik maddeler zengindir ve toplulukları büyük ölçüde kıyısal ve genel amaçlı türlerden oluşur; zorunlu tür sayısı azdır (Tarasov ve ark., 2005; Chan ve ark., 2016). Dolayısıyla derin bacalar kemosimbiyotik özelleşme ve yüksek endemizmle karakterize edilirken, sığ bacalar çoğu faunasını çevreleyen raf ekosistemleriyle paylaşır ve karışık enerji kaynaklarına dayanır; fotosentezle üretilen organik maddelerin çoğu sağlanırken, mikrobiyal halılar gibi kemosentezle üretilen üretim yerel bir besin kaynağı ekler (Tarasov ve ark., 2005; Dando, 2010; Taylor ve ark., 2021).
\n
Kaynak alanları, sıvı akışı, mineral birikimi ve arazi karmaşıklığı arasındaki etkileşimler aracılığıyla ince ölçekli yaşam alanı mozaikleri oluşturur. Bu etkileşimler, santimetrelerden yüzlerce metreye uzanan ölçeklerde substrat türü, eğim ve gözeneklilik açısından birbirinden farklı yaşam alanları üretir. Bu alanlar, anhidrit veya sülfat açısından zengin bacalardan, metalle zenginleşmiş ve zenginleşmemiş sert substratlara ve sedimantlara kadar çeşitlilik gösterir (Hannington ve ark., 2001; Taylor ve ark., 2021; Gollner ve ark., 2026). Bu heterojenlik, bentik çeşitliliğin temel bir sürücüsüdür, çünkü niş kullanılabilirliğini ve mikro sığınakları artırır. Böylece, yerleşik süspansiyon beslenicileri, hareketli detritivorlar, otçuklar ve avcıların tek bir kaynak alanında birlikte yaşayabilmesi sağlanır. Sert substratlar genellikle süngerler, hidroidler, briyozoanlar ve aktinyalar tarafından baskın olurken, sedimanlar infauna ve hareketli çöpçülere destek sağlar (Tarasov ve ark., 2005; Gollner ve ark., 2015; Donnarumma ve ark., 2019; Perez ve ark., 2021; Taylor ve ark., 2021; Gollner ve ark., 2026). Bu jeomorfoloji üzerine katmanlanan kaynak sıvıları, mikrobiyal ve fauna topluluklarının şekillenmesinde rol oynar. Derin kaynaklarda, fauna genellikle kaynak sıvılarının deniz suyuyla karıştığı termal ve kimyasal eğimlerin boyunca zonlanmıştır (Gollner ve ark., 2010; Marsh ve ark., 2012; Copley ve ark., 2016). Buna karşılık, sığ kaynaklarda tür dağılımı substrat türüne daha sıkı bir şekilde uyuyor gibi görünmekte ve ayrı kaynak topluluklarına bölünme gözlemlenmemektedir (Chan ve ark., 2016; Taylor ve ark., 2021).
\n
Kolbeinsey ve Grimsey kuyularının aynı subarktik bölgede farklı taban malzemeleri, derinlikler ve sıvı rejimlerinde nispeten derin olmayan kuyu topluluklarını karşılaştırmayı mümkün kıldığı belirtiliyor. Kolbeinsey, yaklaşık 100 metre derinlikte bulunan Kolbeinsey Sırtı’nda yer alıyor ve derin olmayan, bazaltlı bir sistem olarak tanımlanmış; yaygın kuyudan çıkış, yastık lavları ve çakıl bazaltları görülse de dumanlı bacalar bulunmuyor. Raporlanan sıvı sıcaklıkları yaklaşık 70 ile 160 derecenin arasında değişiyor ve ortam sularıyla güçlü bir karışım söz konusu. Mikrobiyel çalışmalar, koşulların termodofil ve hipertermodofil organizmaları desteklediğini gösteriyor; görünen makrofauna ve megafauna ise boreal ve Arktik raf türlerinden oluşuyor (Fricke ve ark., 1989; Botz ve ark., 1999). Sycon (Risso, 1826) ve Tethya (Lamarck, 1815) gibi süngerler, hidroid polipleri, aktinyalar, kabuklular ve yumuşacıklar, sert tabanlı toplulukun karakteristik bileşenleri arasında yer alıyor (Fricke ve ark., 1989; Marteinsson ve ark., 2001; Brandt, 1993; Brandt ve Piepenburg, 1994). Grimsey kuyuları daha derinde, yaklaşık 400 metre derinlikte Tjörnes Kırık Kuşağı içinde yer alıyor ve sayısız talk benzeri mineral fazları içeren anhidrit bacaları bulunan, yüksek sıcaklıklı ve sedimanlı bir sistem olarak nitelendiriliyor. Bu bacalardan en fazla yaklaşık 250 derecelik kuyu sıvıları dışarı akıyor ve çıkışta kaynamaya ulaşarak baloncuk sütunları oluşturabiliyor (Hannington ve ark., 2001; Kuhn ve ark., 2003; Geptner ve ark., 2002). Grimsey’nin faunası henüz tanımlanmamış olsa da mikrobiyel halılar belgelenmiş (Hannington ve ark., 2001).
\n
Derinlikli kumullar birden fazla baskı altında kalabilir. Tabana teması olan balıkçılık, özellikle balıkçılık alanlarının sırt-çizgisi veya raf-kenarı habitatlarıyla örtüştüğü yerlerde, kırılgan kumül yapılarını ve hareketsiz organizma topluluklarını hasar verebilir. Reykjanes Sırtı’nda bulunan İzlanda kumül bölgelerinde kaybolmuş uzun hatlı aklar ve ağların belgelenmesi, balıkçılığın etkilerine maruz kalındığını göstermektedir (Taylor ve ark., 2021). Deniz tabanındaki kütleli sülfür kaynaklarının madencilik için artan ilgi, derin deniz kumüllerindeki etkiler konusunda endişeleri artırdı. İzlanda sularındaki hidrotermal kumül bölgelerinde bugüne kadar böyle bir madencilik faaliyeti yürütülmemiş olsa de, küresel değerlendirmelerden alınan dersler, bentik toplulukların kırılganlığını ve etkiden sonraki iyileşmenin zorluğunu vurgulamaktadır (Van Dover ve ark., 2014; Gollner ve ark., 2015). Buna ek olarak, iklim kaynaklı değişimlerin bu sistemleri etkilemesi beklenmektedir (Donnarumma ve ark., 2019). Hidrotermal kumüller, derin deniz balıkçılığı kılavuzlarında kırılgan deniz ekosistemleri olarak listelenmiş (FAO, 2009) ve bilimsel kriterler onları koruma gereken ekosistemler olarak tanımlamıştır (Gollner ve ark., 2021).
\n
Yüksek enlemli derinlikli kumüller, en az çalışılmış kumül sistemleri arasında yer almaya devam etmektedir. Bu çalışma, Kolbeinsey ve Grimsey kumül bölgelerinde dev ve makrofaunal çeşitliliği ile topluluk yapısını incelemektedir. Yukarıda uygulanan derinlik tanımına göre, Kolbeinsey derinlikli kumül kategorisine girmektedir, Grimsey ise bu kategorinin altındadır. Bu nedenle iki bölgeyi tek bir kumül tipinin tekrarları olarak değil, farklı derinlik kuşaklarını temsil eden alanlar olarak ele alıyoruz. Hipotezimiz, dev faunal bileşiminin iki kumül bölgesi arasında derinlik ve bölgesel tür havuzundaki farklılıkları yansıtarak değiştiğidir ve her kumül bölgesinde toplulukların substrat tipine ve kumül sıvı rejimine göre şekillendiğidir. Yüksek enlemli derinlikli kumüllerde farklı habitat tiplerinin ve bölgesel tür havuzlarının toplulukları nasıl şekillendirdiğine dair anlayışa katkı sağlıyor ve koruma ile uzun vadeli gözlem için bir temel sunuyoruz.
\n
2 Yöntemler
\n
2.1 Dev Fauna: ROV anketleri ve görüntü notlandırması
\n
2021 yılında 1 ile 15 Temmuz tarihleri arasında RV Pelagia gemisinde gerçekleştirilen IceAGE_KR (64PE475) seferi, HD kameralarla donatılmış GEOMAR (Kiel)’a ait uzaktan kumandalı araç (ROV) PHOCA kullanılarak kuyu alanlarının videolarının kaydedilmesi amacıyla yapıldı. Kolbeinsey ve Grimsey kuyu alanlarında navigasyon için, yayınlardan (Fricke vd., 1989; Hannington vd., 2001) ve RV Poseidon seferi POS229a/b için hazırlanan rapordan (Stoffers vd., 1997) elde edilen coğrafi koordinatlar referans olarak kullanıldı.
\n
Kolbeinsey ve Grimsey kuyu alanlarında gerçekleştirilen toplam 12 dalışın her dalışın ortalama süresi 4:23 saat olarak belirlendi. Bu dalışlar sırasında, bu seferde yürütülen farklı bilimsel projelerin hedeflerine ulaşmak amacıyla çeşitli örnekleme yöntemleri kullanıldı. Çalışmanın merkezi hedefi, habitat tiplerine göre mega- (karede görünüyor ise parantez içinde işaretlenir) ve makrofauna (>1 mm, fiziksel olarak örnekleme) topluluklarının karakterize edilmesidir; ancak diğer projelerin çeşitliliğinin sonucunda, megafauna analizinden örneklemeyi içeren video kesintilerinin çıkarılması gerektiği ortaya çıktı. Videoları gözden geçirdikten sonra, 12 ROV dalışının görüntüleri kare çekimleri (frame grabs) haline getirildi ve her karenin zamanı ve tarihi kaydedilerek Hafmynd’a yüklenen günlük dosyalarla eşleştirildi. Hafmynd, İzlanda Deniz ve Tatlı Su Araştırma Enstitüsü’ndeki standart görüntü anotasyon yazılımıdır (Björn Darri Sigurðsson tarafından geliştirildi; önceden İzlanda Balıkçılık İdaresi, şimdi İzlanda Doğal Bilimler Enstitüsü). Bu yazılımda görüntülerin anotasyonu yapılırken, kullanıcılar tek tek görüntülerde gözlemlenen taksonları kaydedebilir, birey sayısını sayabilir veya yüzdelik örtüşmeyi tahmin edebilir. Her anotasyon, görüntüdeki bir konumsal konumla (x, y) ilişkilendirilir. Taksonlar, World Register of Marine Species (WoRMS)’tan türetilen bir listeden seçilir (Ahyong ve ark., 2024); bu listede her takson, AphiaID’si ve tam taksonomik hiyerarşisiyle bağlanır, böylece birden fazla taksonomik seviyede tanımlama yapılabilir. Bir organizma belirli bir taksona atanamadığında, kullanıcılar süngerlerin morfolojik tipleri gibi (örneğin küresel, dallı) “konsept” olarak anotasyon yapabilir. Böylece “konsept”, organizmayı tanımlayan genel terimler (örneğin koloni tünika, sarı kabuk vb.) temelinde bir morfospesiyi temsil eder. Ayrıca, Coastal and Marine Ecological Classification Standard’a (Federal Geographic Data Committee, 2012) dayalı substrat bilgileri de her görüntüye atanabilir. Hafmynd, tüm anotasyonların girildikleri şekilde saklandığı bir Oracle veritabanıyla bağlantılıdır. Videolardan, R’da sabit on saniyelik aralıklarla toplam 19.000 görüntü çıkarıldı. Sadece
\n
Görünmeyen deniz tabanının, çok bulanık görüntünün ya da kamera konumunda anlamlı bir değişim olmadan yapılan durağan örnekleme işlemlerinin yansıttığı kare çekimler atıldı. Bu filtreleme adımından sonra 3.065 kare çekim Hafmynd’a yüklendi. Bu kare çekimlerden 984 tanesi, bu çalışmadaki habitat özgü megafauna analizi için etiketlendi. Kare çekimler NIOZ veri havuzunda (https://doi.org/10.25850/nioz/7b.b.zk) kayıtlı ve erişime açık. Görünür deniz tabanı olduğunda, aynı görüntü alanının tekrar tekrar sayılmasını azaltmak amacıyla önceki saklanan görüntüden farklı bir kamera açısı sağladığında ve fauna ya da substrat özellikleri güvenilir biçimde sınıflandırılabildiğinde kare çekimler etiketleme için saklandı. Ardışık etiketli görüntüler arasındaki minimum aralık on saniyedir (medyan yirmi saniye). ROV navigasyonuna dayanarak ardışık etiketli görüntüler medyan olarak 2,3 metre uzaktı. Görüntüler arasındaki örtüşmenin sonuçları etkileyip etkilemeyeceğini test etmek amacıyla, tüm megafauna analizleri, aynı dalıştan önceki saklanan görüntüden 2 metre ve 5 metre daha az uzaklıktaki görüntülerin çıkarılmasıyla tekrarlandı.
\n
Ek Tablo S11
\n
) Dalış başına, habitat başına ve dalış-habitat kombinasyonuna göre etiketli görüntü sayısı
\n
Ek Tablolar S4
\n
S5
\n
S6
\n
‘da verilmiştir. Örnekleme çabası habitatlar arasında farklılık gösterdi ve çeşitlilik analizlerinde birey bazlı nadirleştirme yöntemiyle dikkate alındı.
\n
Tür etiketlemelerinde gözlemlenen birey sayısı kaydedilirken, konsept alanı farklı süngerler, yumuşak mercanlar, koloni tünükler ve poliket borularını morfospesiye benzer kategorilere sınıflandırdı.
\n
Her işaretli kare yakalama, En Küçük Alanlar ve Deniz Ekolojisi Sınıflandırma Standartı’na (Federal Coğrafi Veri Komitesi, 2012) (Şekiller 2A–E, 3A–E) göre tek bir substrat sınıfına atanmıştır; bu da görüntünün en büyük kısmını kaplayan substrattır. Jeolojik sınıflar yastık lavı, çakıl, büyük kaya bloğu ve ince sedimanlardır. Deniz tabanının beyaz mikrobiyal örtülerle (muhtemelen sülfür oksitleyiciler) kaplı olduğu yerlerde, işaretçiler örtüyü kaydettikleri gibi, mümkün olduğunda örtünün sert substrat üzerinde mi yoksa sediman üzerinde mi yattığını da not ettiler. Bu durum üç mikrobiyal örtü sınıfı ortaya çıkardı: sert substrat üzerindeki mikrobiyal örtü, sediman üzerindeki mikrobiyal örtü ve substratı belirlenemeyen mikrobiyal örtü. Kolbeinsey’de, ki burada bacalar bulunmamaktadır, sert substrat yastık lavına işaret eder; Grimsey’de ise genellikle bacalara işaret eder. Görüntülerden yalnızca görülebilir, yoğun mikrobiyal örtü kaydedilebildiği için biz “mikrobiyal örtü” terimini “biyofilm” yerine kullanıyoruz. Grimsey’de bacaların parçaları beyaz taşlardan oluştuğu için, beyaz bir örtünün mikrobiyal örtüyü mi yoksa taşın kendisini mi temsil ettiğini her zaman görsel olarak doğrulayamıyoruz; ancak bacalarda çıkış suları var olması, mikrobiyallerin mevcut olma olasılığını yüksek kılıyor. Bir görüntüde (jeolojisine göre sınıflandırılmış 984 görüntünün 16’sında) mikrobiyal örtü işaretlemesi yapıldığında, görüntü jeolojik sınıfını korur. Eksik Tablo S8, ortaya çıkan habitat başına görüntü, birey ve takson sayılarını, her mikrobiyal örtü işaretlemeli görüntünün sert substrat üzerindeki bir örtü sınıfına veya sediman üzerindeki bir örtü sınıfına atanmış alternatif bir kodlamayla karşılaştırır.
\n
Şekil 2
\n
Şekil 3
\n
2.2 Batimetrik haritalama ve deniz tabanı bozulması
\n
2.3 Makrofauna örneklerinin toplanması ve işlenmesi
\n
Grimsey kuyu alanının yüksek çözünürlüklü batimetri verisi, 2023 yılında GEOMAR tarafından işletilen, çok ışınlu ekolayıcı donanımı bulunan ve deniz tabanından 25 metre altı yüksekliğinde çalıştırılan hover otonom denizaltı aracı (AUV) Anton ile AL595 seferi sırasında elde edilmiştir (Hölz ve ark., 2023). Girona 500 sınıfı araç Anton, Girona 500 sınıfı bir araçtır. Beş anket paneli yaklaşık 1,4 km² alanı kapsayan ve yatay çözünürlüğü yaklaşık 40 cm olan bir haritaya birleştirilmiştir. Bu harita, kuyuların ve örnek alma noktalarının konumlandırılmasında ve deniz tabanına temas yapan balıkçılığın izlerinin araştırılmasında kullanılmıştır. Ayrıca, her iki kuyu alanına ait ROV görüntüleri (Bölüm 2.1), sürünme izleri ve insan kaynaklı bozulmanın diğer işaretleri açısından incelenerek, incelenen toplulukların insan faaliyetleri tarafından görünür şekilde etkilenip etkilenmedikleri değerlendirilmiştir (Bölüm 3.4).
\n
Makrofauna, ROV PHOCA’nın manipülatörü kullanılarak belirlenen sert substrat yaşam alanı türlerinden toplanmış ve her örnek, izole bir örnek kutusuna yerleştirilmiştir. Sedimanlar, ağlar, itme veya çoklu örnek alma aletleriyle (
\n
Ek Tablo S1
\n
) toplanmıştır. Örneklenen alan ve hacmin (her zaman) standartlaştırılamadığı için bunlar (yarı-)nitel olarak değerlendirilmiş ve birim alana göre bolluk tahmini amacıyla kullanılmamıştır. Sıcaklık, ROV tarafından işletilen GEOMAR’a ait sıcaklık sondasıyla (± 0,1 °C) ROV örnek alma noktalarının 38’inde ölçülmüştür. Gemide, fauna soğuk süzülmuş deniz suyu (32 µm) ile sert substrattan (yani bazalt veya kuyu yapılarından) yıkanmış ve 1 mm ile 32 µm süzgeçler üzerinden süzülerek makro- ve mezyofauna elde edilmiştir. Fauna, %95 etanol (EtOH) veya %4 tampon formalinde muhafaza edilmiştir. Sediman örnekleri doğrudan %95 EtOH veya %4 tampon formalinde muhafaza edilmiştir. Karaya dönüldükten sonra, sediman örnekleri 1 mm ve 32 µm süzgeç üzerinden süzülmiş deniz suyu (32 µm) ile durulanmış ve hayvanlar, orijinal sabitleme formalin ise %95 veya %70 EtOH’da saklanmıştır. Tüm makrofauna, stereomikroskop (Leica, EZ4W) kullanılarak daha üst taksonlara kadar ayıklanmış ve tanımlanmıştır. Bu çalışma için toplam 38 ROV ile toplanan örnek ve dört çoklu örnek alma örneği işlenmiştir (
\n
Ek Tablo S1
\n
) Makrofaunal yaşam alanları örneklem anında belirlendi. Kolbeinsey’de bunlar şunları kapsadı: sert zemin üzerinde bir mikrobiyal mat örneği (kaynaktan etkilenen), üç yastık lav örneği (kaynaktan etkilenen), sediment üzerinde beş mikrobiyal mat örneği (kaynaktan etkilenen) ve beş çınar (ambient) örneği. Grimsey’de ise bunlar şunları kapsadı: sert zemin üzerinde sekiz mikrobiyal mat örneği (kanyon, kaynaktan etkilenen), sediment örneği üzerinde yedi mikrobiyal mat örneği (kaynaktan etkilenen), ambient çınar yaşam alanlarından yedi örnek ve iki ambient ince sediment örneği. Böylece görüntü tabanlı analizlere kıyasla makrofauna için bir kategori daha atandı (Kolbeinsey’de: kaynaktan etkilenen yastık lav, burada parlayan su tespit edildi ancak gözle görülebilir mikrobiyal mat gözlemlenmedi). Ayrıca Grimsey kaynağı alanında (kanyon 1 ile 2 arasında) ve kaynağın 1 km doğusunda her biri iki adet çoklu örnekleme örneği alındı. Kaynaktan etkilenen ve ambient ayrımı, makrofauna örneklerinin toplandığı noktalarda ROV sıcaklık sondası ile yapılan ölçümlere dayanmaktadır. Ambientin üzerindeki tüm ölçümler (Kolbeinsey’de 5-6 °C, Grimsey’de 2 °C; Gollner, 2021;
\n
Ek Tablo S1
\n
) kaynaktan etkilenen olarak tanımlanır. Sıcaklık ölçümü eksik olduğunda, sınıflandırma
\n
in situ
\n
video gözlemlerine dayanır, örneğin sıcak kaynak akışının göstergesi olarak parlayan su ve mikrobiyal mat örtüsü.
\n
2.4 İstatistiksel analizler
\n
Tüm analizler R sürümü 4.3.3 (R Core Team, 2024) kullanılarak gerçekleştirildi. Her megafaunal kayıt, görüntülerden belirlenebilen en düşük taksonomik seviyeye atandı; bunun için WoRMS adı kullanıldı veya ad verilemediği durumlarda morftip kavramı uygulandı. Zenginlik matrisinden üç takson hariç tutuldu: Yüzgeçsiz omurgasızlar (Hydrozoa), bunlar sayılabilir birey olarak değil yüzdelik örtü olarak kaydedildiği için; ve pelajik sürü oluşturan Meganyctiphanes (Holt ve Tattersall, 1905) ile çok hareketli demersal Gadus morhua (Linnaeus, 1758), bu ikisi de görüş alanında geçici olarak bulunur ve çalışılan bentik toplulukun parçası değildir.
\n
Çalışmaya giren 85 operasyonel taksonomik birimden (OTU) 29’u tür veya cins düzeyine, 18’i aile veya takım düzeyine, 16’sı daha üst takson düzeyine indirgenmiş, 22’si ise resmi olmayan morfolojik tiptir (Eksik Tablo S7). Dolayısıyla tüm zenginlik değerleri OTU zenginliği olarak hesaplanmakta ve tanımlama çözünürlüğüne bağlı olarak, tür zenginliği ile eşdeğer değildir. Bu karışık çözünürlüğün sonuçları etkileyip etkilemediğini test etmek amacıyla, çeşitlilik ve çok değişkenli analizler tek bir taksonomik düzeyde yeniden yürütülmüş; tüm birimlerin aile düzeyine veya daha ince bir düzeyde indirgenmesi sağlanarak aile düzeyinde ve tüm birimler phylum düzeyine atanabildiği için phylum düzeyinde analiz tekrarlanmıştır (Eksik Tablo S10). Mikrobiyal örtüşme sayı olarak değil, yüzdelik örtüşme olarak kaydedilmiştir; yanlışlıkla bireysel sayılar taşıyan üç kayıt düzeltilmiştir (Eksik Tablo S9). Eksik Tablo S7‘deki OTU adları, görsel tabanlı tanımlamalar için açık adlandırma önerilerine (Horton ve ark., 2021) uygun biçimde verilmiştir; okunabilirlik açısından metin adın niteliğini içermeyen hâlini kullanmaktadır.
\n
Kolbeinsey ve Grimsey hidrotermal vent alanları için her bir yaşam alanı ve vent alanında, tüm işaretli görüntülerin megafauna sayıları birleştirilerek OTU zenginliği, Shannon–Wiener indeksi ve Simpson indeksi hesaplandı (R paketinde fonksiyonel çeşitlilik vegan; Oksanen vd., 2022). Buna ek olarak, örneklem çabası ölçüsü olarak birey sayısı ve işaretli görüntü sayısı da belirlendi (Tablo 1). Aynı indeksler, tüm yaşam alanları üzerinden birleştirilen sayıların kullanıldığı her vent alanı için de hesaplandı. Yaşam alanı bileşimi, her yaşam alanı ve vent alanı için işaretli görüntülerin yüzdesi olarak ifade edilirken, her OTU’nun bolluğu da yaşam alanı başına birey sayısı olarak verildi (Eksiksiz Tablo S3). Yaşam alanı başına işaretli görüntü sayısı üç ile 399 arasında değiştiğinden, zenginlik ayrıca en küçük birey sayısı olan, fauna bulunan her yaşam alanında kaydedilen dokuz bireye indirgenmiş nadirleştirme (function rarefy) ile standartlaştırıldı; Hill sayıları sırasıyla q = 1 ve q = 2 için hesaplandı (function renyi, hill = TRUE), bu da nadir taksonları giderek daha az ağırlıklı hale getiriyor (Tablo 2). İki vent alanı arasındaki karşılaştırmada zenginlik ayrıca Grimsey’de kaydedilen 542 bireye indirgenmiştir. Makrofauna sayıları Eksiksiz Tablo S2‘de verilmiştir; çoklu örnekleme örnekleri için 10 cm² başına standartlaştırılmış yoğunluklar da yer almaktadır. Makrofauna yalnızca daha üst taksonlara kadar tanımlandığından ve ROV örnekleri nitel olduğu için bu örnekler için çeşitlilik indeksi hesaplanmamıştır.
\n
Tablo 1
\n
| Kaynak alan | Yaşam ortamı | Zenginlik | Shannon | Simpson | Toplam birey sayısı | Toplam etiketli görüntü |
|---|---|---|---|---|---|---|
| Grimsey | Kaya zemininde mikrobiyal mat | 17 | 2.300 | 0.855 | 53 | 133 |
| Grimsey | Mikrobiyal mat, zemin belirlenemiyor | 6 | 1.677 | 0.790 | 9 | 25 |
| Grimsey | Kaya bloğu | 11 | 1.591 | 0.650 | 44 | 12 |
| Grimsey | Kaya parçacığı | 7 | 1.498 | 0.690 | 20 | 14 |
| Grimsey | İnce çamur | 10 | 0.617 | 0.243 | 416 | 81 |
| Kolbeinsey | Kaya zemininde mikrobiyal mat | 0 | — | — | 0 | 3 |
| Kolbeinsey | Çamur üzerinde mikrobiyal mat | 6 | 1.317 | 0.659 | 65 | 36 |
| Kolbeinsey | Mikrobiyal mat, zemin belirlenemiyor | 7 | 1.332 | 0.690 | 193 | 140 |
| Kolbeinsey | Kaya bloğu | 17 | 2.313 | 0.862 | 344 | 16 |
| Kolbeinsey | Kaya parçacığı | 39 | 2.629 | 0.901 | 2215 | 125 |
| Kolbeinsey | Yastık lavı | 43 | 2.745 | 0.907 | 4545 | 399 |
\n
Grimsey ve Kolbeinsey kaynak alanlarında gözlemlenen taksonomik zenginlik, çeşitlilik (Shannon ve Simpson endeksleri), megafaunal bireylerin toplam sayısı ve etiketli görüntü sayısı için yaşam ortamı düzeyinde özet.
\n
Değerler çaba düzeyine bağlıdır ve Tablo 2 ile birlikte okunmalıdır.
\n
Tablo 2
\n
Radyasyon zenginliği ve Hill çeşitliliğinin, habitat ve kuyu alanı başına megalavalar için hesaplanması.
\n
Radyasyon zenginliği, fauna içeren her habitatın en küçük örnekleminden (dokuz birey) beklenen takson sayısıdır; bu en küçük örneklem, fauna barındıran herhangi bir habitat için kaydedilen en düşük değerdir. Hill sayıları sırasıyla q = 1 ve q = 2 için sırasıyla Shannon endeksinin üssü ve ters Simpson endeksidir; gözlemlenen birleştirilmiş topluluklardan hesaplanır ve radyasyona uğramaz; bu nedenle rapor edilir, çünkü q arttıkça nadir taksonların ağırlığı azalır ve böylece karşılaştırmaya örneklem çabasına duyulan duyarlılık düşer.
\n
Bileşimsel farklılıklar, nispi bolluklara (sayıların örnek toplamına bölünmesiyle) dayalı Bray–Curtis benzerlik farkı ile analiz edildi; megafauna verileri, sayısal olarak baskın taksonların etkisini azaltmak amacıyla kök dönüşümü uygulandı. Makrofauna verileri, sekiz üst taksonu içermekte olup dönüşüme tabi tutulmadı; duyarlılık testi olarak makrofauna PERMANOVA’sı kök dönüşümüyle yeniden gerçekleştirildi. Megafauna için, tek bir ROV dalgışında aynı habitatın tüm görüntüleri tek bir örnekleme birimi (dalgış başına habitat birimi) olarak birleştirildi, çünkü fauna içeren 704 görüntüden 421’i yalnızca tek bir OTU barındırdığından çoğu görüntü bileşim açısından karşılaştırılamıyordu; iki OTU’dan az olan birimler elendi. Makrofauna için birim tek bir ROV örneğiydi; farklı ekipmanla alınan dört multicorer örneği ve makrofauna içermeyen örnekler elendi. Habitatlar arası ve vent alanları arasındaki farklılıklar, permutasyonlu çok değişkenli varyans analizi (PERMANOVA; vegan paketindeki adonis2 fonksiyonu, megafauna için 999, makrofauna için 9.999 permutasyon) ve çok değişkenli dağılım homojenliği (betadisper fonksiyonu, grup merkezine olan mesafeler üzerinde ANOVA) ile test edildi; her iki analiz de vegan paketinde (Oksanen ve ark., 2022) gerçekleştirildi ve anlamlılık düzeyi 0,05 olarak belirlendi. Megafauna için habitat terimine ilişkin permutasyonlar dalgişler içinde sınırlı tutuldu ve vent alanı terimi tüm dalgişler birim olarak kullanılarak test edildi, çünkü her dalgiş tek bir vent alanına aittir. Makrofauna için her habitat ya vent etkisi altındaki ya da ambient (etkisiz) bölgelerde örneklendi, böylece habitat vent etkisi altında yerleşik hale geldi ve iki terim arasındaki etkileşim tahmin edilemedi; bu nedenle terimler sırayla girildi: önce vent alanı, sonra vent etkisi, ardından habitat, böylece her terim öncekiler tarafından açıklanmayan değişimi test etti. Desenler, metrik olmayan çok boyutlu ölçekleme (nMDS; metaMDS fonksiyonu) ve grup ortalaması bağlamına dayalı hiyerarşik kümeleme (UPGMA) ile görselleştirildi; sonuncusu megafauna için birleştirilmiş habitat toplamlarına dayalı olduğundan betimleyicidir.
\n
3 Bulgular
\n
3.1 Kolbeinsey
\n
3.1.1 Yaşam alanı çeşitliliği
\n
Kolbeinsey jeotermal alanı, sırtın üzerinde yerel yüksek sıcaklıklı jeotermal çıkışlara sahip, bacasız ve bazalt baskın bir jeotermal sistem olarak tanımlandı. Küçük bir merkezi çıkış alanı, kayaç çatlaklarında maksimum ~162 °C sıcaklığa ulaştı (Şekil 4A); sıcaklıklar, ortam deniz suyu (5 °C) ile karışma nedeniyle kısa mesafelerde hızlı şekilde ~10 °C’ye kadar azaldı. Merkezi çıkış alanına yakın yastık lavlar, çoğunlukla küçük beyaz süngerler tarafından işgal edildi (Şekil 4B).
\n
Şekil 4
\n
Sırt, yastık lavlar (not edilen görüntülerin %55’i; Şekil 4C) ve çakıl taşları (%17) tarafından baskın olarak oluşturuldu. Sırtın merkezi çıkış alanının etrafında, jeotermal çıkışları destekleyen beyaz mikrobiyal örtüler (>10 °C; Şekiller 4D–F) kaydedildi; bunlar görüntülerin %25’inde gözlemlendi: %19’unda örtü altta yatan zemini tamamen kapladı (muhtemelen sert zemin), %5’inde jeotermal çıkışa maruz kalan çamur üzerinde yattı (~10–15 cm çamur derinliğinde 40–90 °C) ve %1’den azında belirginleşebilen sert zemin üzerinde bulundu. Çınar, en az yaygın yaşam alanı olan habitat (%2) idi (Şekil 5).
\n
Şekil 5
\n
Kolbeinsey jeotermal alanının batı kısmında çakıl taşları çok yaygındır. Doğu kısmı ise çınar, yastık lav, çakıl taşı ve mikrobiyal örtülerin karışımını gösterir ve bunlar çoğunlukla tanımlanamayan bir zemin üzerinde bulunur. Bu arada, merkezi alan çoğunlukla yastık lavlardan oluşur ve çamur üzerinde küçük çınar ve mikrobiyal örtü parçaları içerir (Şekil 6). Özetle, jeotermal alan, çoğunlukla sert zeminler üzerinde keskin termal ve ekolojik gradyanlar gösterir; çamur birikimi sınırlıdır ve jeotermal akış yereldir.
\n
Şekil 6
\n
3.1.2 Megafauna toplulukları
\n
Kolbeinsey kanyeri alanında, 719 kare görüntüsünden 65 megafauna taksonu belirlendi ve bunlardan 7.362 birey sayısı elde edildi (Tablo 1; Eksik Tablo S3). Genel çeşitlilik yüksekti; Shannon-Wiener indeksi 3,03 ve Simpson indeksi 0,93 olarak hesaplandı.
\n
Görüntü veri setinde yastık lav ve çakıl baskındı ve kaydedilen bireylerin çoğu ile en yüksek gözlenen zenginliği sağladı (Tablo 1). Yastık lav, koloniler halinde yaşayan böbrekçikler ve Gersemia (Marenzeller, 1878), Drifa (Danielssen, 1887) veya Duva (Koren ve Danielssen, 1883) gruplarına ait yumuşak mercanlar ile tanımlandı; bunların yanı sıra tanımlanamayan bir flabelle morftipi de bulundu (Şekil 7). Yastık lav görüntülerinin yarısından fazlasında somon balığı cinsi Sebastes kaydedildi. Çakıl toplulukları Phoronida, flabelle morftipleri, kütleli veya kaplı süngerler ve koloniler halinde yaşayan tünikler tarafından baskın olarak belirlendi (Şekil 7).
\n
Şekil 7
\n
Kaya, daha küçük bir oturan ve koloniler halinde yaşayan taksonlardan oluşuyordu; bunların başında Phoronida ve küçük tüplü beyaz süngerler yer alıyordu. Sediment üzerindeki mikrobiyal örtü, hormathiid denizyıldızcıklar (65 bireyden 35’i, bunlardan biri Hormathia nodosa olarak tanımlandı) tarafından baskın olarak belirlendi; burada da Sebastes görüldü. Tanımlanamayan bir alttaş üzerinde bulunan mikrobiyal örtü 140 görüntüde kaydedildi ancak yedi taksondan yalnızca 193 birey sağladı; bunların çoğu küçük tüplü beyaz süngerler (n = 79), Hormathiidae (n = 64) ve Sebastes (n = 33) idi. Bu, fauna içeren herhangi bir Kolbeinsey yaşam alanı için en düşük görüntü başına birey sayısıydı (ortalama 1,4 birey/görüntü, standart sapma 5,2; sediment üzerindeki mikrobiyal örtüde 1,8 ve jeolojik yaşam alanlarında 11,4 ile 21,5 arasında; Eksik Tablo S5). Sert alttaş üzerindeki üç mikrobiyal örtü görüntüsünde megafauna bulunmadı.
\n
3.1.3 Makrofauna toplulukları
\nKolbeinsey kanyeri alanında, makrofauna 14 ROV ile toplanan örnekten elde edildi ve 2.000 birey verildi (
Eksik Tablolar S1S2
). Sediment üzerindeki mikrobiyal mat’tan alınan iki örnek makrofauna içermeyerek sıfır bolluk örneği olarak raporlandı. Sayılar Karbonata (Krustacea) tarafından baskın olarak belirlendi, ardından Tunicata ve Mollusca (kabuklüler) izledi. Geri kazanılan bireylerin büyük çoğunluğunu kanyer etkisi altındaki yastık lavı (~10 °C) oluşturdu (2.000’den 1.845’i). Bu yaşam alanından alınan üç örnekte de Krustacea, Tunicata, Mollusca ve Polychaeta (çoklu ayaklı solucanlar) bulundu. Sert zemin üzerinde mikrobiyal mat’tan alınan tek örnek (ölçülmemiş, tahmini >10 °C) Mollusca ve Krustacea tarafından baskın olarak belirlendi. Çevresel blokta (~5 °C) küçük bir topluluk bulundu ve bu yaşam alanından alınan beş örnekte de Polychaeta ve Krustacea yer aldı. Sediment üzerindeki mikrobiyal mat (40 ila 90 °C) beş örnekte yalnızca beş birey verdi, bunların ikisi makrofauna içermiyordu. Bu çalışma için çevresel sediment örnekleri mevcut değildi.\n# Grimsby Jept Alanında Yüksek Sıcaklıklarda Anhidrit Kayaçları ve Tabanlarında Sıcak Sedimentler\n\n
Grimsby jept alanı, sayısız yüksek sıcaklıklı anhidrit kanyon ve kanyon tabanlarında bulunan sıcak sedimentlerle karakterize edildi (Şekiller 8A–R). İkisi de çoğu zaman beyaz mikrobiyal örtülerle kaplıydı; bu örtüler görüntülerin %60’ında kaydedildi: örtünün %50’sinde örtü sert bir zeminde (genellikle kanyon) bulunurken, %9’unda örtünün altındaki zemin belirlenemedi (Şekil 5). Annotasyon sırasında mikrobiyal örtü olarak sediment üzerinde kaydedilen görüntü yoktu, ancak bu örtüler oluşmaktadır (Şekil 3A) ve makrofauna için örneklenmişti (Bölüm 2.3). Kanyonlarda doğrudan odaklı akış içinde ölçüldüğünde jept sıvılarının maksimum sıcaklığı 169 ile 251 °C arasında değişirken, kanyon yüzeylerinde ölçüldüğünde 5 ile 18 °C arasında değişiyordu. Kanyon tabanlarındaki sıcak sedimentlerin sıcaklıkları oldukça değişkendi ve konuma ve sediment derinliğine bağlı olarak 2 ile 155 °C arasında değişiyordu (daha derin sedimentler her zaman daha sıcaktı). Sedimentler genellikle kükürt kokusuna sahipti. Kanyonlar 2021’de ROV ile, 2023’te ise AUV ile gözlemlendi. Kanyonlar boyut açısından değişkendi; yumuşak anhidritli yaklaşık 20–100 cm’lik kanyonlardan birkaç metre boyutunda (en fazla yaklaşık 15 m genişliğinde birikinti boyutu, kanyon yaklaşık 6 m yüksekliğinde) olanlara kadar uzanıyordu ve daha büyük olanların genellikle daha sert zemin yapısına sahip olduğu görülüyordu. Kanyon tabanlarındaki sedimentler bazen sert bir yüzeye sahipti ve sediment/kaya/kayaç türünün sınıflandırılmasını zorlaştırıyordu.
\n
Şekil 8
\n
Bu anhidrit kanyonları arasında ince sedimentler (görüntülerin %31’i) bulunuyordu; gerisini kaya (%5) ve çakıl (%5) oluşturuyordu. Sedimentlerde, özellikle kanyon 1 ile kanyon 2 arasında düzenli olarak delikler gözlemlendi; bunlar muhtemelen gaz sızıntısı, potansiyel olarak gaz hidratlarından kaynaklanıyordu. Bu sedimentlerdeki örneklemeler gemide bir kez yüklendiğinde yaklaşık 3,5 saat boyunca gaz kabarcıkları salıyordu (Şekil 8C). Merkezi jept alanından daha uzak mesafedeki sedimentler (yaklaşık 1 km doğuda) herhangi bir gaz çıkışı göstermedi (Şekil 8R).
\n# Kolbeinsey ve Grimsey Hidrotermal Çukurlarında Yaşam Toplulukları\n\nGrimsey çukuru alanında, sert zemin üzerinde mikrobiyal halı en yaygın yaşam türünü temsil etmekte ve haritanın merkezden güneye uzanan büyük kısmını kapsayan araştırmacıların incelediği kesitte baskın konumda. Bu halı kaplı sert zeminler arasında ince çamur birikintileri yaygın biçimde gözlemleniyor (
Şekil 9
). Çakıl zeminler ise ayrı ayrı kümeler halinde, özellikle merkezde ve güneyde yalnızca birkaç izole noktada görülmekte. Çamur ve belirlenemeyen zemin üzerinde bulunan mikrobiyal halılar ise küçük, dağılmış parçalar halinde, çoğunlukla bacalar kümelerinin yakınında yer alıyor.\n\n# Şekil 9\n\n## 3.2.2 Büyük Hayvan Toplulukları\n\nGrimsey çukuru alanında, 265 kare görüntüsünden 35 büyük hayvan türü belirlenmiş ve bunlardan 542 birey sayılmış (
Tablo 1Eksik Tablo S3
). Genel çeşitlilik düşük düzeydeydi; Shannon-Wiener indeksi 1.46, Simpson indeksi ise 0.53 olarak hesaplandı.\n\nİnce çamur, kaydedilen 542 bireyden 416’sını oluşturdu ancak yalnızca on türü içerdi. Bu topluluk
Craniella
türü tarafından baskın biçimde yönetilmekte olup, bu 416 bireyden 361’i bu türü oluşturmaktadır (
Şekil 10A
). Burada kaydedilen diğer türler arasında,
Hormathia nodosa
(Fabricius, 1780;
Şekil 10B
) adeni,
Kukenthalia borealis
(Gottschaldt, 1894;
Şekil 10C
) deniz yosunu ve
Pandalus borealis
(Krøyer, 1838) karides bulunuyor. Çukurun çevresindeki adalar, birkaç durumda beyaz iplikçiklerle kaplanmış (
Şekil 😯
) ve benzer bir beyaz örtü anhidrit bacalarında da gözlemleniyor (
Şekil 10D
).\n\n# Şekil 10\n
Grimsey’deki Makrofauna Toplulukları
\n
Grimsey jeotermal alanında makrofauna, ROV ile toplanan 24 örnekten elde edildi ve 274 birey verildi (Eksik Tablolar S1, S2). Sert zeminde (kazançlar) bulunan mikrobiyal mat, en yüksek sayıda birey verildi (108) ve tüm sekiz örnekte Kabuklular (Crustacea) bulundu. Çevresel çakıl (~2 °C) da benzer şekilde Kabuklulara dayandı (86 bireyden 61’i) ve Kabuklular tüm yedi örnekte bulundu. Sediment üzerinde bulunan mikrobiyal mat yedi örnekten oluştu ve Polychaeta (67 bireyden 46’sı) baskındı; ancak bu bireyler iki örnekte yoğunlaştı. En yüksek kaydedilen sıcaklık olan 155 °C ile ilişkili örneği de içeren iki örnekte makrofauna bulunmadı. Çevresel ince sedimanlar, ROV ile toplanan iki örnekle temsil edildi ve 13 birey bulundu, bunların çoğu Polychaeta’dı. Vent alanının içinde (kazanç 1 ile 2 arasında) iki ve vent alanının doğusunda 1 km uzaklıktan iki olmak üzere dört ek multicorer ince sediman örneği, standartlaşmış yoğunluklar olarak ayrı raporlandı ve ROV ile toplanan sayılarla birleştirilmedi. 24 ROV örneği üzerinde, sayılar Kabuklular tarafından baskınlaştı, ardından Polychaeta geldi; Süngerler (Porifera), Tunikalar (Tunicata) ve “diğer” taksonlar kaydedilmedi.
\n
3.3 Grimsey ve Kolbeinsey Karşılaştırması
\n
Büyük fauna toplulukları esas olarak kuyu alanına göre ayrıldı (Şekil 11A). Beş Grimsey habitatı tek bir grup oluşturdu ve Bray–Curtis benzerlik farkı 0,81’de bir araya geldi; beş Kolbeinsey habitatı ise faunasıyla ayrı bir grup oluşturdu (0,85). Bu iki grup, benzerlik farkı 0,94 seviyesinde bir araya geldi. Kolbeinsey içinde, çamur üzerinde ve tanımlanamayan bir substrat üzerinde bulunan iki mikrobiyal mat habitatı bir araya geldi (0,56) ve üç jeolojik habitattan ayrı kaldı; bu jeolojik habitatlar arasında en benzer çift blok ve çakıl oldu (0,35) ve yastık lavı da onlarla 0,47’de bir araya geldi. Grimsey içinde habitatlar 0,58 ile 0,81 arasındaki benzerlik farklarında bir araya geldi. SIMPROF, iki kuyu alanının ayrımını ve Kolbeinsey içindeki gruplamayı destekledi (her ikisi de p = 0,001), ancak Grimsey içinde hiçbir alt bölünmeyi desteklemedi (p = 0,11; Ekseleran Tablo S12).
\n
Şekil 11
\n
Dalışın biriminde habitat PERMANOVA’sı, hem habitatın hem de kanyon alanının bileşimsel farklılıklarla ilişkili olduğunu doğruladı (habitat R2 = 0,43, p = 0,001, dalışlar arasında sınırlı permütasyonlar; kanyon alanı R2 = 0,51, p = 0,004, dalış biriminde). Her iki etki, analiz aile düzeyinde (habitat R2 = 0,51, p = 0,005; kanyon alanı R2 = 0,59, p = 0,002) ve filum düzeyinde (habitat R2 = 0,37, p = 0,006; kanyon alanı R2 = 0,41, p = 0,003) tekrarlandığında da anlamlı kaldı; ayrıca 2 metre ve daha az mesafedeki görüntüler (habitat R2 = 0,49, p = 0,001; kanyon alanı R2 = 0,50, p = 0,003) veya 5 metre ve daha az mesafedeki görüntüler (habitat R2 = 0,52, p = 0,001; kanyon alanı R2 = 0,44, p = 0,009) çıkarıldığında da anlamlı kaldı (Eksik Tablolar S10, S11). Çok değişkenli dağılım habitatlar arasında anlamlı biçimde farklılık gösterdi (p < 0,001), dolayısıyla habitat sinyalinin bir kısmı yalnızca konum farklarını değil, grup içi değişkenlik farklarını da yansıtmaktadır. Dağılım kanyon alanları arasında anlamlı biçimde farklılık göstermedi (p = 0,057). Düzenleme (Şekil 11B; gerginlik = 0,09) aynı ayrımı göstermektedir. Gözlenen zenginlik, Grimsey’deki 35 taksona kıyasla Kolbeinsey’de daha yüksekti (65 takson), ancak Grimsey’de kaydedilen 542 bireye nadirleştirildiğinde Kolbeinsey 36,5 takson verdi (standart hata, SE 2,3). Habitat düzeyinde, Grimsey’deki sert substrattaki mikrobiyal halde nadirleştirilmiş zenginlik (5,9), Kolbeinsey’deki yastık lavı (6,5) ve çakıl (6,3)’ya kıyasla karşılaştırılabilir düzeydeydi, ancak kaydedilen birey sayısı çok daha azdı (Tablo 2).
\n
Yüksek takson düzeyinde makrofaunal örnekler, megafaunaya göre daha heterojen bir örüntü gösterdi ve vent alanı açısından daha zayıf bir ayrım ortaya çıktı (Şekil 12A). Tek bir örnek (G_V_sediment3, tek bir kabuklu içeren) Bray–Curtis benzerlik katsayısı 0,93 ile diğer örneklerle birleşti. Diğer örnekler 0,65 düzeyinde SIMPROF tarafından desteklenen iki gruba ayrıldı (p = 0,001; Eksik Tablo S12). İlk grup (18 örnek), bireylerin %60 ile %100’ini Crustacea’nın oluşturduğu grup, sekiz Grimsey örneğinden yedi tanesini (sert zemindeki mikrobiyal mat), yedi Grimsey ortam çakıl örneğinden altı tanesini, her iki alandan da sedimentteki mikrobiyal mat örneğinden dördünü ve bir Kolbeinsey yastık lav örneğini içermekteydi. İkinci grup (15 örnek), Polychaeta’nın baskın olduğu örnekleri, özellikle her iki alandan sedimentlerle, Kolbeinsey yastık lavı, çınar ve sert zemindeki mikrobiyal mat kaynaklı karışık toplulukları birlikte iki Grimsey örneğiyle birleştirmekteydi. Vent alanı, değişimin anlamlı ama küçük bir oranını açıklayarak (R2 = 0,11, p = 0,020), vent etkisi ve habitat tipi ise yüksek takson düzeyinde anlamlı değildi (p = 0,052 ve p = 0,136); kök-dönüşümlü verilerde vent etkisi anlamlı hale geldi (p = 0,025). Tüm dağılım testleri anlamlı değildi. Düzenleme (Şekil 12B, gerginlik = 0,04) aynı örtüşmeyi daha doğrudan göstermektedir. Her iki vent alanında da megafaunal görüntülerde, derin sulardaki zorunlu sakinler olarak bildirilen hiçbir takson kaydedilmedi (Chan vd., 2016).
\n
Şekil 12
\n
3.4 Deniz tabanı gözlemleri
\n
ROV görüntüleri ile Grimsey jeotermal vent alanının AUV batimetrik verileri, tabana teması yapan balıkçılığın herhangi bir doğrudan fiziksel etkisini göstermemiş ve insan kaynaklı bozulmanın başka bir görünür kanıtı da gözlemlenmemiştir. Grimsey vent alanında, yüksek çözünürlüklü batimetrik harita, araştırılan alanda sayısız düzgün deniz yatağı yapısını ortaya koymaktadır (Şekil 13). Bu çizgiler haritanın kuzey kısmında özellikle belirgin olup yoğun, paralel yapılar oluşturmakta ve ek çizgiler güney sektöründe de görülmektedir. Ölçekleri ve biçimleri, miras kalmış buzul çukurlarının izleriyle uyumludur ve tabana teması yapan balıkçılık ekipmanlarının oluşturabileceği işaretlerin boyut aralığına uymamaktadır. Ayrıca haritanın tamamında görünen birkaç kuzey-güney yönünde uzanan çizgi, AUV veri toplama sürecinde oluşan bir artefakttır. Araştırılan görüntülerde görünür işaretlerin olmamasının, daha geniş alandaki balıkçılık baskısının bir değerlendirmesi anlamına gelmediğini vurgulamak isteriz; çünkü araştırma her bir vent alanının yalnızca küçük bir bölümünü kapsadı ve daha eski işaretlerin bu substratlarda kalıcı olmayabileceği unutulmamalıdır.
\n
Şekil 13
\n
4 Tartışma
\n
Kolbeinsey ve Grimsey kuyu alanları, İrlanda’nın kuzeyinde iki zıt hidrotermal sistem temsil eder. Kolbeinsey, yastık lavı, çakıl ve yerel yayılmış kuyu çıkışı bölgelerinden oluşan, yaklaşık 100 metre derinliğinde, bazalt tabanlı bir sistemdir. Grimsey ise sıcak anhidrit bacaları ve sıcak tortulların karakteristik olduğu, yaklaşık 400 metre derinliğinde, tortul tabanlı bir sistemdir. Bu jeolojik ve yaşam alanı farklılıkları, fauna topluluklarında da kendini gösterdi: dev faunanın bileşimi kuyu alanları arasında ve yaşam alanları arasında da değişti. Belirgin bir kuyu zorunluluğu fauna (genellikle “kuyu endemik” ile eş anlamlı kullanılan bir terim) gözlemlenmedi ve tür düzeyinde belirlenen taksonlar yaygın raf ömrüyle ilişkili boreal ve Arktik türlerdi (Fricke ve ark., 1989; Lörz ve ark., 2021). Ancak Kolbeinsey’deki mikrobiyal halı yaşam alanları, çevresel jeolojik yaşam alanlarına göre dev fauna bileşiminde farklıydı. Her iki kuyu alanı boyunca da çalışmalarımız yüksek yaşam alanı heterojenliğini gösterdi; her kuyu alanına beş-altı yaşam alanı sınıfı düştü. İki örneklem yaklaşımı da bentik toplulukun farklı bileşenlerini yakaladı. Görüntüler belirgin epifaunayı, uzaysal yaşam alanı desenlerini ve daha büyük organizmaların varlığının veya yokluğunun görülebilir biçimini çözemedi; fiziksel örneklemeler ise daha küçük gövdeli ve tortul ilişkili faunayı ortaya koydu. Özetle, Kolbeinsey faunası, hidrotermal aktivite tarafından yerel düzeyde değiştirilmiş bölgesel raf faunasının sert zemin topluluğu olarak en iyi anlaşılır. Grimsey ise, küçük gövdeli faunanın sıcak tortul ve anhidrit bacalı yaşam alanlarıyla ilişkili olduğu ve bölgesel dev faunanın kuyu alanında gerçekleştiği tortul tabanlı kuyu alanlarının özelliklerini paylaşır.
\n
4.1 Kolbeinsey kuyu alanı
\n
Kolbeinsey jeper alanı, yaklaşık 100 metre derinliğinde, hidrotermal aktivite daha geniş bir bazaltik habitat mozaiği içinde yerel olarak gerçekleştiği yapısal olarak karmaşık bir sert zemin sistemidir. Yastık lavı ve çakıl, görüntü veri setinde baskın olan zeminlerdi ve kaydedilen megafauna bireylerinin çoğunu barındırıyordu. Bu habitatlar, süngerler, briyozoanlar, yumuşak mercanlar, foronidler, tünikler ve bölgedeki tür havuzundan gelen diğer sert zemin faunası dahil olmak üzere otomatik organizmalar için tutunma yüzeyleri ve topoğrafik karmaşıklık sağlıyordu. Bu topluluklar, birçok derin olmayan ve raf ile ilişkili jeper sistemlerinde gözlemlenen genel desenle uyumludur; burada topluluklar genellikle sert zemin ve süspansiyon beslenmesinden faydalanırken, yüksek derecede özelleşmiş jeper-endemik temel türler tarafından domine edilmez (Thiermann ve ark., 1997; Cardigos ve ark., 2005; Tarasov ve ark., 2005).
\n
Hareketli demersal balıklar da görünen Kolbeinsey topluluğunun bir parçasıydı. Özellikle, alttan süpürme ağlarıyla İzlanda sularında hedeflenen altın kırmızı balık S. norvegicus‘ı içeren Sebastes cinsi, yastık lavı habitatlarında sık sık görülüyordu ve mikrobiyal yataklarda da kaydedilmişti. Ancak mevcut veriler, bu olgunun hidrotermal aktiviteye, sert zemin karmaşıklığına, sırt topoğrafyasına mı yoksa daha geniş bölgesel dağılım desenlerine mi bağlı olduğunu belirlememizi sağlamıyor. Balıkların jeper alanını bir sığınak veya beslenme yeri olarak kullanıp kullanmadıkları henüz test edilmeyi bekliyor.
\n
Kolbeinsey’deki hidrotermal emisyonlar uzaysal olarak sınırlıydı ve esasen sert zemin üzerinde yerel mikrobiyal halılar, sıcak sediman parçacıkları üzerinde ve aktif ventilasyon bölgelerine yakın yükselmiş sıcaklıklar olarak gözlemlendi. Bu parçacıklar, çevreleyen sert zemin yaşam alanlarından megafauna bileşimi açısından farklıydı. Mikrobiyal halılar, en belirgin vent ilişkili yaşam alanları arasındaydı, ancak görülebilir megafauna birey sayısı azdı (en fazla görüntü başına 1,8 birey, jeolojik yaşam alanlarına göre 11,4 ile 21,5 arasında). Bu durum, en aktif vent etkisi altındaki mikro yaşam alanlarının birçok daha büyük epifauna organizması için uygun olmayabileceğini gösteriyor; muhtemelen termal veya kimyasal stres nedeniyle. Benzer şekilde, organizmaların sıcaklık, kimya, zemin ve mikrobiyal üretim açısından dik gradyanlar boyunca dağıldığı hidrotermal sistemlerde, megafauna bolluğu ve çeşitliliğinde bu ince ölçekli geçişler iyi bilinmektedir (Govenar ve Fisher, 2007; Tarasov ve diğerleri, 2005; Van Audenhaege ve diğerleri, 2026).
\n
4.2 Grimsey vent alanı
\n
Yaklaşık 400 metre derinliğindeki Grimsey vent alanı, derinlik, jeolojik yapı, zemin bileşimi ve görülebilir megafauna yapısı açısından Kolbeinsey’den farklılık gösterir. Görüntü tabanlı veri setinde, sert zemin üzerinde (bacalar) mikrobiyal halılar mikrobiyal veya mineral yüzeyler tarafından görsel olarak baskındı ve görülebilir megafauna birey sayısı azdı (görüntü başına 0,4), esasen deniz anemonları ve karidesler. Buna karşılık, ince sedimanlar görülebilir megafaunanın çoğunu (542 bireyden 416’sı) içeriyordu ve bunlar Craniella süngerinin yanı sıra deniz anemonları, tünikler ve karideslerle baskındı. Kuzey karidesi, Pandalus borealis, bacalara yakın gözlemlendi. Pandalus borealis ticari olarak avlanan bir tür olup kuzey sularında yaygın olarak dağılmış ve bölgede yumuşak zemin yaşam alanlarından bilinmektedir (Jónsdóttir ve diğerleri, 2022). Karidesin veya bölgenin diğer türlerinin vent alanını bir sığınak veya beslenme yeri olarak kullanıp kullanmadığının test edilmesi gerekmektedir.
\n
Görüntülenen megafaunanın düşük sayısı, faunanın zenginliği düşük olduğunu göstermemeli. Fiziksel makrofauna örnekleri, kanyondan etkilenen sert yüzeylerin ve tortul katmanların küçük gövdeli faunayı barındırdığını ortaya koydu; bu fauna görüntülerle büyük ölçüde göz ardı edilmişti. Grimsey’de makrofauna, megafauna görüntülerinin vazgeçilmez tamamlayıcısıdır ve biyolojik çeşitliliğin değerlendirilmesi için zorunludur. Bu durum değerlendirme uygulamaları açısından doğrudan sonuçlar doğurur: görüntüler çevresel etki değerlendirmeleri ve izleme programları için verimli bir araç olabilir, ancak özellikle görsel açıdan seyrek kanyon etkisi taşıyan ortamlarda bu görüntüler fiziksel örneklemeyle desteklenmelidir.
Aktif Grimsey kanyon yapılarının yakınında, muhtemelen mikrobiyal kökenli beyaz iplikçiklerle kaplı denizyıldızlarının gözlemlenmesi dikkat çekicidir. Hayvanlar ile mikroorganizmalar arasındaki ilişkiler, birçok kimyasal sentez etkisi taşıyan ortam için tanımlanmıştır (Dubilier ve ark., 2008). Grimsey’de denizyıldızlarının üzerinde gözlemlenen beyaz örtünün kendisinin, sülfidi okside eden simbiyotlardan beslenmesinin kanıtı olduğu gösterilen Pescadero Havzası’ndan bir kanyon denizyıldızına kadar uzanan süreçte (Goffredi ve ark., 2021) süngerimsilerde uzun yıllar bilinmeyen bir mikrobiyal simbiyozun kanıtı olmadığını vurgulamak isteriz (Childress ve Girguis, 2011). Orta derinliğine sahip olması nedeniyle, kimyasal sentez ilişkilerinin ve simbiyozun evriminin test edilebileceği yararlı bir ortamı temsil edebileceği düşünülmektedir.
4.3 Diğer kanyon sistemleriyle karşılaştırma
\n
Kolbeinsey ve Grimsey’de gözlemlenen fauna örüntüleri, benzer derinliklerdeki ve derin denizden uzak, sığ ortamlarda bulunan hidrotermal vent çalışmalarının çoğuyla uyumlu olup, çevresel ekosistemlerden gelen, endemik olmayan ve çevre koşullarına dayanıklı türlerle karakterizedir; hatta vent çıkışı güçlü yerel jeokimyasal gradyanlar oluşturduğunda bile (Tarasov ve ark., 2005; Dando, 2010; Taylor ve ark., 2021). Çok sığ hidrotermal vent sistemlerinde, örneğin Ege Denizi’ndeki Milos ve Azorlar’daki D. João de Castro Seamount’ta, mikrobiyal topluluklar jeokimyasal gradyanları sıkı biçimde takip ederken, makrofauna ve megafauna toplulukları genellikle çevresel bölgelerden gelen endemik olmayan türlerle baskındır (Thiermann ve ark., 1997; Cardigos ve ark., 2005; Esposito ve ark., 2018; Fanelli ve ark., 2022; Barosa ve ark., 2023). Matupi Harbour ve Kraternaya Bight gibi sediment barındıran sığ ventlerde de benzer şekilde vent etkilerinin ekosistemin mikrobiyal bileşeninde en güçlü olduğu görülmüştür (Tarasov ve ark., 1990, 1999). Reykjanes Sırtı’ndaki 650 metre derinliğindeki IceAGE Hidrotermal Vent Alanında (Brix ve ark., 2020; Taylor ve ark., 2021), kuzeydoğu Atlantik denizanası kabuğu gibi yaygın türler olan Bathylasma hirsutum (Hoek, 1883) bulunur ve vent ile ilişkili popülasyonlar, bölgedeki vent olmayan popülasyonlarla genetik açıdan bağlantılı kalmaktadır (Neuhaus ve ark., 2024). Aynı sırt sistemindeki, güney Mohn Sırtı’ndaki 500 ila 750 metre derinliğindeki Jan Mayen vent alanlarında fauna neredeyse tamamen bölgesel batyal türlerden oluşmuş (Schander ve ark., 2010) ve çoğu tüketici fotosentez kaynaklı organik maddeye dayanmaktadır (Sweetman ve ark., 2013). Buna karşılık, aynı sırt sistemindeki yaklaşık 2.300 metre derinliğindeki Loki’s Castle vent alanı, özelleşmiş bir vent faunasına ev sahipliği yapmıştır (Eilertsen ve ark., 2024). Bu durum, derinlikle ilişkili üretkenlik gradyanlarının (Lutz ve ark., 2007), sırt topoğrafyasının ve/veya bağlantılılığın popülasyonları etkileyebileceğini (Mullineaux ve ark., 2018) ve zamanla vent endemik faunasının evrimine yol açabileceğini göstermektedir.
\n
4.4 Çevresel yönetim
\n
İzlanda’nın her iki kuyu alanı da kuyu etkisi altındaki ve kuyu etkisi dışında kalan habitatların yan yana yer almasıyla, ayrıca megafauna görüntülerinden yalnızca görülemeyen biçimde hidrotermal eğrime tepki veren küçük gövdeli, gizli veya çamur ile ilişkili fauna olabileceği düşünülen unsurlar aracılığıyla bölgesel biyoçeşitliliğe katkı sağlıyor. Kolbeinsey ile Grimsey arasındaki karşılaştırma, aynı zamanda derinliği, alt tabakayı, jeolojik ortamı, sıvı kimyasını, çamur birikimini ve bölgesel tür havuzlarını içeren kuyu alanlarının tek bir habitat türü olarak değerlendirilemeyeceğini gösteriyor. Bu nedenle her kuyu alanı için alan özgüsü taşıyan ekolojik karakterizasyon ve çevresel yönetim gerekli. Gelecekteki çalışmalar, alt tabaka etkisini kuyu etkisinden ayırmak amacıyla kuyu alanları dışında karşılaştırılabilir habitatları örneklemeli, kimyasal sentez üretiminin besin ağına katkısını kararlı izotoplarla ölçmeli, görüntülemeyi fiziksel örnekleme ile birleştirmeli ve Sebastes‘in ile Pandalus borealis‘in kuyu alanlarını sığınak mı yoksa beslenme alanı mı kullandığını test etmelidir.
\n
Derinliği az olan ve raf ile ilişkili kuyu alanları birkaç olası baskıya maruz kalabilir ve Grimsey’de koruma yönünde ilk adım atılmıştır: 1 Ağustos 2026 ile 30 Eylül 2028 arasında, kuyu alanını kapsayan yaklaşık 3,4 km²’lik bir alan tüm balıkçılık aletlerine kapatılmıştır (Sanayi Bakanlığı [Atvinnuvegaráðuneytið], 2026). Reykjanes Sırtı’ndaki İzlanda kuyu bölgelerinde kaybolmuş balıkçılık aletlerinin belgelenmesi (Taylor ve ark., 2021) ve kuzey istriyosunun İzlanda’nın kuzeyindeki daha geniş bölgede bulunması (Jónsdóttir ve ark., 2022) bilinmektedir.
\n
Ek olarak iklim kaynaklı değişimler de olası bir baskı unsuru oluşturuyor. İzlanda suları, sıcaklık, stratifikasyon, dolaşım, verimlilik ve tür dağılımındaki değişimler tarafından etkileniyor (Astthorsson ve ark., 2007; Víkingsson ve ark., 2015; Pampoulie ve ark., 2024). Kolbeinsey ve Grimsey’deki topluluklar çevreleyen platform ve üst eğim tür havuzlarından oluştuğu için, yalnızca yerel bozulmaya değil, aynı zamanda daha geniş bölgesel ekosistem değişimlerine de duyarlı olabilirler. Zaman内的 değişkenliği, iklimle ilişkili kaymaları ya da kuyucuk aktivitesinde ve topluluk bileşimindeki değişimleri değerlendirmek için uzun vadeli izleme gereklidir.
\n
Küresel ölçekte kuyucuk alanları, koruma ihtiyacı taşıyan yaygın olarak tanınan küçük, özgün ve kırılgan ekosistemler oluşturuyor (Van Dover ve ark., 2018; Gollner ve ark., 2021; van der Most ve ark., 2023; Gollner ve ark., 2026). Kolbeinsey ve Grimsey’deki gözlemlerimiz, her ikisinin de uzaysal olarak sınırlı, çoklu ayrı habitatı kapsayan ekosistemler olduğunu ve biyoçeşitlilik bilgilerinin henüz tam olmadığını gösteriyor. Ayrıca Grimsey, dev anhidrit bacası birikintileriyle karakterize edilen nadir sedimanthosted kuyucuk sistemlerinden biri (Hannington ve ark., 2001; Kuhn ve ark., 2003), gelecekteki bilimsel çalışmalar için değerli bir referans alanı niteliği taşıyor.
\n
Mevcut bilgilerimiz doğrultusunda, Grimsey ve Kolbeinsey’nin ekolojik önemi, kuyucuk aktivitesi, substrat heterojenitesi, mikrobiyal büyüme ve bölgesel fauna yakın mesafede bir arada oluştuğu habitat mozaiklerinin yaratılmasında yatıyor. Kuyucuk etkisi yarıçapı ve dolayısıyla kuyucuk alanı boyutu henüz çözümlenmemiş durumda. Kuyucuk alanlarının küresel nadirliği ve uzaysal sınırlılığı, iki alanın biyoçeşitliliği hakkındaki mevcut bilgilerdeki eksiklik göz önüne alındığında, her iki kuyucuk alanının da tabana teması yapan balıkçılıktan ve diğer fiziksel bozulma biçimlerinden aktif biçimde korunması öneriliyor. Grimsey’deki balıkçılık kapatma önlemiyle benzer bir uygulama Kolbeinsey’de de yapılabilir ve Gollner ve ark. (2026) derin deniz kuyucukları için önerdiği üç boyutlu koruma yaklaşımı izlenebilir.
\n
Mevcut çalışma, Kolbeinsey ve Grimsey kuyu alanları için mevcut en kapsamlı değerlendirmelerden biri sunsa da, bu alanların biyolojik çeşitliliği, ekosistem işleyişi ve doğal ile insan kaynaklı baskılara karşı duyarlılığının daha iyi anlaşılabilmesi için sürekli izleme ve hedefli örnekleme çalışmalarının sürdürülmesi gerekmektedir. Her iki kuyu alanı da gelecekte koruma ve koruma altına alma adayları olarak değerlendirildiğinden, burada sunulan veriler, yüksek enlemli kuyu alanları için uzun vadeli izleme, koruma planlaması ve yönetim çalışmalarını desteklemek amacıyla ekolojik değişimi tespit etmede değerli bir temel oluşturmaktadır.
\n
Beyanlar
\n
Veri erişim beyanı
\n
Megafauna notasyonlarının dayandığı ROV kare yakalamaları, NIOZ Dataverse’da arşivlenmekte ve https://doi.org/10.25850/nioz/7b.b.zk adresinde kamuya açık olarak sunulmaktadır. Notasyon tabloları, makrofauna bolluk verileri, türetilen analiz matrisleri ve burada sunulan tüm analizlerin, tabloların ve grafiklerin yeniden üretilmesini sağlayan R betikleri, CC BY 4.0 lisansı altında Zenodo’da arşivlenmiştir (https://doi.org/10.5281/zenodo.23062334). Örnekleme işlemlerini belgeleyen 64PE475 seferi raporu, https://doi.org/10.25850/nioz/7b.b.yk adresinde mevcuttur. Eksik tablolar S1 ile S12 bu makaleyle birlikte sağlanmaktadır.
\n
Etik beyan
\n
Bu makale, çalışmalarının etik onay gerektirmeyen hayvanlar üzerine yapılan araştırmayı sunmaktadır.
\n
Yazar katkıları
\n
JV: kavramsal kurgu, veri yönetimi, biçimsel analiz, yöntem, proje yönetimi, görselleştirme, özgün taslak yazımı, gözden geçirme ve düzenleme yazımı. SB: kavramsal kurgu, veri yönetimi, fon sağlama, araştırma, yöntem, proje yönetimi, kaynaklar, denetimin yürütülmesi, özgün taslak yazımı, gözden geçirme ve düzenleme yazımı. LB: araştırma, gözden geçirme ve düzenleme yazımı. JB: veri yönetimi, biçimsel analiz, yazılım, özgün taslak yazımı, gözden geçirme ve düzenleme yazımı. SH: veri yönetimi, görselleştirme, özgün taslak yazımı. AL: yöntem, kaynaklar, denetimin yürütülmesi, özgün taslak yazımı, gözden geçirme ve düzenleme yazımı. LM: veri yönetimi, yöntem, yazılım, denetimin yürütülmesi, özgün taslak yazımı, gözden geçirme ve düzenleme yazımı. SO: veri yönetimi, yöntem, yazılım, denetimin yürütülmesi, özgün taslak yazımı, gözden geçirme ve düzenleme yazımı. SR: kavramsal kurgu, veri yönetimi, yöntem, denetimin yürütülmesi, özgün taslak yazımı, gözden geçirme ve düzenleme yazımı. SW: araştırma, özgün taslak yazımı, gözden geçirme ve düzenleme yazımı. SG: kavramsal kurgu, veri yönetimi, biçimsel analiz, fon sağlama, yöntem, kaynaklar, denetimin yürütülmesi, doğrulama, görselleştirme, araştırma, özgün taslak yazımı, gözden geçirme ve düzenleme yazımı.
\n
Fonlama
\n
Yazarlar, bu çalışma için ve/veya yayımlanması için mali destek aldıklarını beyan etmiştir. SG, LB, SW ve SB’nin çalışmalarını DEEP REST projesi desteklemiştir; bu proje, Biyodüzen Restore ERA-NET Cofund kapsamında 2020–2021 yıllarında Biyodüzen ve Su JPI ortak araştırma proje çağrısı yoluyla finanse edilmiştir (GA N°101003777). Projenin finanse edildiği kurumlar AB ve aşağıdaki kuruluşlardır: Agence Nationale de la Recherche (ANR-21-BIRE-0003), Fransa; Tarım, Doğa ve Gıda Kalitesi Bakanlığı (LNV), Hollanda; Research Foundation – Flanders (FWO), Belçika; Almanya’da VDI/VDE-IT aracılığıyla Almanya Federal Eğitim ve Araştırma Bakanlığı (BMBF); Environmental Protection Agency (EPA), İrlanda; Fundação para a Ciência e a Tecnologia (FCT), Portekiz; Fundo Regional para a Ciência e a Tecnologia (FRCT), Portekiz-Azurlar; ve State Research Agency (AEI), İspanya. SB, Kadın Profesörler Leibniz Programı (hibe no. P150/2023) kapsamında desteklenmiştir. SH, Alman Helmholtz Vakfı’nın Araştırma Alanı Toprak ve Çevre çağrısı kapsamında “Yüksek CO2 – metabolik yanıtlar ve biyoekonomik fırsatlar” projesinde hibe almıştır. Proje süresince batimetrik veriler, Haziran 2023’te RV Alkor üzerinde elde edilmiştir. Fon sağlayıcıların çalışma tasarımında, veri toplama ve analizde, yayımlanma kararı veya makalenin hazırlanmasında hiçbir rolü yoktur.
\n
Teşekkür
\n
Yapıcı geri bildirimleri için değerlendirmenlere teşekkür ederiz.
\n
Çakışma ilgisi
\n
Yazarlar, bu çalışmanın potansiyel bir çakışma ilgisi olarak yorumlanabilecek ticari veya mali ilişkilerin yokluğunda yürütüldüğünü beyan etmiştir.
\n
Yazar SB, gönderim anında Frontiers’in editöryel kurul üyesi olduğunu beyan etmiştir. Bu durum, hakem değerlendirme süreci ve nihai kararı etkilememiştir.
\n
Üretken yapay zeka beyanı
\n
Yazarlar, bu makalenin oluşturulmasında üretken yapay zekanın kullanıldığını beyan etmiştir. Üretken yapay zeka bazı durumlarda kod yazımına yardımcı olmak amacıyla kullanılmıştır.
\n
Bu makalede figürlerle birlikte verilen herhangi bir alternatif metin (alt yazı), Frontiers tarafından yapay zeka desteğiyle oluşturulmuş olup doğruluğu sağlamak için makul çabalar gösterilmiştir; mümkün olduğunda yazarlar tarafından da gözden geçirilmiştir. Herhangi bir sorun tespit ederseniz, lütfen bizimle iletişime geçin.
\n
Yayıncının notu
\n
Bu makalede ifade edilen tüm iddialar yalnızca yazarların kendi görüşleridir ve gerek kuruluşlarına, gerek yayıncıya, editörlere ve değerlendiricilere aittir. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
\n
Ek materyal
\n
Bu makalenin Ek Materyali şu çevrimiçi adreste bulunabilir: https://www.frontiersin.org/articles/10.3389/fmars.2026.1944194/full#supplementary-material
\n
-
Ahyong S., Boyko C., B., Bernot J., WoRMS Editör Kurulu (2024). World Register of Marine Species (WoRMS). Çevrimiçi erişim: https://www.marinespecies.org (28 Ekim 2026 tarihinde erişildi).\n
- Google Scholar
- Makalede referansı görüntüle
\n
-
Alfaro-Lucas J. M., Chapman A. S. A., Tunnicliffe V., Bates A. E. (2024). Dünya derin deniz hidrotermal vent topluluklarındaki yüksek fonksiyonel kırılganlık. Proc. Natl. Acad. Sci. U.S.A. 121, e2403899121. doi: 10.1073/pnas.2403899121
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
\n
-
Asbjørnsen H., Årthun M., Skagseth Ø., Eldevik T. (2020). Son Arktik atlantifikasyonun altındaki mekanizmalar. Geophys. Res. Lett. 47, e2020GL088036. doi: 10.1029/2020GL088036
- Pubmed Özeti
- CrossRef
- Google Scholar
\n
-
Astthorsson O. S., Gislason A., Jonsson S. (2007). İklim değişkenliği ve İskoç deniz ekosistemi. Deep Sea Res. Part. II Top. Stud. Oceanogr. 54, 2456–2477. doi: 10.1016/j.dsr2.2007.07.030
- Pubmed Özeti
- CrossRef
- Google Scholar
\n
\nBu bölüm, Kolbeinsey ve Grimsey hidrotermal alanlarındaki habitat heterojenliği ve faunal topluluklar üzerine yapılan çalışmanın dayandığı akademik kaynakları içermektedir. Kaynaklar, İtalya’nın Aeolian adaları’ndaki sığ sularda bulunan hidrotermal ventlerdeki mikrobiyal çeşitliliğin haritalanması, aktif denizaltı hidrotermal vent alanları için küresel bir veritabanının oluşturulması, İzlanda’nın kuzeyindeki Kolbeinsey Sırtı’ndaki hidrotermal ventlerden gelen iz gazlarının kökeni, Kolbeinsey Sırtı’ndaki peracarid kabukluların bileşimi, bolluğu ve çeşitliliği, aynı bölgedeki peracarid kabuklu toplulukları ve Norveç Denizi’ndeki derin, kanyon benzeri yapı olan Ægir Sırtı’ndaki habitat değişkenliği ve faunal zonasyon konularını ele alan çalışmalar olarak özetlenebilir.\n
-
Brix, S., Taylor, J., Le Saout, M., Mercado-Salas, N., Kaiser, S., Lörz, A.-N. ve diğerleri (2020). “Kuzey Atlantik ve Kuzey Buz Denizi’ndeki eğrilikler boyunca derinlik kesitleri ve bağlantılılık, iceAGE projesi çerçevesinde (İzlanda deniz hayvanları: genetik ve ekoloji), sefer no. SO276 (MerMet17-06), 22.06.2020–26.07.2020, emden (Almanya)–emden (Almanya),” Sonne-Berichte So276. Bonn: Gutachterpanel Forschungsschiffe (SONNE-Berichte SO276). doi: 10.48433/cr_so276
\n
-
Cardigos, F., Colaço, A., Dando, P. R., Ávila, S. P., Sarradin, P. M., Tempera, F. ve diğerleri (2005). D. João de Castro Sırta (Azurlar) sığ sularda hidrotermal vent alanının suları ve toplulukları. Chem. Geol.224, 153–168. doi: 10.1016/j.chemgeo.2005.07.019
\n
-
Cerfonteyn, M., Groben, R., Vaulot, D., Guðmundsson, K., Vannier, P., Pérez-Hernández, M. D. ve diğerleri (2023). İzlanda deniz ortamında eukaryotik fitoplanktonun dağılımı ve çeşitliliği. Sci. Rep.13, 8519. doi: 10.1038/s41598-023-35537-2
\n
-
Chan, B. K. K., Wang, T.-W., Chen, P.-C., Lin, C.-W., Chan, T.-Y., Tsang, L. M. (2016). Tayvan’ın Kueishan Adası açıklarındaki sığ sularda hidrotermal ventlerin makrobita topluluk yapısı ve çevresel parametreler. PloS One11, e0148675. doi: 10.1371/journal.pone.0148675
\n
-
Chapman, A. S. A., Beaulieu, S. E., Colaço, A., Gebruk, A. V., Hilario, A., Kihara, T. C. ve diğerleri (2019). sFDvent: derin deniz hidrotermal-vent faunası için küresel bir özellik veritabanı. Glob. Ecol. Biogeogr.28, 1538–1551. doi: 10.1111/geb.12975
\n
-
ChildressJ. J.GirguisP. R. (2011). \nEndosimbiyontik kimyasal otonom metabolizmanın konak fizyolojik kapasiteler üzerindeki metabolik talepleri. J. Exp. Biol.214, 312–325. doi: 10.1242/jeb.049023
- Pubmed Özet
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
\n
-
ClarkeK. R.SomerfieldP. J.GorleyR. N. (2008). \nKeşifçi topluluk analizlerinde sıfır hipotezlerin test edilmesi: benzerlik profilleri ve biyota-çevre bağlantısı. J. Exp. Mar. Biol. Ecol.366, 56–69. doi: 10.1016/j.jembe.2008.07.009
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
CopleyJ. T.MarshL.GloverA. G.HühnerbachV.NyeV. E.ReidW. D. K.et al. (2016). \nUltrayavaş yayılan Güneybatı Hint Kemerinde bilinen ilk derin deniz hidrotermal bacalarındaki megafauna ve makrofaunanın ekolojisi ve biocoğrafyası. Sci. Rep.6, 39158. doi: 10.1038/srep39158
- Pubmed Özet
- CrossRef
- View reference in article
\n
-
DandoP. R. (2010). “\nDeniz tabanındaki derin ve sığ su vent ve seep bölgelerindeki biyolojik topluluklar,” The Vent and Seep Biota: Aspects From Microbes to Ecosystems adlı eserde. Ed. \nKielS. (\nSpringer, Dordrecht), 333–378. doi: 10.1007/978-90-481-9572-5_11
- CrossRef
- Google Scholar
- View reference in article
\n
-
DanielssenD. C. (1887). “\nAlcyoniiden,” Den Norske Nordhavs-Expedition 1876–1878. Zoologi adlı eserde. Çevrimiçi olarak erişilebilir: https://www.biodiversitylibrary.org/page/2113060 (28 Ekim 2026 tarihinde erişildi).\n
- Google Scholar
- View reference in article
\n
-
Desbruyères D., Hashimoto J., Fabri M.-C. (2006). “Batı Pasifik ark havzalarında hidrotermal vent topluluklarının bileşimi ve biyocoğrafyası,” Back-Arc Spreading Systems: Geological, Biological, Chemical, and Physical Interactions adlı eserinde. Editörler: Christie D. M., Fisher C. R., Lee S.-M., Givens S. (American Geophysical Union, Washington, DC), 215–234. doi: 10.1029/166GM11
- CrossRef
- Google Scholar
\n
-
Donnarumma L., Appolloni L., Chianese E., Bruno R., Baldrighi E., Guglielmo R. ve diğerleri (2019). İtalya’nın Napoli Körfezi’ndeki Secca delle Fumose (Baia) bölgesindeki sığ hidrotermal alanının çevresel ve bentik topluluk örüntüleri. Front. Mar. Sci. 6, 685. doi: 10.3389/fmars.2019.00685
- CrossRef
- Google Scholar
\n
-
Dubilier N., Bergin C., Lott C. (2008). Deniz hayvanlarındaki simbiyotik çeşitlilik: kemosentezin kullanımı. Nat. Rev. Microbiol. 6, 725–740. doi: 10.1038/nrmicro1992
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
\n
-
Eilertsen M. H., Kongsrud J. A., Tandberg A. H. S., Alvestad T., Budaeva N., Martell L. ve diğerleri (2024). Kuzey Buzul Denizi Okyanus Kırığı’ndaki Loki’s Castle vent alanındaki faunanın çeşitliliği, habitat endemisi ve trofik ekolojisi. Sci. Rep. 14, 103. doi: 10.1038/s41598-023-46434-z
- Pubmed Abstract
- CrossRef
- View reference in article
\n
-
Esposito V., Andaloro F., Canese S., Bortoluzzi G., Bo M., Di Bella M. ve diğerleri (2018). Kuzey Tyrrhenia Denizi’ndeki Basiluzzo Adası’nda (Aeolian adaları) bulunan olağanüstü sığ su hidrotermal sitesi: korunması gereken bir ortam. PloS One 13, e0190710. doi: 10.1371/journal.pone.0190710
- Pubmed Abstract
- CrossRef
- View reference in article
\n
-
Fabricius O. (1780). Fauna Groenlandica (Hafniae et Lipsiae: J. G. Rothe).
- Google Scholar
- View reference in article
\n
Fanelli vd. (2022) Yanardağ Adaları’ndaki (Güney Tirrenya, Akdeniz) Shallow Hidrotermal Ventlerde Yerel Asitifikasyonun Benthik Topluluklara Etkisi Biology 11, 321. doi: 10.3390/biology11020321
\n
- \n
- Pubmed Özet
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
\n
\n
\n
\n
\n
FAO (2009) Uluslararası Derin Deniz Balıkçılığının Yönetimi İçin Kılavuzlar (Roma: Birleşmiş Milletler Gıda ve Tarım Örgütü).
\n
- \n
- Google Scholar
- Makalede referansı görüntüle
\n
\n
\n
Federal Coğrafi Veri Komitesi (2012) Kıyı ve Deniz Ekolojik Sınıflandırma Standartları (Fgdc-STD-018-2012) (Reston, VA: Federal Coğrafi Veri Komitesi).
\n
- \n
- Google Scholar
\n
\n
Fricke vd. (1989) Shallow Subpolar Orta Atlantik Kemerinde Hidrotermal Vent Toplulukları Mar. Biol. 102, 425–429. doi: 10.1007/BF00428495
\n
- \n
- Pubmed Özet
- CrossRef
- Google Scholar
\n
\n
\n
\n
Geptner vd. (2002) İsveç’ten Aktif Denizaltı Sıcak Kaynaktan Biyojenik Saponit Clays Clay Miner. 50, 174–185. doi: 10.1346/000986002760832775
\n
- \n
- CrossRef
- Google Scholar
\n
\n
\n
Goffredi vd. (2021) Golfo de California’daki Pescadero Havzasındaki Hidrotermal Ventlerden Derin Denizde Karışık Trofik Kimyasal Sentez BMC Biol. 19, 8. doi: 10.1186/s12915-020-00921-1
\n
- \n
- Pubmed Özet
- CrossRef
- Google Scholar
\n
\n
\n
\n
Gollner vd. Yolculuk Raporu 64PE475 (Texel: NIOZ Kralı Hollanda Deniz Araştırmaları Enstitüsü). doi: 10.25850/nioz/7b.b.yk
\n
- \n
- CrossRef
- Google Scholar
\n
\n
\n
-
Gollner S., Colaço A., Gebruk A., Halpin P. N., Higgs N., Menini E. ve diğerleri (2021). Korunması gereken hidrotermal ekosistemlerin belirlenmesi için bilimsel kriterlerin uygulanması. Mar. Policy 132, 104641. doi: 10.1016/j.marpol.2021.104641
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
Gollner S., Govenar B., Fisher C. R., Bright M. (2015). Derin deniz hidrotermal ventlerinde boyut önemli: mezofauna ve makrofaunanın farklı çeşitlilik ve yaşam alanı sadakati örüntüleri. Mar. Ecol. Prog. Ser. 520, 57–66. doi: 10.3354/meps11078
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
Gollner S., Jaeckel A., Robb S., Sarrazin J., Tunnicliffe V., van der Grient J. M. A. ve diğerleri (2026). Derin deniz hidrotermal vent ekosistemlerinin üç boyutlu yönetim ihtiyaçları. Mar. Policy 185, 106959. doi: 10.1016/j.marpol.2025.106959
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
Gollner S., Riemer B., Martínez Arbizu P., Le Bris N., Bright M. (2010). 9°50′K Doğu Pasifik Yükselişi’nden mezofaunanın çeşitliliği: hidrotermal sıvı emisyonları boyunca bir eğim. PloS One 5, e12321. doi: 10.1371/journal.pone.0012321
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
Gottschaldt R. (1894). Brema’nın 1889 Spitzbergen gezisine ait Synascidien. Jena. Z. Naturwiss. 28, 343–368.
- Google Scholar
- Makaledeki referansı görüntüle
\n
-
Govenar B., Fisher C. R. (2007). Doğu Pasifik Yükselişi’ndeki hidrotermal ventlerde Riftia pachyptila topluluklarının yaşam alanı sağladığına dair deneysel kanıtlar. Mar. Ecol. 28, 3–14. doi: 10.1111/j.1439-0485.2007.00148.x
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
Gudmundsson A., Brynjolfsson S., Jonsson M. T. (1993). Kuzey İrlanda’da bir transform fay-rift kuşağı birleşim noktasının yapısal analizi. Tectonophysics 220, 205–221. doi: 10.1016/0040-1951(93)90232-9
- CrossRef
- Google Scholar
\n
Hannington, M., Herzig, P., Stoffers, P., Scholten, J., Botz, R., Garbe-Schönberg, D. ve diğerleri (2001). İrlanda’nın kuzey kıyısı açıklarında yüksek sıcaklıklı denizaltı hidrotermal bacaları ve devasa anhidrit yataklarının ilk gözlemleri. Mar. Geol. 177, 199–220. doi: 10.1016/S0025-3227(01)00172-4
\n
- \n
\n
Hardarson, B. S. ve Fitton, J. G. (1997). İrlanda’da kabuk oluşumu mekanizmaları. Geology 25, 1043–1046. doi: 10.1130/0091-7613(1997)025<1043:MOCAII>2.3.CO;2
\n
- \n
\n
Hoek, P. P. C. (1883). “1873–76 yıllarında H.M.S. Challenger gemisi tarafından toplanan Cirripedia (kabukçuk yengeçleri) üzerine rapor,” Report on the Scientific Results of the Voyage of H.M.s. Challenger During the Years 1873–76, Zoology, Vol. 8, Part 25 (Her Majesty’s Stationery Office, Londra), 1–169.
\n
- \n
\n
Holt, E. W. L. ve Tattersall, W. M. (1905). “Kuzeydoğu Atlantik yamacından Schizopodous kabukçuklar,” Report on the Sea and Inland Fisheries of Ireland for 1902 and 1903, Part II, Scientific Investigations (His Majesty’s Stationery Office, Dublin), 99–152. Çevrimiçi olarak erişilebilir: https://www.marinespecies.org/aphia.php?p=sourcedetails&id=9386 (28 Ekim 2026 tarihinde erişildi).
\n
- \n
\n
Hölz, S., Perner, M., Adam-Beyer, N., Schmitz, W., Türk, M., Wenzel-Storjohann, A. ve diğerleri (2023). “Grimsey hidrotermal alanındaki batimetri ve mikrobiyel araştırmalar (İrlanda), AL595 sefer numarası, 31.05.–20.06.2023, Kiel (Almanya) – Grimsey hidrotermal alanı (İrlanda) – Kiel (Almanya), AUV@ GVF,” Kiel: GEOMAR Helmholtz Okyanus Araştırma Merkezi Kiel (ALKOR-Berichte, AL595. doi: 10.3289/CR_AL595
\n
- \n
\n
-
Horton, T.; Marsh, L.; Bett, B.; J. Gates, A.; R. Jones, D.; O. B. Benoist, N.; M. A. ve diğerleri (2021). Görüntü tabanlı tanımlamalar için açık taksonomik adlandırmanın standartlaşması önerileri. Front. Mar. Sci. 8, 620702. doi: 10.3389/fmars.2021.620702
- CrossRef
- Google Scholar
\n
-
Jónsdóttir, I. G.; Yesson, C.; Kemp, K. M.; Ólafsdóttir, S. H. (2022). İzlanda’nın kuzeyinde, açık denizdeki kuzey karidesi (Pandalus borealis) yataklarındaki bentik topluluk yapısı. Mar. Biol. Res. 18, 64–78. doi: 10.1080/17451000.2022.2080840
- Pubmed Abstract
- CrossRef
- Google Scholar
\n
-
Koren, J.; Danielssen, D. C. (1883). Nye Alcyonider, Gorgonider og Pennatulider tilhørende Norges Fauna. Bergen: Bergens Museum. Çevrimiçi olarak erişilebilir: https://www.biodiversitylibrary.org/page/6976981 (Erişim: 28 Ekim 2026).
- Google Scholar
\n
-
Krøyer, H. (1838). Conspectus crustaceorum groenlandiae. Naturhist. Tidsskr. 2, 249–261.
- Google Scholar
\n
-
Kuhn, T.; Herzig, P. M.; Hannington, M. D.; Garbe-Schönberg, D.; Stoffers, P. (2003). İzlanda’nın kuzeyinde, sedimanthostlu Grimsey hidrotermal alanında sıvı kökeni ve anhidrit çökelmesi. Chem. Geol. 202, 5–21. doi: 10.1016/S0009-2541(03)00207-9
- CrossRef
\n
-
Lamarck, J. B. (1815). Suite des polypiers empâtés. Mém. Mus. Hist. Nat. 1, 69-80, 162-168, 331-340.
- Google Scholar
\n
-
Levin, L. A.; Colaço, A.; Escobar, E.; Le Bris, N.; Metaxas, A.; Nomikou, P. ve diğerleri (2024). “Hidrotermal bacalar ve soğuk sızıntılar,” The Third World Ocean Assessment, Section 4, Chapter 5, Subchapter 5p (Birleşmiş Milletler, New York). Çevrimiçi olarak erişilebilir: https://woa.un.org/third-world-ocean-assessment/changes-second-world-ocean-assessment/habitats/chapter-5-subchapter-5p-hydrothermal-vents-and-cold-seeps (Erişim: 28 Ekim 2026).
- Google Scholar
\n
-
Linnaeus C. (1758). Systema Naturae Per Regna Tria Naturae, Secundum Classes, Ordines, Genera, Species, Cum Characteribus, Differentiis, Synonymis, Locis. 10. Baskı, Cilt 1 (Holmiae: Laurentius Salvius).
- Google Scholar
\n
-
Lörz A.-N., Kaiser S., Oldeland J., Stolter C., Kürzel K., Brix S. (2021). İzlanda etrafındaki raf ve derin deniz bentik Amfipoda’nın biyocoğrafyası, çeşitliliği ve çevresel ilişkileri. PeerJ 9, e11898. doi: 10.7717/peerj.11898
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
Lutz M. J., Caldeira K., Dunbar R. B., Behrenfeld M. J. (2007). Net birincil üretim ve derinliğe parçacıklı organik karbon akışının mevsimsel ritimleri, küresel okyanusta biyolojik pompasının verimliliğini açıklar. J. Geophys. Res. Oceans 112, C10011. doi: 10.1029/2006JC003706
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
Malmberg S. A., Kristmannsson S. S. (1992). İzlanda sularındaki hidrografik koşullar 1980–1989. ICES Mar. Sci. Symp. 195, 76–92. doi: 10.17895/ices.pub.19270634
- CrossRef
- Google Scholar
\n
-
Marenzeller E. (1878). Die Coelenteraten, Echinodermen und Würmer der K.K. Österreichisch-Ungarischen Nordpol-Expedition. Denkschr. Kais. Akad. Wiss. Wien Math.-Naturwiss. Cl. 35, 357–398
- Google Scholar
\n
-
Deniz ve Tatlısu Araştırma Enstitüsü (2024). “Golden redfish (Sebastes norvegicus)”, Technical Report içinde (Deniz ve Tatlısu Araştırma Enstitüsü, Reykjavík). Çevrimiçi olarak erişilebilir: https://www.hafogvatn.is/static/extras/images/05-redfish_techreport_en.html (28 Ekim 2026’da erişildi).
- Google Scholar
\n
-
Marsh L., Copley J. T., Huvenne V. A. I., Linse K., Reid W. D. K., Rogers A. D. ve diğerleri (2012). Güney Okyanusu derin deniz hidrotermal yataklarında faunal topluluklarının mikro dağılımı. PloS One 7, e48348. doi: 10.1371/journal.pone.0048348
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
Marteinsson V., T. Kristjánsson, J. K. Kristmannsdóttir, H. Dahlkvist, M. Sæmundsson, K. Hannington, M. ve diğerleri (2001). Eyjafjordur’daki deniz tabanında devasa smektit konilerinin keşfi ve tanımı, kuzey İskoçya’da yeni bir termal mikrobiyal yaşam ortamı. Appl. Environ. Microbiol. 67, 827–833. doi: 10.1128/AEM.67.2.827-833.2001
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
Menini E., H. Calado, R. Danovaro, E. Manea, P. N. Halpin (2023). Derin denizdeki aktif hidrotermal bacaların korunması için küresel bir stratejiye doğru. NPJ Ocean Sustain. 2, 22. doi: 10.1038/s44183-023-00029-3
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
Sanayi Bakanlığı [Atvinnuvegaráðuneytið]. (2026). “Grímsey’nin doğusunda tüm aletlerle balıkçılığa yönelik geçici yasak hakkında 814/2026 sayılı tüzük [Regulation No. 814/2026 on a temporary ban on fishing with all gear east of Grímsey],” Stjórnartíðindi B-Deild‘de. (Reykjavik: Atvinnuvegaráðuneytið). Çevrimiçi olarak erişilebilir: https://www.reglugerd.is/reglugerdir/allar/nr/814-2026 (28 Ekim 2026’da erişildi).
- Google Scholar
\n
-
Mullineaux L. S., A. Metaxas, S. E. Beaulieu, M. Bright, S. Gollner, B. M. Grupe ve diğerleri (2018). Metaköy yaklaşımıyla derin deniz hidrotermal bacalarının ekolojisinin incelenmesi. Front. Mar. Sci. 5, 49. doi: 10.3389/fmars.2018.00049
- CrossRef
- Google Scholar
\n
-
Neuhaus J., K. Linse, S. Brix, P. Martínez Arbizu, J. Taylor (2024). Derin deniz kabuğu denizanası Bathylasma hirsutum‘nın (Hoek 1883) popülasyon genetiği ve hidrotermal bacayla ilişkisinin ilk bildirimi. Zool. Stud. 63, 25. doi: 10.6620/ZS.2024.63-25
- Pubmed Özet
- CrossRef
- Google Scholar
\n
Oksanen J., Simpson G. L., Blanchet F. G., Kindt R., Legendre P., Minchin P. R. ve diğerleri (2022). vegan: Topluluk Ekolojisi Paketi. R paket sürümü 2.6-4. Çevrimiçi: https://CRAN.R-project.org/package=vegan (28 Ekim 2026 tarihinde erişildi).
\n
Google Scholar
\n
Pampoulie C., Brix S. ve Randhawa H. S. (2024). Değişen bir okyanusta Grönland–İskoçya Sırtı: müdahale zamanı mı? Mar. Ecol. 45, e12830. doi: 10.1111/maec.12830
\n
Pubmed Özeti
\n
CrossRef
\n
Google Scholar
\n
Perez M., Sun J., Xu Q. ve Qian P.-Y. (2021). Batı Hint Okyanusu ortadaki sırtlarda hidrotermal vent topluluklarının yapısı ve bağlantısı: bir inceleme. Front. Mar. Sci. 8, 744874. doi: 10.3389/fmars.2021.744874
\n
CrossRef
\n
Google Scholar
\n
R Core Team (2024). R: İstatistiksel Hesaplama için Bir Dil ve Ortam (Vienna: İstatistiksel Hesaplama Vakfı). Çevrimiçi: https://www.R-project.org/ (28 Ekim 2026 tarihinde erişildi).
\n
Google Scholar
\n
Risso A. (1826). Histoire Naturelle Des Principales Productions De L’europe Méridionale Et Particulièrement De Celles Des Environs De Nice Et Des Alpes Maritimes Cilt 5 (Paris: F.-G. Levrault). doi: 10.5962/bhl.title.58984
\n
CrossRef
\n
Google Scholar
\n
Schander C., Rapp H. T., Kongsrud J. A., Bakken T., Berge J. ve Cochrane S. ve diğerleri (2010). Kuzey Atlantik’teki Mohn Sırtı’ndaki hidrotermal vent faunası. Mar. Biol. Res. 6, 155–171. doi: 10.1080/17451000903147450
\n
Pubmed Özeti
\n
CrossRef
\n
Google Scholar
\n
Stoffers P., Botz R., Garbe-Schönberg D., Hannington M. D. ve Hauzel B. (1997). Cruise Report Poseidon 229a/B, Kolbeinsey Sırtı, Akureyri–Reykjavik, 22.05.1997–11.06.1997 (Kiel: Geologisch-Paläontologisches Institut und Museum, Universität Kiel). doi: 10.3289/CR_POS229
\n
CrossRef
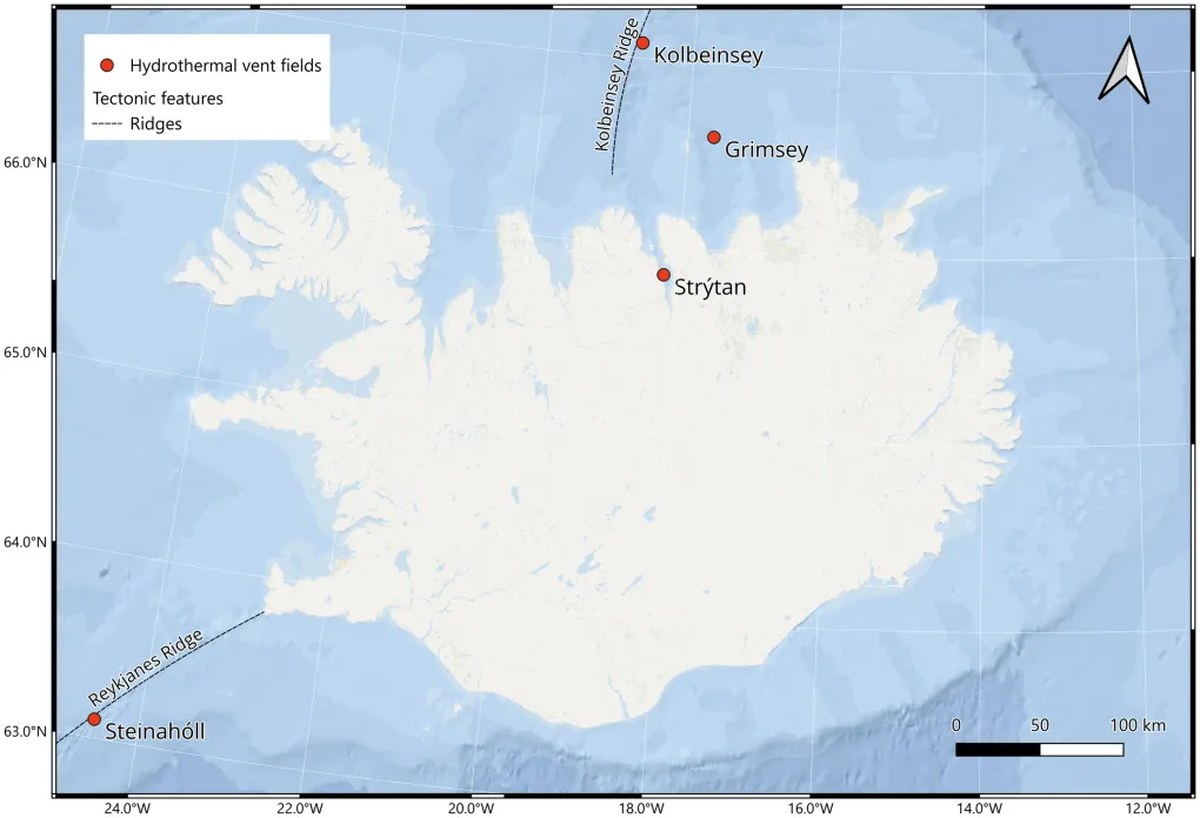
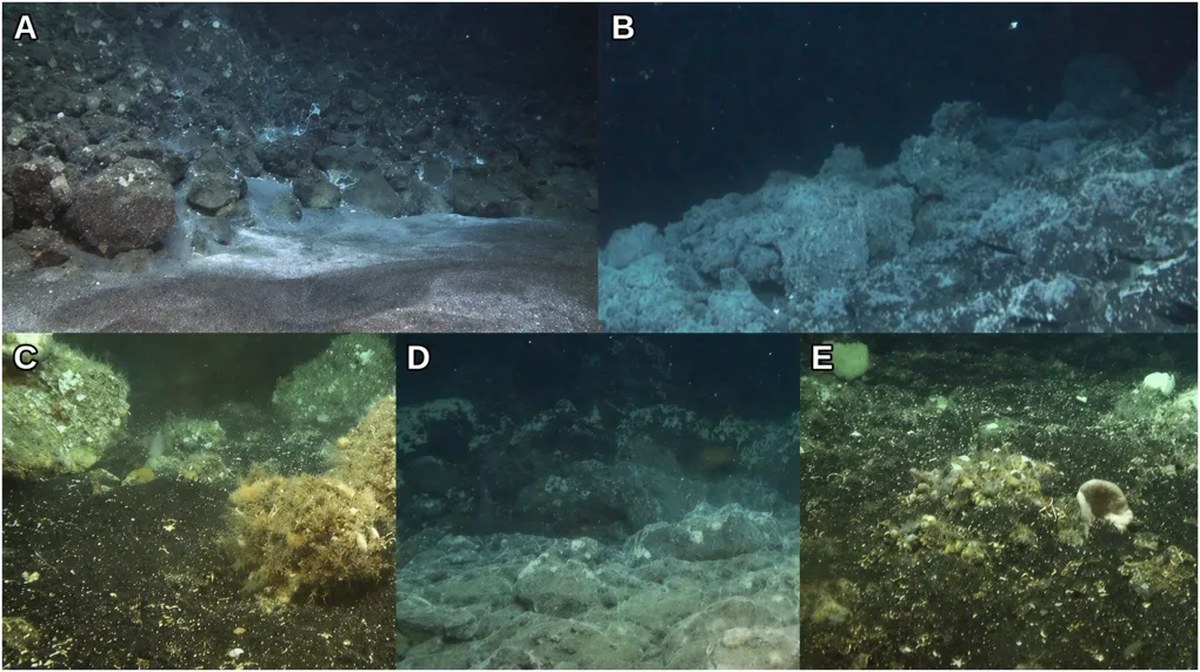
\n
Google Scholar
\n
1. Sweetman A., Levin L. A., Rapp H. T., Schander C. (2013). Mohn Adası’nın güneyindeki hidrotermal bacalardaki faunaların beslenme yapısı, Kuzey Buzulu Okyanusu. Mar. Ecol. Prog. Ser. 473, 115–131. doi: 10.3354/meps10050
\n
Pubmed Özeti | CrossRef | Google Scholar
\n
2. Tarasov V. G., Gebruk A. V., Mironov A. N., Moskalev L. I. (2005). Derin deniz ve kıyı hidrotermal bacaları: iki farklı olgu mu? Chem. Geol. 224, 5–39. doi: 10.1016/j.chemgeo.2005.07.021
\n
Pubmed Özeti | CrossRef | Google Scholar
\n
3. Tarasov V. G., Gebruk A. V., Shulkin V. M., Kamenev G. M., Fadeev V. I., Kosmynin V. N. ve diğerleri (1999). Kıyı hidrotermal bacalarının biyotasına etkisi: Matupi Limanı (Rabaul Krateri, Yeni Britanya Adası, Papua Yeni Gine). Cont. Shelf Res. 19, 79–116. doi: 10.1016/S0278-4343(98)00073-9
\n
CrossRef | Google Scholar
\n
4. Tarasov V. G., Propp M. V., Propp L. N., Zhirmunsky A. V., Namsaraev B. B., Gorlenko V. M. ve diğerleri (1990). Uşişir Volkanı’nın kıyı gaz-hidrotermal bacaları ve Kraternaya Körfezi ekosistemi (Kurile Adaları). Mar. Ecol. 11, 1–23. doi: 10.1111/j.1439-0485.1990.tb00225.x
\n
Pubmed Özeti | CrossRef | Google Scholar
\n
5. Taylor J., Devey C., Le Saout M., Petersen S., Kwasnitschka T., Frutos I. ve diğerleri (2021). İzlanda’nın Reykjanes Sırtı’nda bulunan üç yeni Steinahóll bacası keşfi ve bunların ön jeolojik ve faunal tanımları. Front. Mar. Sci. 8, 520713. doi: 10.3389/fmars.2021.520713
\n
CrossRef | Google Scholar
\n
6. Thiermann F., Akoumianaki I., Hughes J. A., Giere O. (1997). Ege Denizi’ndeki (Milos, Yunanistan) kıyı gaz-hidrotermal bacası alanının bentik faunası. Mar. Biol. 128, 149–159. doi: 10.1007/s002270050078
\n
Pubmed Özeti | CrossRef | Google Scholar
\n
-
Twing K., Ward L. M., Kane Z., Sanders K., Price R. E., Pendleton H. L. ve diğerleri (2022). “Bir derin suluk kaynağının mikrobiyal ekolojisi: İzlanda’nın kuzeyindeki Eyjafjörður’daki Strýtan Derin Suluk Kaynağı.” Frontiers in Microbiology 13, makale 960335. doi: 10.3389/fmicb.2022.960335
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
Van Audenhaege L., Sarrazin J., Ramière A., Borremans C., Marcillat M., Soto Vega P. J. ve diğerleri (2026). “Derin suluk kaynaklarında ve çevrelerinde biyolojik topluluklar üzerinde yaşam mozaiklerinin rolü.” Scientific Reports 16, makale 9751. doi: 10.1038/s41598-026-39544-x
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
van der Most N., Qian P.-Y., Gao Y., Gollner S. (2023). “Hint Okyanusu’ndaki aktif derin suluk kaynağı ekosistemlerinin korunması gerekiyor.” Frontiers in Marine Science 9, makale 1067912. doi: 10.3389/fmars.2022.1067912
- CrossRef
- Google Scholar
\n
-
Van Dover C. L. (2002). “Derin suluk kaynaklarındaki midye yataklarının topluluk yapısı.” Marine Ecology Progress Series 230, 137–158. doi: 10.3354/meps230137
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
Van Dover C. L., Arnaud-Haond S., Gianni M., Helmreich S., Huber J. A., Jaeckel A. L. ve diğerleri (2018). “Aktif derin suluk kaynağı ekosistemlerinin derin deniz madenciliğinden korunması için bilimsel gerekçe ve uluslararası yükümlülükler.” Marine Policy 90, 20–28. doi: 10.1016/j.marpol.2018.01.020
- Pubmed Özet
- CrossRef
- Google Scholar
\n
-
Van Dover C. L., Aronson J., Pendleton L., Smith S., Arnaud-Haond S., Moreno-Mateos D. ve diğerleri (2014). “Derin denizdeki ekolojik iyileştirme: İstenen nitelikler.” Marine Policy 44, 98–106. doi: 10.1016/j.marpol.2013.07.006
- Pubmed Özet
- CrossRef
- Google Scholar
\n
Özet
\n
Anahtar Kelimeler
\n
Yerleşik topluluk yapısı, yaşam alanı çeşitliliği, makrofauna, deniz koruma, dev fauna, raf ve üst eğim hidrotermal çıkışları, çıkış-raf bağlantısı
\n
Atıf
\n
Verheyen JL, Brix S, Brunner L, Burgos JM, Hölz S, Lörz A-N, de Montety L, Ólafsdóttir SH, Ragnarsson SÁ, Waal S ve Gollner S (2026) Kuzey İrlanda’daki Kolbeinsey ve Grimsey hidrotermal çıkış alanlarındaki yaşam alanı çeşitliliği ve fauna toplulukları. Front. Mar. Sci. 13:1944194. doi: 10.3389/fmars.2026.1944194
\n
Alındı
\n
21 Temmuz 2026
\n
Düzeltildi
\n
14 Ekim 2026
\n
Kabul edildi
\n
22 Ekim 2026
\n
Yayınlandı
\n
10 Kasım 2026
\n
Cilt
\n
13 – 2026
\n
Elva G. Escobar-Briones, Meksika Ulusal Özgür Üniversitesi, Meksika
\n
Loïc Van Audenhaege, Southampton Üniversitesi, Birleşik Krallık
\n
Abbie Chapman, Londra Üniversitesi College, Birleşik Krallık
\n
Vincent Dubut, Aix-Marseille Üniversitesi, Fransa
\n
© 2026 Verheyen, Brix, Brunner, Burgos, Hölz, Lörz, de Montety, Ólafsdóttir, Ragnarsson, Waal ve Gollner’a aittir.
\n
Bu açık erişimli makale, Creative Commons Atıf Lisansı (CC BY) kapsamında dağıtılmaktadır. Makalenin başka forumlarda kullanılması, dağıtılması veya çoğaltılması, orijinal yazarların ve telif hakkı sahiplerinin belirtilmesi ile bu dergideki orijinal yayının alıntılanması koşuluyla izne tabidir. Bu şartlara uymayan hiçbir kullanım, dağıtım veya çoğaltma izne tabidir.
\n
* İletişim: Jan Leonard Verheyen, [email protected]; Saskia Brix, [email protected]; Sabine Gollner, [email protected]
\n
Bu makalede ifade edilen tüm iddialar yalnızca yazarların kendi görüşleridir ve gerekli olarak bağlı oldukları kuruluşların, yayıncının, editörlerin ve değerlendiricilerin görüşlerini yansıtmayabilir. Bu makalede değerlendirilebilecek her türlü ürün veya üreticisinin yapabileceği her türlü iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
\n