Orijinal Araştırma Makalesi
Front. Mar. Sci., 11 Kasım 2026
Maritim Balıkçılığı, Akakültür ve Canlı Kaynaklar Bölümü
Cilt 13 – 2026 | https://doi.org/10.3389/fmars.2026.2013473
- ZF
Zhaoyuan Fei 1
- RP
Ruibing Peng 1*
- JW
Jiayu Wang 1
- HZ
Haolan Zhou 1
- MC
Mingyu Chen 1
- GZ
Guoquan Zeng 2
- XF
Xun Feng 3
-
1. Ningbo Üniversitesi Deniz Bilimleri Fakültesi, Ningbo, Çin
-
2. Zhejiang Akakültür Araştırma Enstitüsü, Wenzhou, Çin
-
3. Changshan İlçesi Tarım ve Kırsal İşler Müdürlüğü, Quzhou, Çin
Makale Metrikleri
Özet
Düşük tuzluluk stresi, genellikle bahar yağışları ve ağız suları salinite dalgalanmaları nedeniyle ortaya çıkar ve deniz diatomlarının büyük ölçekli yetiştiriciliğini sınırlayan başlıca faktörlerden biridir; büyüme, fotosentez ve karbon metabolizmasını bozabilir. Nitzschia closterium, yüksek besin değeri ve EPA ve DHA gibi yağ asitlerinin (PUFA) üretiminde güçlü potansiyeli olan bir deniz diatomudur ve aynı zamanda yetiştiricilikte canlı yem olarak yaygın olarak kullanılmaktadır. Ancak bu türde düşük tuzluluk stresi için etkili azaltma stratejileri sınırlıdır ve çoklu exogen düzenleyicilerin etkileri iyi anlaşılmamıştır. Bu çalışmada, L9(34) dikdörtgen (orthogonal) tasarımı kullanılarak, sesamol (SL), melatonin (MT) ve spermidin (SPD) kombinasyonlarının dokuzu, 5 saliniteste N. closterium‘nin büyümesi, biyokimyasal bileşimi ve antioksidan yanıtları üzerinde değerlendirilmiştir. Kombinasyonlar ve ölçülen parametreler arasında değişkenlik gösterilen yanıtlar, dokuz kombinasyon arasında 30 mg·L⁻¹ SL + 20 mg·L⁻¹ MT + 150 mg·L⁻¹ SPD (A2B2C3) kombinasyonunun, düşük tuzluluk kontrolüne göre daha yüksek toplam lipid (26,8%) ve PUFA (55,28%) ile yükseltilmiş SOD ve CAT aktiviteleri dahil olmak üzere birkaç ölçülen parametre için uygun sonuçlar ürettiğini göstermiştir. Eklenen maddeler altındaki en düşük MDA içeriği, farklı bir kombinasyonda (A2B1C2) gözlemlenmiştir. Range analizi, SPD’nin test edilen matriste büyüme hızı, klorofil a, toplam lipid, EPA, PUFA, çözünür şeker ve antioksidan enzim aktiviteleri üzerinde en güçlü etkiye sahip olduğunu, SL’nin ise MDA azalması ve DHA için en büyük range’e sahip olduğunu ortaya koymuştur. Dikdörtgen tasarım yalnızca sıfırdan farklı seviyeleri içerdiği ve madde eklenmemiş veya tek maddeli muameleleri içermediği için sonuçlar, sinerjik veya koordineli eylemin kanıtı değil, test edilen dokuz kombinasyonun ampirik bir karşılaştırması olarak yorumlanmaktadır. Pratik uygulamanın önerilmesinden önce ek doz aralığı genişletme, bağımsız doğrulama ve yetiştiricilik ölçeğinde değerlendirme gereklidir.
1 Giriş
Nitzschia closterium, hızlı büyüme hızı, yüksek besin değeri ve geniş çevresel uyum yeteneği nedeniyle akakültürde yaygın olarak canlı yem olarak kullanılan bir deniz diatomudur. Özellikle proteinlere, doymamış yağ asitlerine (PUFA’lar), vitaminlere ve diğer biyoaktif bileşiklere zengindir; bu nedenle yumuşakçaların, kabukluların ve ticari açıdan önemli diğer deniz türlerinin larva yetiştiriciliği için ideal bir başlangıç yemidir. Akakültürdeki beslenme rolünün ötesinde, N. closterium, eikozapentaenoik asit (EPA), dokozahexaenoik asit (DHA), fonksiyonel lipidler ve hücre dışı polisakkaritler (Selvam ve ark., 2024; Ma ve ark., 2026; Zhao ve ark., 2026) üretimi için yüksek değerli metabolitler üreten umut verici bir mikroalgal hücre fabrikası olarak giderek artan bir ilgi çekmektedir. Bu avantajlara rağmen, N. closterium‘nin güvenilir ölçekli üretimi, pratik akakültür ortamlarında karşılaşılan çevresel dalgalanmalar tarafından sınırlanmaya devam etmektedir; bunlar arasında en kritik ancak yeterince ele alınmayan zorluklardan biri tuzluluk kararsızlığıdır.
Duzluluk, deniz mikroyosurlarının fizyolojik performansını düzenlemede temel bir rol oynar. Düşük duzluluk koşullarına maruz kalmak, hücre osmotik homeostazını bozar, fotosentez verimliliğini azaltır, karbon dağılımını değiştirir ve reaktif oksijen türlerinin (ROS) aşırı birikimini tetikleyerek sonunda büyüme baskılanması ve azalmış metabolit üretkenliğine yol açar (Armbrust, 2009; Fal ve ark., 2022; He ve ark., 2025). Bu olumsuz etkilerle başa çıkmak için mikroyosurlar, osmotik ayarlanma, membran lipid yeniden düzenlenmesi ve enzimatik ile enzimatik olmayan antioksidan savunma sistemlerinin yukarı düzenlenmesini içeren bir dizi uyarlama tepkisi aktive eder (Teh ve ark., 2021; Kurahashi ve ark., 2023; Ismaiel ve ark., 2024). N. closterium nispeten geniş bir duzluluk toleransı göstermekle birlikte, uzun süreli veya ani olarak düşük duzluluğa maruz kalmaya yine de önemli büyüme baskılanması, fotosentez bozulması ve oksidatif hasar neden olur (Fal ve ark., 2022). Bu hassaslık, pratik açıdan özel bir endişe taşır çünkü su ürünleri yetiştiriciliğinde tohum/fide üretiminin yoğun olduğu dönem, kültür suunun duzluluğunu keskin biçimde düşüren yoğun yağmurlarla sık sık örtüşür; tuzlu tatlı su birleşim alanları ve kıyı kuluçka tesisleri ise doğalarıdan düşük ve değişken duzluluk rejimlerine tabidir (Teh ve ark., 2021). Bu koşullar altında N. closteriumnin büyüme verimi ve besin kalitesi belirgin biçimde düşer ve kuluçka döneminde istikrarlı canlı besin tedariki için kritik bir darboğaz yaratır.
Dışsal biyoaktif katkı maddeleri son yıllarda mikroalglerin biyodışı streslere karşı dayanıklılığını artıran etkili ve ekonomik bir strateji olarak öne çıkmaktadır. Uygun katkı maddeleri hücre içi homeostazı güçlendirebilir, fotosentez aygıtını stabilize edebilir, karbon metabolizmasını yönlendirebilir ve antioksidan savunmayı güçlendirebilir; böylece olumsuz koşullar altında hücre birikimini sürdürebilir ve yüksek değerli metabolitlerin sentezini teşvik edebilir (Zhao ve ark., 2026). Aday bileşikler arasında, susam yağından elde edilen doğal bir fenolik antioksidan olan sesamol (SL), ROS’yu verimli biçimde temizler ve membran lipid peroksidasyonunu azaltır (Pathak ve ark., 2014; Yu ve ark., 2015; Majdalawieh ve Mansour, 2019). Melatonin (MT), hem güçlü bir antioksidan hem de çok işlevli bir sinyal molekülü olarak fotosentez makinesini korur ve antioksidan metabolizmayı düzenler (Roopin ve ark., 2013; Hardeland, 2015; Ding ve ark., 2018; Khan ve ark., 2020; Zhao ve ark., 2021; Zhu ve ark., 2022; Arnao ve ark., 2023). Spermidin (SPD), yaygın bir poliamin olarak, membran stabilizasyonu, hücre bölünmesinin uyarılması ve antioksidan enzim kaskadlarının aktive edilmesi dahil olmak üzere çoklu mekanizmalar yoluyla stres dayanıklılığını artırır (Zhang ve ark., 2019; Su ve ark., 2022; Bo ve ark., 2023; Lin ve ark., 2024). Bu üç katkı maddesi, stres yanıtı ağıının farklı düğümlerini hedefler—ROS temizleme (SL), fotosentez koruması ve sinyal verme (MT) ve membran bütünlüğü ve hücre çoğalması (SPD)—birlikte uygulamalarının düşük tuzluluk stresinde ampirik değerlendirilmeye değer olduğunu öne sürmektedir.
Bununla birlikte, önceki çalışmaların çoğu mikroyassıların egzogen katkılara karşı gösterdiği fizyolojik yanıtlara odaklanmışken, çoklu katkı maddelerinin düşük tuzluluk stresi altındaki etkileri iyi anlaşılamamaktadır (Stirk ve van Staden, 2020; Negi ve ark., 2024). Özellikle, farklı katkı maddesi kombinasyonlarının N. closterium‘de büyüme, fotosentez, karbon metabolizması ve antioksidan savunma üzerindeki etkilerine ilişkin sınırlı bilgi mevcuttur. Bu nedenle bu çalışma, SL, MT ve SPD’nin N. closterium‘nin büyüme performansı, biyokimyasal bileşimi ve antioksidan yanıtları üzerindeki etkilerini düşük tuzluluk stresi altında sistematik olarak değerlendirmek için L9(3⁴) dikdörtgen deneysel tasarımını kullanmıştır. Dokuz test edilen muamele arasında en iyi performansı gösteren kombinasyon, aralık analizi ile belirlenmiş ve test edilen matristeki her faktörün göreli etkisi tespit edilmiştir. Bulgular, sinerjik etkilerin kanıtı değil, test edilen kombinasyonların ampirik bir taraması olarak yorumlanmakta ve pratik uygulamadan önce daha ileri doğrulamaya ihtiyaç bulunmaktadır.
2 Materyaller ve yöntemler
2.1 Alg suşu ve kültür koşulları
Bu deneyde kullanılan N. closterium alg suşu, Ningbo Üniversitesi Beslenen Organizmalar Laboratuvarı’nın alg suşu deposunda muhafaza edilmiştir (suş erişim numarası: NC-NBU-2022, talep üzerine temin edilebilir). Alg kültürü, 25 °C sıcaklıkta, 160 μmol·m⁻²·s⁻¹ ışık yoğunluğunda ve 12 saat ışık:12 saat karanlık ışık döngüsüne sahip aydınlatılmış inkübatörde statik olarak inkübe edilmiştir. Kültür ortamı, tuzluluk 5 ve 25 olacak şekilde ayarlanmış sterilize doğal deniz suundan ve Ningbo Üniversitesi 3# ortam formülünden (1:1000; formül için bkz. Tab.2.1) oluşmaktadır (Tablo 1). Cam malzemeler 140 °C’de 2 saat kuru ısı ile sterilize edilmiştir. İnokülüm yoğunluğu 1,0 × 10⁵ hücre·mL⁻¹ olup, kültürler aerasyon olmadan 250 mL’lik Erlenmeyer balonlarında 150 mL ortam içinde muhafaza edilmiştir; pH 8,0 ± 0,1 olarak ayarlanmış ve sonrasında kontrol edilmemiştir.
Tablo 1
| Nutrient composition | Content (g·L-1) |
|---|---|
| KNO3 | 100 |
| KH2PO4 | 10 |
| FeSO4·7H2O | 2.5 |
| MnSO4 | 0.25 |
| EDTANa2 | 10 |
Ningbo Üniversitesi 3# ortam formülü.
Toplam toplu kültür süresi 7 gün olarak belirlendi. Kültürler, kademeli bir aklimanasyon olmadan doğrudan 25 tuzluktan 5 tuzluğa aktarıldı. Tohum kültürünün fiziksel büyüme fazı, sürekli bir büyüme eğrisinden değil, kültür yaşı ve başlangıç hücre yoğunluğu (1.0 × 10⁵ hücre·mL⁻¹) pratik göstergeler olarak kullanılarak belirlendi. Artan tuzların veya ekilen maddelerin artıklarının kuru ağırlık ölçümlerine katkıda bulunup bulunmadığı, bir tuzdan arındırma işlemi (örneğin amonyum format yıkaması) ile doğrulanmadı. Silikat, ortamın hazırlanmasında kullanılan doğal deniz suyundan sağlandı; Ningbo Üniversitesi 3# formülünde ek silikat ekilmedi.
2.2 Dik açılı deney tasarımı
Bu deneyde, sabit 5 tuzluk değeriyle bir L9(3⁴) dik açılı deney tasarımı kullanıldı (Tablo 2). Üç faktör—SL (A), MT (B) ve SPD (C)—her biri üç seviyede (Tablo 2.2) belirlendi. Toplamda 9 uygulama grubu oluşturuldu ve herhangi bir exojen ek maddenin katılmadığı baz ortam kullanılarak, sırasıyla 5 ve 25 tuzluk değerlerinde iki kontrol grubu, gruba 3 tekrar olacak şekilde kuruldu. L9(3⁴) dizisinin kullanılmayan dördüncü sütunu hata terimi olarak atanmadı.
Tablo 2
| Seviye | Faktör | ||
|---|---|---|---|
| A (SL mg·L⁻¹) |
B (MT mg·L⁻¹) |
C (SPD mg·L⁻¹) |
|
| 1 | 15 | 10 | 50 |
| 2 | 30 | 20 | 100 |
| 3 | 60 | 40 | 150 |
Düşük tuzluluk stresi altında exojen ek madde kombinasyonlarının L9(3⁴) dik açılı deney tasarımı.
2.3 Özel büyüme hızının belirlenmesi
Kültür periyodunun sonunda numune alımı yapıldı. Numune alımından önce, homojen bir hücre süspansiyonu sağlanması ve hücre çökelmesi nedeniyle oluşan sayım hatalarının azaltılması için N. closterium kültürleri nazikçe ters çevrilip çalındı. Hücre yoğunluğu standart prosedürlere göre bir hemesitometre ile belirlendi ve ×10⁵ hücre·mL⁻¹ biriminde ifade edildi. Her numune üç kez ölçüldü ve sonraki analizler için ortalama değer kullanıldı. Özel büyüme hızı (K) şu şekilde hesaplandı:
burada Nt₀ başlangıç hücre yoğunluğudur (×10⁵ hücre·mL⁻¹), Nt ise t anındaki (g) nihai hücre yoğunluğu ve Δt kültür süresidir (g). Özel büyüme hızı yalnızca iki zaman noktasından (0. ve 7. gün) hesaplandı. Bu yaklaşım lag, üreme veya durağan fazları ayırt etmez. Her bir muamele için üç tekrar, bağımsız kültür flakonlarından oluşuyordu; deney tamamıyla tekrarlanmadı.
2.4 Klorofil a tayini
7. günden sonra 100 mL kültür (Vnumune), 0,22 μm karışık lifli membran kullanılarak karanlıkta filtrelendi. Filtre, buz soğuklu %95 etanole yerleştirildi ve özüt nihai hacme V₁ (10 mL) getirildi. 4 °C’da 24 saat karanlıkta ekstraksiyondan sonra karışım santrifüj edildi (4.000 rpm, 10 dk) ve süpernatantın absorbansı %95 etanole karşı 665 nm ve 649 nm’de ölçüldü. Klorofil a içeriği (μg·L⁻¹) şu şekilde hesaplandı:
burada OD₆₆₅ ve OD₆₄₉ absorbans değerleri, V₁ ekstraksiyon hacmi (mL) ve Vnumune filtreme hacmidir (L). Klorofil a değerleri hacimsel konsantrasyonlar (μg·L⁻¹) olarak bildirildi ve hücre sayısına veya biyokütleye göre normalize edilmedi.
2.5 Toplam lipid tayini
Ön kurutma ile toz haline getirilen alg tozu (0,05 g, Walg olarak hassas tartım) Bligh-Dyer yöntemi ile kloroform-metanol-su (1:2:0,8, v/v/v) çözücüsü kullanılarak düşük sıcaklıkta ultrasonik işlem (4 °C) uygulanarak ekstrakte edildi. Faz ayrışmasının ardından alt kloroform fazı toplandı, rotasyonel buharlaştırma ile kurutuldu ve kalan lipid ağırlığı (Wlipid) gravimetrik olarak belirlendi. Toplam lipid içeriği (TL, %) şu şekilde hesaplandı:
2.6 Yağ asidi tayini
Yağ asidi metil esterleri, 60 °C’da 2 saat boyunca 5–6% KOH-metanol: su (4:1, v/v) ile sabunlaştırma, ardından metillenme ve kloroform: n-heksan (1:4, v/v) ile ekstraksiyon ile hazırlandı. GC–MS analizi, HP-5MS kolonu (30 m × 0,25 mm × 0,25 μm) ile donatılmış Agilent 7890B sisteminde gerçekleştirildi. Taşıyıcı gaz olarak 1,0 mL·min⁻¹ hızında helyum kullanıldı; enjeksiyon splitless modunda yapıldı; fırın sıcaklık programı: 140 °C (5 min tutuldu) → 4 °C·min⁻¹ ile 240 °C’ya (10 min tutuldu). Tanılama, tutulma zamanları ve özgün standartlarla (Supelco 37 bileşenli FAME karışımı) kütle spektrumlarının eşleşmesi ile yapıldı (eşleme >90%). Pik alanları toplam tanımlanmış yağ asitlerine göre normalize edildi; iç standart bulunmadığı için mutlak konsantrasyonlar hesaplanmadı ve sonuçlar göreli yüzde olarak bildirildi. İç standart kullanılmadı. Bu nedenle mutlak konsantrasyonlar (mg·L⁻¹ veya pg·hücre⁻¹) hesaplanmadı. HP-5MS kutupsuz kolon, doymamış FAME izomerlerini ayırtma konusunda sınırlı bir yeteneğe sahiptir; tanılama, Supelco 37 bileşenli FAME karışımı ve NIST kütüphanesi ile tutulma zamanı eşleşmesine dayanmaktadır (eşleme >90%). Sabunlaştırma, 60 °C’da 2 saat boyunca antioksidan (ör. BHT) eklenmeden gerçekleştirildi.
2.7 Çözünür şeker tayini
Suda çözünür şekerler, 0,10 g dondurularak kurutulmuş toz 80 °C’de 30 dakika boyunca %80 etanol ile (iki kez tekrarlanarak) ekstrakte edildi. Birleştirilen süpernatantlar buharlaştırıldı, distile suda yeniden çözüldü ve 25 mL’ye tamamlandı. Antron-sülfrik asit metodu kullanıldı: 0,20 mL numune + 1,00 mL antron reaktifi (100 mL H₂SO₄ içinde 0,2 g antron), kaynamalı suda 10 dakika ısıtıldı ve absorbans 620 nm’de okundu. Sada çözünür şeker içeriği (SSC, %), şu şekilde hesaplandı:
burada C standart eğriden elde edilen glikoz kütlesi (μg), V toplam hacim (25 mL) ve W alg tozunun kuru ağırlığı (g)’dir.
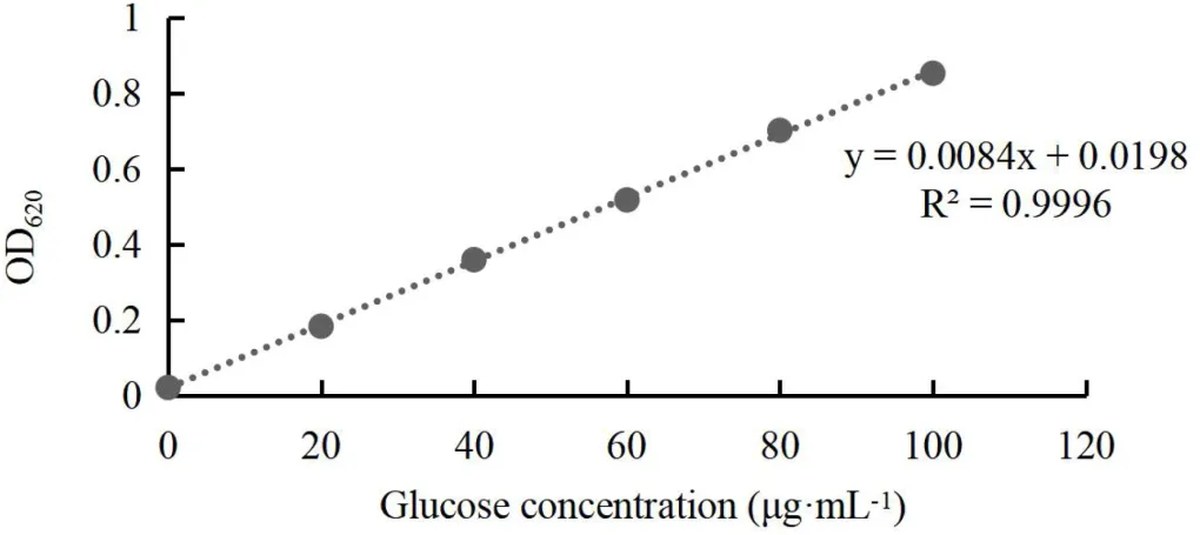
Mikroplaka okuyucu ile ölçülen absorbans değerleri, standart glikoz konsantrasyonu ile pozitif korelasyon göstermiştir, Şekil 1‘de gösterildiği gibi. Ayrıca, OD620’de ölçülen sada çözünür şeker içeriği için kalibrasyon eğrisi y = 0,0084x + 0,0198, R² = 0,9996 şeklindedir; burada x glikoz konsantrasyonu (μg·mL⁻¹)’dir. Son hesaplamaya 0,20 mL’lik alikot ve tüm seyreltme faktörleri dahil edilmiştir. Absorbans, kaynamalı suda ısıtma işleminden sonra ölçüldü.
Şekil 1
2.8 Antioksidan tepkilerin belirlenmesi
7. günde, 10 mL alg süspansiyonu santrifüj edildi ve çökelti ekstraksiyon tamponunda yeniden süspansiyonlandırılarak 60 Hz’de 3 dakika boyunca homojenleştirildi. Santrifüjden sonra, süpernatant malondialdehit (MDA), superoksid dismutaz (SOD) ve katalaz (CAT) ölçümlerinde ticari kitler (Nanjing Jiancheng Bioengineering Institute, Çin; sırasıyla A003-1, A001-3 ve A007-1 kitleri) kullanılarak analiz edildi. Absorbans, üreticinin protokollerine uygun olarak MDA için 530 nm’de, SOD için 450 nm’de ve CAT için 405 nm’de okundu. Süpernatanttaki protein konsantrasyonu Bradford metodu ile (Beyotime, Çin) belirlendi ve enzim aktiviteleri normalize edildi (U·mg⁻¹ protein). Kalıntı fenoliklerin (sesamol, melatonin) TBARS veya WST-1 analizlerini etkileyip etkilemediği doğrulanmadı; hücreler ekstraksiyondan önce yıkanmadı.
2.9 Veri işleme
Deneysel sonuçlar Ortalama ± SD olarak ifade edilmiştir. Ham veriler Excel 2021 kullanılarak düzenlenmiş; tek değişkenli analiz, tek yönlü ANOVA ve Duncan’ın çoklu karşılaştırma testi SPSS 24.0 ile gerçekleştirilmiştir. Dikgen tasarım için ayrıca alan analizi yapılmıştır. Isı haritası ve özet diyagramı dahil tüm grafikler GraphPad Prism 9.5.0 kullanılarak oluşturulmuştur. P < 0.05 anlamlı farkı, P < 0.01 ise son derece anlamlı farkı gösterir.
3 Bulgular
3.1 Ekzojen katkilerin büyüme performansı üzerindeki etkileri
3.1.1 Ekzojen katkilerin büyüme hızı üzerindeki etkileri
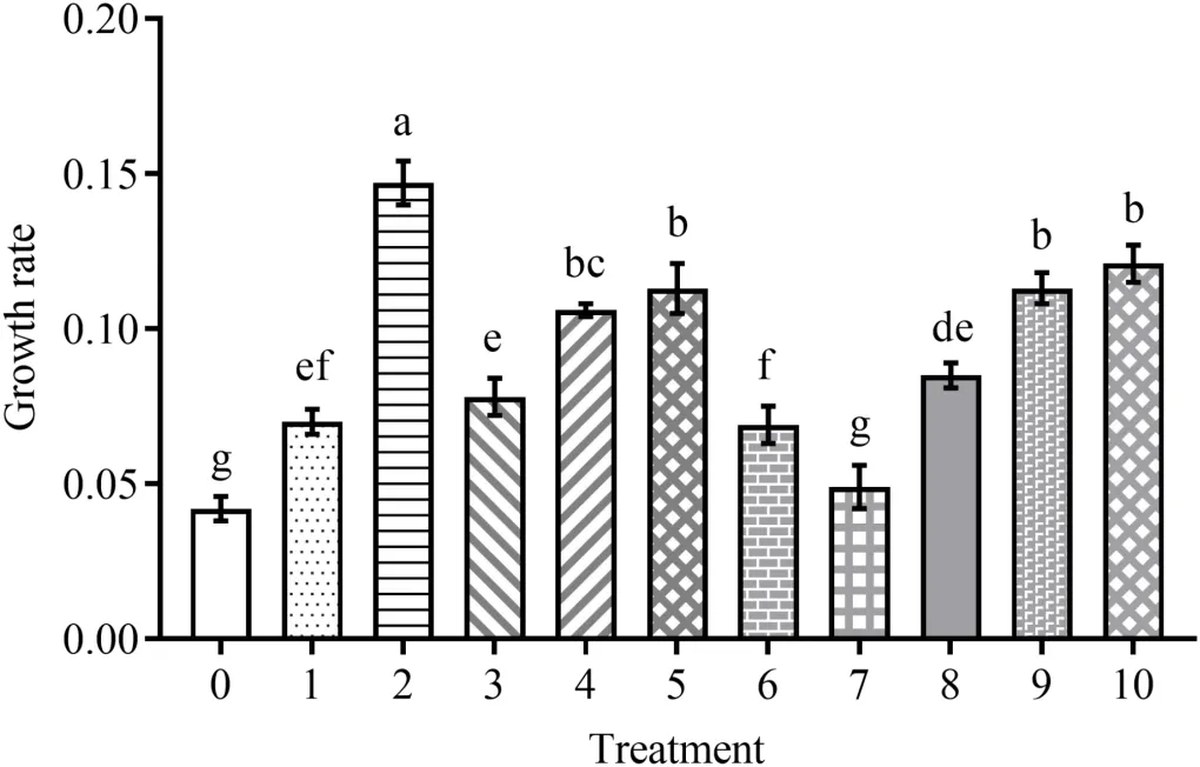
Ekzojen katkilerin düşük tuzluluk stresi altındaki N. closterium‘nin büyüme hızı (K) üzerindeki etkileri Şekil 2‘de gösterilmektedir. Büyüme hızı muameleler arasında belirgin biçimde değişmiş, 0.049 ile 0.147 arasında değişmiştir. 2. muamele (A1B2C2) en yüksek büyüme hızını (0.147 ± 0.007) gösterirken, 7. muamele (A3B1C3) en düşük değeri (0.049 ± 0.007) göstermiştir. Düşük tuzluluk kontrolüne (0.042 ± 0.004) kıyasla 2. muamele büyüme hızını anlamlı biçimde artırmış ve normal tuzluluk kontrolünün (0.121 ± 0.006) %121.5’ine ulaşmıştır. Alan analizi, üç faktörün büyüme hızı üzerindeki etkilerinin SPD (C; R = 0.047) > MT (B; 0.040) > SL (A; 0.016) sırasını izlediğini göstermiş; dokuz denenen kombinasyon arasında en yüksek değerin A1B2C2 (15 mg·L⁻¹ SL, 20 mg·L⁻¹ MT ve 100 mg·L⁻¹ SPD) olduğu belirlenmiştir. ANOVA, SPD’nin büyüme hızı üzerinde anlamlı etkisi olduğunu (i>P < 0.05), MT ve SL’nin etkilerinin ise istatistiksel olarak anlamlı olmadığını (P > 0.05) teyit etmiştir.
Şekil 2
3.1.2 Ekzojen katkilerin klorofil A üzerindeki etkileri
Düşük tuzluluk stresi altında N. closterium‘nin Chla içeriğine (μg·L⁻¹) dışarıdan eklenen katkı maddelerinin etkileri Şekil 3‘te gösterilmektedir. Chla içeriği muameleler arasında belirgin biçimde değişmiş, 231,3 ile 361,4 μg·L⁻¹ arasında değişmiştir. 3. muamele (A1B3C3) en yüksek Chla içeriğini (361,4 ± 12,6) üretirken, 1. muamele (A1B1C1) en düşük değeri (231,3 ± 9,3) göstermiştir. Düşük tuzluluk kontrolüne (162,8 ± 9,7) kıyasla 3. muamele Chla içeriğini önemli ölçüde artırmış ve normal tuzluluk kontrolünün (332,7 ± 11,6) %108,6’ına ulaşmıştır. Range analizi, üç faktörün Chla içeriği üzerindeki etkilerinin SPD (C; R = 76,8) > MT (B; 45,2) > SL (A; 8,0) sırasını izlediğini ve A1B3C3’ün (15 mg·L⁻¹ SL, 40 mg·L⁻¹ MT ve 150 mg·L⁻¹ SPD) test edilen dokuz kombinasyon arasında en yüksek değeri oluşturduğunu ortaya koymuştur. ANOVA, hem MT’nin hem de SPD’nin Chla içeriğini önemli ölçüde etkilediğini (P < 0,05), SL etkisinin ise istatistiksel olarak anlamlı olmadığını (P > 0,05) göstermiştir.
Şekil 3
3.2 Dışarıdan eklenen katkı maddelerinin biyokimyasal bileşim üzerindeki etkileri
3.2.1 Dışarıdan eklenen katkı maddelerinin toplam lipid içeriği üzerindeki etkileri
N. closterium‘nin düşük tuzluluk stresinde ekzojen katkilerin toplam lipit (TL; %) içeriğine etkileri Şekil 4‘de gösterilmektedir. TL içeriği muameleler arasında belirgin biçimde değişmiş, 18,2%’den 26,8%’ye kadar ulaşmıştır. 5. muamele (A2B2C3) en yüksek TL içeriğini (26,8 ± 1,2) üretirken, 1. muamele (A1B1C1) en düşük değeri (18,2 ± 0,9) göstermiştir. 5. muamele, düşük tuzluluk kontrolüne (22,5 ± 0,9) göre TL içeriğini istatistiksel olarak anlamlı biçimde artırmıştır. Range analizi, üç faktörün TL içeriğine etkilerinin SPD (C; R = 6,4) > MT (B; 1,7) > SL (A; 1,5) sırasını izlediğini ortaya koymuştur; A2B2C3 (30 mg·L⁻¹ SL, 20 mg·L⁻¹ MT ve 150 mg·L⁻¹ SPD) dokuz test edilen kombinasyon arasında en yüksek değeri olarak belirlenmiştir. ANOVA, SPD’nin TL içeriği üzerinde son derece anlamlı etkisi olduğunu (P < 0,01), MT’nin anlamlı etkisi olduğunu (P < 0,05) göstermiş, ancak SL’nin etkisinin istatistiksel olarak anlamlı olmadığı ortaya çıkmıştır (P > 0,05).
Şekil 4
3.2.2 Ekzojen katkilerin yağ asidi bileşimine etkileri
N. closterium‘nin yağ asidi bileşimi, düşük tuzluluk stresinde farklı exogen katkı maddesi kombinasyonlarıyla belirgin şekilde etkilenmiştir (Şekil 5). EPA içeriği (%) 14.62% ile 21.24% arasında değişmiş, en yüksek değer 5. muamelede (A2B2C3; 21.24 ± 0.91), en düşük değer ise 1. muamelede (A1B1C1; 14.62 ± 0.63) gözlemlenmiştir. Düşük tuzluluk kontrolüne (14.20 ± 0.53) kıyasla, 5. muamele EPA içeriğini normal tuzluluk kontrolünün (%114.2’si; 18.60 ± 0.74) 114.2%’sine çıkarmıştır. Buna karşılık, DHA içeriği (%) 2.83% ile 7.91% arasında değişmiş, maksimum değeri 7. muamelede (A3B1C3; 7.91 ± 0.34), minimum değeri ise 1. muamelede (2.83 ± 0.12) kaydedilmiştir. 7. muamele, DHA içeriğini düşük tuzluluk kontrolüne (6.14 ± 0.16) kıyasla anlamlı biçimde artırmıştır. Toplam PUFA içeriği (%) 34.86% ile 55.28% arasında değişmiş, 5. muamele en yüksek değeri (55.28 ± 2.31), 1. muamele ise en düşük değeri (34.86 ± 1.46) vermiştir. Düşük tuzluluk kontrolüne (42.11 ± 1.82) kıyasla, 5. muamele PUFA içeriğini normal tuzluluk kontrolünün (%114.0’si; 48.49 ± 1.51) 114.0%’sine geri getirmiştir; bu da dokuz test edilen kombinasyon içinde en yüksek değer altında bir aşırı telafi tepkisi göstermektedir.
Şekil 5
Aralık analizi, farklı yağ asidi bileşenleri için belirleyici düzenleyici örüntüler ortaya koymuştur. EPA birikimine yönelik etkiler SPD (C; R = 4.88) > MT (B; 1.20) > SL (A; 0.78) sırasını izlerken, DHA birikimi öncelikle SL (A; R = 3.28) tarafından, ardından SPD (C; 1.52) ve MT (B; 0.32) tarafından etkilenmiştir. Toplam PUFA içeriği için üç faktörün etkisi SPD (C; R = 12.72) > SL (A; 5.47) > MT (B; 2.22) sırasıyla derecelendirilmiştir. Aralık analiziyle belirlenen dokuz test edilen kombinasyon içinde en yüksek değer; EPA ve PUFA birikimi için A2B2C3 (30 mg·L⁻¹ SL, 20 mg·L⁻¹ MT ve 150 mg·L⁻¹ SPD), DHA birikimi için ise A3B1C3 (60 mg·L⁻¹ SL, 10 mg·L⁻¹ MT ve 150 mg·L⁻¹ SPD) olmuştur.
ANOVA, SPD’nin hem EPA hem de PUFA içeriği üzerinde son derece anlamlı bir etkiye sahip olduğunu göstermiştir (P < 0.01). SL, DHA içeriği üzerinde son anlamlı bir etkiye (P < 0.01) ve PUFA içeriği üzerinde anlamlı bir etkiye (P < 0.05) sahip olurken, SPD’nin DHA birikimi üzerinde de anlamlı bir etkiye sahip olduğu görülmüştür (P < 0.05). Buna karşılık, MT’nin EPA, DHA veya PUFA içeriği üzerinde herhangi bir anlamlı etkiye sahip olmadığı belirlenmiştir (P > 0.05).
3.2.3. Ekzojen katkilerin çözünür şeker içeriğine etkileri
Düşük tuzluluk stresi altında N. closterium‘nin çözünür şeker içeriğine (SSC; %) ekzojen katkilerin etkileri Şekil 6‘de gösterilmektedir. SSC muameleler arasında belirgin biçimde değişmekte, 4.31%’den 8.28%’ye kadar değişmektedir. Muamele 5 (A2B2C3) en yüksek SSC‘yi (8.28 ± 0.78) üretirken, muamele 1 (A1B1C1) en düşük değeri (4.31 ± 0.57) göstermiştir. Düşük tuzluluk kontrolüne (6.10 ± 0.16) kıyasla, muamele 5 SSC‘yi anlamlı biçimde artırmıştır. Range analizi, üç faktörün SSC üzerindeki etkilerinin SPD (C; R = 3.08) > SL (A; 0.64) > MT (B; 0.09) sırasını izlediğini göstermiş, A2B2C3 (30 mg·L⁻¹ SL, 20 mg·L⁻¹ MT ve 150 mg·L⁻¹ SPD) dokuz test edilen kombinasyon arasında en yüksek değer olarak belirlenmiştir. ANOVA, SPD’nin SSC üzerinde son anlamlı bir etkiye sahip olduğunu (P < 0.01) göstermiş, ancak SL ve MT’nin etkilerinin istatistiksel olarak anlamlı olmadığı bulunmuştur (P > 0.05).
Şekil 6
3.3. Ekzojen katkilerin antioksidan yanıtlara etkileri
3.3.1. Ekzojen katkilerin MDA düzeylerine etkileri
Alçak tuzluluk stresinde N. closterium‘nin MDA içeriğine (nmol·mL⁻¹) exogen katkilerin etkileri Şekil 7‘de gösterilmektedir. MDA içeriği muameleler arasında belirgin biçimde değişmiş, 6,18 ile 9,48 nmol·mL⁻¹ arasında değişmiştir. 4. muamele (A2B1C2) en düşük MDA içeriğini (6,18 ± 0,19) üretirken, 8. muamele (A3B2C1) en yüksek değeri (9,48 ± 0,29) göstermiştir. Alçak tuzluluk kontrolüne (10,70 ± 0,31) kıyasla 4. muamele MDA içeriğini istatistiksel olarak anlamlı düzeyde %42,2 oranında azaltmıştır. Range analizi, üç faktörün MDA içeriği üzerindeki etkilerinin SL (A; R = 1,7) > SPD (C; 1,2) > MT (B; 0,5) sırasını izlediğini ortaya koymuştur. Daha düşük MDA içeriğinin lipid peroksidasyonuna karşı daha iyi koruma sağladığından, A2B1C2 (30 mg·L⁻¹ SL, 10 mg·L⁻¹ MT ve 100 mg·L⁻¹ SPD) dokuz test edilen kombinasyon arasında en yüksek değer olarak belirlenmiştir. ANOVA, hem SL hem de SPD’nin MDA içeriğini anlamlı biçimde etkilediğini (P < 0,05), MT’nin etkisinin ise istatistiksel olarak anlamlı olmadığını (P > 0,05) göstermiştir.
Şekil 7
3.3.2 Exogen katkilerin SOD aktivitesi üzerindeki etkileri
N. closterium‘nin düşük tuzluluk stresinde ekzojen katkilerin SOD aktivitesi (U·mg prot⁻¹) üzerindeki etkileri Şekil 8‘de gösterilmektedir. SOD aktivitesi muameleler arasında belirgin biçimde değişmekte, 34.87 ile 71.32 U·mg prot⁻¹ arasında değişmektedir. Muamele 5 (A2B2C3) en yüksek SOD aktivitesini (71.32 ± 2.31) üretirken, muamele 8 (A3B2C1) en düşük değeri (34.87 ± 1.28) göstermiştir. Hem düşük tuzluluk kontrolü (35.80 ± 1.12) hem de normal tuzluluk kontrolü (31.90 ± 1.69) ile karşılaştırıldığında, muamele 5 SOD aktivitesini anlamlı biçimde artırmıştır. Açıklık analizi, üç faktörün SOD aktivitesi üzerindeki etkilerinin SPD (C; R = 26.22) > SL (A; 10.10) > MT (B; 0.26) sırasını izlediğini ve A2B2C3’ün (30 mg·L⁻¹ SL, 20 mg·L⁻¹ MT ve 150 mg·L⁻¹ SPD) test edilen dokuz kombinasyon arasında en yüksek değeri oluşturduğunu ortaya koymuştur. ANOVA, SPD’nin SOD aktivitesi üzerinde son derece anlamlı bir etkiye sahip olduğunu (P < 0.01), SL’nin anlamlı bir etkiye sahip olduğunu (P < 0.05), MT’nin etkisinin ise istatistiksel olarak anlamlı olmadığını (P > 0.05) göstermektedir.
Şekil 8
3.3.3 Ekzojen katkilerin CAT aktivitesi üzerindeki etkileri
N. closterium‘nin düşük tuzluluk stresinde ekzojen katkilerin CAT aktivitesi (U·mg prot⁻¹) üzerindeki etkileri Şekil 9‘de gösterilmektedir. CAT aktivitesi muameleler arasında belirgun biçimde değişmekte, 0.86 ile 2.13 U·mg prot⁻¹ arasında değişmektedir. Muamele 5 (A2B2C3) en yüksek CAT aktivitesini (2.13 ± 0.08) üretirken, muamele 1 (A1B1C1) en düşük değeri (0.86 ± 0.04) göstermiştir. Hem düşük tuzluluk kontrolü (1.02 ± 0.03) hem de normal tuzluluk kontrolü (0.95 ± 0.05) ile karşılaştırıldığında, muamele 5 CAT aktivitesini anlamlı biçimde artırmıştır. Açıklık analizi, üç faktörün CAT aktivitesi üzerindeki etkilerinin SPD (C; R = 0.80) > SL (A; 0.37) > MT (B; 0.15) sırasını izlediğini ve A2B2C3’ün (30 mg·L⁻¹ SL, 20 mg·L⁻¹ MT ve 150 mg·L⁻¹ SPD) test edilen dokuz kombinasyon arasında en yüksek değeri oluşturduğunu ortaya koymuştur. ANOVA, SPD’nin CAT aktivitesi üzerinde anlamlı bir etkiye sahip olduğunu (P < 0.05), SL ve MT’nin etkilerinin ise istatistiksel olarak anlamlı olmadığını (P > 0.05) göstermektedir.
Figür 9
3.4 Exojen katkı maddelerinin düzenleyici etkilerinin kapsamlı karşılaştırılması
Üç exojen katkı maddesinin düşük tuzluluk stresi altında çeşitli fizyolojik parametreler üzerindeki göreceli düzenleyici gücünü görsel olarak karşılaştırmak için bu çalışma, her faktör için analiz ile aralık değerini (R) hesaplamış ve kapsamlı bir görselleştirme için ısı haritası oluşturmuştur (Figür 10).
Figür 10
Sonuçlar, SPD’nin çoğu büyüme, fotosentez ve beslenme parametresi için en büyük aralık değerlerini gösterdiğini, özellikle Chla (R = 76,8), toplam lipid (R = 6,4), PUFA (R = 12,72), çözünür şeker (R = 3,08), SOD (R = 26,22) ve CAT (R = 0,80) açısından baskın etkisi olduğunu öne sürmektedir. Buna karşılık, SL en büyük aralığı DHA (R = 3,28) ve MDA (R = 1,7) için göstermiş, bu da doymamış yağ asidi sentezi ve membran lipid peroksidasyonunun azaltılması konularında belirgin bir düzenleyici rolü işaret etmektedir. MT, söz konusu deney koşulları altında ölçülen hiçbir parametre için en büyük aralığı göstermemiştir. Bu aralık temeli karşılaştırmalar ampiriktir ve kesin varyans bileşenleri yerine yalnızca tarama göstergesi olarak yorumlanmalıdır.
4 Tartışma
Düşük tuzluluk stresi, deniz mikroyeşaylarının büyüme ve metabolik performansını sınırlayan başlıca çevresel bir strestir. Tuzlulukta meydana gelen azalma, hücre içi ozmotik homeostazı ve iyonik dengeyi bozarak fotosentezi, hücre bölünmesini ve karbon metabolizmasını olumsuz etkiler. Buna ek olarak, tuzluluk stresi, reaktif oksijen türlerinin (ROS) aşırı üretimini tetikleyerek membran lipid peroksidasyonuna, fotosentetik aparat hasarına ve hücre metabolizasının oksidatif bozulmasına yol açar (Zhong ve ark., 2021; Cvjetinovic ve ark., 2024). Bu çalışmada kullanılan L9(34) tarama matrisinde, SPD belirli büyüme hızı için en büyük aralık değerini gösterirken, klorofil a birikimi hem MT hem de SPD tarafından etkilenmiştir. Üç test edilen konsantrasyon arasında belirli büyüme hızı, ortanca SPD seviyesinde (100 mg·L⁻¹) en yüksek düzeyde olup, bu durum ılıman spermidin takviyesinin mikroyeşay büyümesini artırabileceği, daha yüksek seviyelerin ise bu avantajı azaltabileceği yönündeki önceki bulgularla uyumludur. Hücre için gerekli bir poliamin olan SPD’nin nükleik asit ve protein sentezini desteklediği, membranları stabilize ettiği ve hücre bölünmesini kolaylaştırdığı bilinmektedir; literatürle desteklenen bu işlevler, test edilen koşullar altında gözlemlenen büyüme yanıtlarını açıklamaya yardımcı olabilir (Zhao ve ark., 2019). SL ve MT, büyüme açısından SPD’ye göre daha küçük aralık değerleri göstermiş olup, bu durum onların bu tasarımdaki temel katkılarının daha çok stres azaltıcı etkilerle, doğrudan büyüme uyarıcı etkilerle değil ilişkili olabileceğini düşündürmektedir. Dokuz kombinasyon arasında en yüksek büyüme hızı A1B2C2 koşullarında gerçekleşmiştir; ancak tasarım sıfır ve tekli katkı seviyelerini içermediğinden, bu sıralama ampirik kalmakta ve optimize edilmiş veya sinerjik bir formülasyon kurmamaktadır.
Chla içeriği, mikroalglerin fotosentez kapasitesinin temel bir göstergesidir. Bu çalışmada hem MT hem de SPD Chla birikimini önemli ölçüde etkiledi; SPD en geniş değer aralığını gösterdi ve dokuz kombinasyon arasındaki en yüksek Chla içeriği en yüksek SPD seviyesinde elde edildi. Önceki çalışmalar, ekogenik SPD’nin stres altında fotosentez elektron taşımasını ve klorofil biyosentezini korumaya yardımcı olabileceğini öne sürmüştür (Dondini ve ark., 2000). Ayrıca, MT’nin fotosentez elektron taşımasını düzenleyerek ve askorbat–glutatyon (AsA–GSH) döngüsünü aktive ederek ROS kaynaklı oksidatif hasarı azalttığı, böylece kloroplast bütünlüğünü koruduğu ve stres koşullarında yüksek fotosentez verimliliğini koruduğu bildirilmiştir (Yin ve ark., 2019). Ancak, bu deneyde PSII verimliliği (Fv/Fm), ROS seviyeleri veya ilgili enzim aktivitölçülmediğinden, bu açıklamalar hipotez olarak kalmaktadır. A1B3C3 kombinasyonu, test edilen muameleler arasında en yüksek Chla‘yi verdi; bu da, tarama matrisinde bu uç nokta için nispeten yüksek MT ve SPD seviyelerinin uygun olduğunu göstermektedir. Bu ampirik sıralamalar, gelecekteki doz-optimizasyon deneylerine yol açabilir, ancak henüz büyük ölçekli yetiştirmeler için pratik öneriler oluşturmamaktadır.
Düşük tuzluluk stresi yalnızca mikroalg büyümesini baskulamakla kalmıyor, aynı zamanda hücresel karbon metabolizmasını da yeniden şekillendiriyor. Önceki çalışmalar, tuzluluk dalalanmalarının sabitlenen karbonun yeniden dağılımını tetikleyerek hücre üretimi, lipid biyosentezi ve osmoprotektif bileşenlerin birikimi arasında metabolik ödünleşimlere yol açtığını göstermiştir (Zhang ve ark., 2023). Bu metabolik yeniden programlama ile uyumlu olarak, mevcut çalışma, SPD’nin toplam lipid birikimini teşvik eden baskın faktör olduğunu, MT’nin ise lipid üretimine önemli ölçüde katkı sağladığını göstermiştir. Lipid birikimi, mikroalglerin enerji depolama ve membran yeniden yapılandırma yoluyla çevresel strese uyum sağlamalarını kolaylaştırarak ortamlara uyum stratejisi olarak yaygın kabul edilir (Morra ve ark., 2023). Tuzluluk stresi altında, karbon akışı öncelikli olarak lipid biyosentezine yönlendirilerek hücresel stres dayanıklılığı artırılır (Chadova, 2024). Hücrenin anahtar poliaminlerinden biri olan SPD, protein sentezini teşvik ederek, amino asit metabolizmasını düzenleyerek ve enerji kullanım verimliliğini artırarak bu süreci kolaylaştırabilir ve nihayetinde karbonun lipid biyosentetik yollara ayrılmasını artırabilir (Lavandosque ve Vischi Winck, 2025). Yağ asidi bileşimi, exogen katkı maddeleri tarafından indüklenen metabolik düzenlemeyi ayrıca yansıtmıştır. PUFA’lar, özellikle EPA ve DHA, membran akışkanlığını, yapısal kararlılığı ve besinsel kaliteyi korumak için gereklidir. Tuzluluk stresi altında, yağ asidi doymamışlığının artması, membran fonksiyonunu korumak için önemli bir uyum mekanizmasıdır. Mevcut çalışmada, EPA birikimi öncelikli olarak SPD tarafından düzenlenmiş olup, SPD’nin öncü kullanılabilirliğini ve uzun zincir PUFA biyosentezine karbon akışını artırabileceği öne sürülmüştür. Buna karşılık, DHA birikimi SL’ye karşı daha duyarlıydı; bunun nedeni SL’nin yağ asidi desaturaz aktivitesini düzenleyip çok doymam yağ asidlerinin oluşumunu teşvik etmesi olabilir (Tonon ve ark., 2005). Bu bulgular, üç katkı maddenin test edilen matris içinde EPA, DHA ve toplam PUFA için farklı sıralama örüntüleri gösterdiğini göstermektedir. Mutlak yağ asidi verimleri ve doğrudan karbon akışı ölçümleri elde edilmediğinden, karbon
yeniden yönlendirme veya belirli metabolik düzenleme hâlâ spekülasyon kapsamındadır. Yalnızca yüzde göreli değişimler, yüksek değerli yağ asitlerinin hacimsel verimliliğindeki artışı doğrulayamaz.
Lipid metabolizmasının yanı sıra, çözünebilir şeker birikimi de mikroalglerin düşük tuzluluk stresine karşı gösterdiği önemli bir uyum tepkisi olarak öne çıkar. Söz konusu tarama matrisinde SPD, çözünebilir şeker içeriği için en geniş değer aralığını göstermiş ve birikimini önemli ölçüde teşvik etmiştir. Çözünebilir şekerler, hücre içi ozmotik dengeyi korumaya yardımcı olan enerji rezervleri ve uyumlu ozmolitler olarak işlev görebilir. Önceki çalışmalar, diatomların biyotik olmayan stres altında hücre içi çözünebilir şeker ve hücre dışı polisakkarit sentezini artırdığını bildirmiştir (Wang ve ark., 2023; Rico ve ark., 2024). Güncel veri setinde, dokuz kombinasyon arasındaki en yüksek çözünebilir şeker ve toplam lipid değerleri aynı muamele altında (A2B2C3) gözlemlenmiştir. Dolayısıyla, daha önce öne sürülen karbon ayrışımı ile karbonhidrat ve lipid biyosentezi arasındaki ödünleşim ilişkisi, söz konusu sonuçlar tarafından desteklenmemektedir. Karbon akışı doğrudan ölçülmediğinden, metabolik esnekliğe dair herhangi bir yorum geçicidir.
Oksidatif stres, düşük tuzluluk koşullarında mikroalglerin büyümesini ve fizyolojik performansını sınırlayan başlıca faktörlerden biridir. Reaktif oksijen türlerinin (ROS) aşırı birikimi, hücresel redoks homeostazını bozar, membran lipid peroksidasyonunu tetikler ve sonunda normal metabolik faaliyetleri bozar (Choudhury et al., 2013). Bu fizyolojik yanıtlarla uyumlu olarak, söz konusu tarama matrisinde SL, MDA birikimi için en büyük değer aralığını gösterirken, SPD SOD ve CAT aktiviteleri için en büyük aralıkları göstermiştir. Doğal bir fenolik antioksidan olan SL, güçlü bir ROS temizleme aktivitesine sahiptir ve lipid peroksidasyonunu etkili biçimde baskılayarak stres koşullarında membran bütünlüğünü korur ve hücresel homeostazı sürdürür (Rice-Evans et al., 1996; Shahidi and Ambigaipalan, 2015). Buna karşılık, SPD SOD ve CAT aktivitelerini belirgin biçimde artırarak koruyucu etkisinin temelde enzimatik antioksidan savunma sistemini güçlendirmeye dayandığını göstermiştir. Önceki çalışmalar, poliaminlerin yalnızca ROS’ları doğrudan temizlemekle kalmayıp aynı zamanda antioksidan enzimlerle ilgili genlerin ifadesini uyarmak, antioksidan enzimleri stabilize etmek ve membran fosfolipidlerini oksidatif hasardan korumak suretiyle hücrenin oksidatif strese karşı dayanıklılığını artırdığını göstermiştir (Posmyk and Janas, 2009; Alcázar et al., 2011; Valdés-Santiago and Ruiz-Herrera, 2014). SL ayrıca SOD aktivitesini de desteklemiş olsa da, CAT aktivitesi üzerindeki etkisi nispeten sınırlı kalmıştır. Buna karşılık, bu çalışmada MT’nin ne SOD ne de CAT aktivitesi üzerinde anlamlı bir etkisi gözlemlenmiştir. Olası açıklamalar, hâlâ hipotez niteliği taşımaktadır; test edilen konsantrasyon aralığının (10–40 mg·L⁻¹) bu diatom türü için en etkili fizyolojik pencerenin dışında kalmış olabileceği ya da
N. closterium
exogen melatonine farklı yanıt verir; bu durum literatürde bildirilen bitki ve diğer alg sistemlerinden farklıdır (Posmyk ve Janas, 2009; Johnson ve ark., 2015; Laxa ve ark., 2019). Bu olasılıkların deneysel doğrulaması yapılmamıştır. Genel olarak, söz konusu tarama tasarımında SL, MDA azalmasında en geniş aralığı gösterirken, SPD SOD ve CAT aktivitasyonunda en geniş aralıkları göstermiştir. Bu ampirik örüntüler, diğer organizmalarda bildirilen fenolik bileşiklerin ve poliaminlerin bilinen antioksidan özellikleriyle tutarlıdır; ancak artan ek katkı maddelerinden kaynaklanan girişimin doğrulanmaması ve doğrudan ROS ölçümleri yapılmaması nedeniyle mekanistik yorum geçicidir. Ayrıca spermidinin kütlesel olarak yaklaşık %29 azot içerdiği de belirtilmelidir. En yüksek test edilen konsantrasyonda (150 mg·L⁻¹), SPD ortamına yaklaşık 40 mg N·L⁻¹ katmış olabilir. Ningbo Üniversitesi 3# formülünün sınırlı miktarda inorganic azot sağladığı göz önüne alındığında, SPD’nin besleyici (saf stres koruyucusundan ziyade) bir katkıda bulunmuş olması ihtimali dışlanamaz. Bu iki olası durumu birbirinden ayırt etmek için azot-eşdeğer kontrollere ve substrat kullanım ölçümlerine ihtiyaç vardır; bunlar söz tasarımına dahil edilmemiştir.
Genel olarak, L9(34) matrisinde SPD, çoğu büyüme, lipid, şeker ve antioksidan-enzim uç değerleri için en büyük değer aralığını gösterirken, SL MDA azalması ve DHA için en büyük aralıkları, MT ise belirli kombinasyonlarda klorofil a’ya katkıda bulunmuş ancak ölçülen diğer çoğu parametre için anlamlı olmamıştır. A2B2C3 kombinasyonu, dokuz test edilen muamele arasında birkaç uç değer için uygun sonuçlar vermiştir. Tasarım yalnızca sıfırdan farklı seviyeler içerdiğinden ve tekil katkı maddesi ile katkı maddesi içermeyen kontrollerden yoksun olduğundan, gözlemlenen sıralamalar sentetik, uyumlu ya da optimize edilmiş koruma kanıtı değil, ampirik bir karşılaştırma temsil etmektedir. PSII koruma, desaturaz düzenlemesi ya da belirli karbon yerleştirme yollarını içeren mekanizmalar hipotez olarak kalmaktadır; çünkü ilgili doğrudan ölçümler (Fv/Fm, ROS, gen ifadesi, önerilen yollardaki enzim aktiviteleri ve katkı maddesi alımı) gerçekleştirilmemiştir. Ölçekli yetiştirmeye yönelik herhangi bir pratik öneri yapılmadan önce bağımsız doğrulama deneyleri, daha geniş doz aralıkları (özellikle SPD için), zaman serisi örneklemeleri, mutlak yağ asidi verimleri, beslenme deneyleri, kalıntı güvenlik değerlendirmesi ve ölçeklendirme değerlendirmesi gerekmektedir (Figure 11).
Figure 11
Bu çalışmanın birkaç sınırlaması kabul edilmelidir. Deney, dikdörtgen matris dışında bağımsız doğrulama yapılmadan, tek bir düşük tuzluluk seviyesinde ve tek bir uç değerde (7. gün) küçük hacimli statik kültürlerde gerçekleştirilmiştir. Beslenme deneyleri, kalıntı değerlendirmeleri ya da kültür süresindeki katkı maddesi kararlılığı/parçalanması ölçümleri gerçekleştirilmemiştir. Ayrıca mutlak yağ asidi verimleri ve doğrudan karbon akışı verileri elde edilememiştir. Bu kısıtlamalar, bulguların hemen yetiştiricilik ölçeğinde canlı besin üretimine aktarılmasını sınırlamaktadır.
5 Sonuç
Düşük tuzluluk stresi, söz konusu deney koşulları altında Nitzschia closterium‘nin büyümesini, Klorofil a birikimini ve zar bütünlüğünü baskıladı. L9(3⁴) dikdörtgen dizayın kullanılarak sesamol, melatonin ve spermidin’in dokuz kombinasyonu karşılaştırıldı (Tablo 3). Test edilen matris içinde spermidin, çoğu büyüme, lipid, şeker ve antioksidan-enzim parametresi için en büyük değer aralığını gösterdi; sesamol MDA azalması ve DHA için en büyük değer aralığını gösterdi; melatonin ise bazı kombinasyonlarda Klorofil a’ya katkıda bulundu ancak diğer uç noktaların çoğu için anlamlı olmadı. A2B2C3 kombinasyonu (30 mg·L⁻¹ SL + 20 mg·L⁻¹ MT + 150 mg·L⁻¹ SPD), dokuz test edilen uygulama arasında birkaç uç nokta için uygun sonuçlar verdi. Dizaynın sıfır ve tek-bileşenli seviyelerini içermemesi nedeniyle bulgular, sinerjik ya da optimize edilmiş koruma kanıtı değil, ampirik bir sıralama temsil eder. Herhangi bir pratik öneri yapılmadan önce bağımsız doğrulama, daha geniş doz aralıkları, zaman serisi ölçümleri, mutlak yağ asidi verimleri, beslenme deneyleri ve ölçeklendirme değerlendirmesi gereklidir.
Tablo 3
| Parametre | Optimal eksojen katkı seviyesi | Anlamlılık |
|---|---|---|
| Büyüme hızı | 15 mg·L⁻¹ SL, 20 mg·L⁻¹ MT, 100 mg·L⁻¹ SPD | C* |
| Klorofil a | 15 mg·L⁻¹ SL, 40 mg·L⁻¹ MT, 150 mg·L⁻¹ SPD | B*, C* |
| Toplam lipid içeriği | 30 mg·L⁻¹ SL, 20 mg·L⁻¹ MT, 150 mg·L⁻¹ SPD | B*, C** |
| EPA içeriği | 30 mg·L⁻¹ SL, 20 mg·L⁻¹ MT, 150 mg·L⁻¹ SPD | C** |
| DHA içeriği | 60 mg·L⁻¹ SL, 10 mg·L⁻¹ MT, 150 mg·L⁻¹ SPD | A**, C* |
| PUFA içeriği | 30 mg·L⁻¹ SL, 20 mg·L⁻¹ MT, 150 mg·L⁻¹ SPD | A*, C** |
| Suda çözünür şeker içeriği | 30 mg·L⁻¹ SL, 20 mg·L⁻¹ MT, 150 mg·L⁻¹ SPD | C** |
| MDA içeriği | 30 mg·L⁻¹ SL, 10 mg·L⁻¹ MT, 100 mg·L⁻¹ SPD | A*, C* |
| SOD aktivitesi | 30 mg·L⁻¹ SL, 20 mg·L⁻¹ MT, 150 mg·L⁻¹ SPD | A*, C** |
| CAT aktivitesi | 30 mg·L⁻¹ SL, 20 mg·L⁻¹ MT, 150 mg·L⁻¹ SPD | C* |
Nitzschia closterium‘de farklı fizyolojik ve biyokimyasal parametreler için optimal eksojen katkı kombinasyonları ve anlamlılık düzeyleri.
* P < 0,05 anlamına gelir; ** P < 0,01 anlamına gelir.
Açıklamalar
Veri erişim açıklaması
Çalışmada sunulan özgün katkılar makale/ekleme malzemesinde yer almaktadır. Daha ayrıntılı bilgiler ilgili yazar yönünde talep edilebilir.
Yazar katkıları
ZF: Kavramlaştırma, Veri düzenleme, Biçimsel analiz, Görselleştirme, Yazım – taslak. RP: Kavramlaştırma, Veri düzenleme, Biçimsel analiz, Finansman edinme, Soruşturma, Kaynaklar, Görselleştirme, Yazım – inceleme ve düzenleme. JW: Soruşturma, Doğrulama, Yazım – inceleme ve düzenleme. HZ: Soruşturma, Doğrulama, Yazım – inceleme ve düzenleme. MC: Soruşturma, Doğrulama, Yazım – inceleme ve düzenleme. GZ: Soruşturma, Doğrulama, Yazım – inceleme ve düzenleme. XF: Soruşturma, Doğrulama, Yazım – inceleme ve düzenleme.
Finansman
Sorumlu yazar(lar), bu çalışmanın ve/veya yayımının finansal destek aldığını beyan etmiştir. Bu çalışma, kısmen sponsorlu Ningbo Halk Refahı Fonu (2023S076) ve Zhejiang Kıyı Biyolojik Tohum Kaynaklarının Korunması ve Kullanımı Ana Laboratuvarı Açık Fonu (J2024005) tarafından finanse edilmiştir.
Çıkar çatışması
Sorumlu yazar(lar), bu çalışmanın, olası bir çıkar çatışması olarak değerlendirilebilecek herhangi bir ticari veya finansal ilişki olmadan yürütüldüğünü beyan etmiştir.
Üretken yapay zeka beyanı
Sorumlu yazar(lar), bu el yazısında üretken yapay zekanın kullanılmadığını beyan etmiştir.
Bu makaledeki figürlerle birlikte sağlanan alternatif metinler (alt text), Frontiers tarafından yapay zeka desteğiyle oluşturulmuş olup, mümkün olduğunca yazarların incelemesini de içeren makul çabalarla doğruluğunun sağlanması için uğraş verilmiştir. Herhangi bir sorunu tespit ederseniz, lütfen bizimle iletişime geçin.
Yayıncının notu
Bu makalede ifade edilen tüm iddialar yalnızca yazarların görüşlerini yansıtır ve bağlı oldukları kuruluşların, yayıncının, editörlerin veya hakemlerin görüşlerini mutlaka yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
-
Alcázar R., Bitrián M., Bartels D., Koncz C., Altabella T., Tiburcio A. F. (2011). Kuraklık stresi karşısında Arabidopsis ve yeniden canlanan Craterostigma plantagineum bitkisinde poliamin metabolik kanalizasyonu. Plant Signaling Behav.6, 243–250. doi: 10.4161/psb.6.2.14317
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Armbrust E. V. (2009). Okyanusların dünyasında diatomların yaşamı. Nature459, 185–192. doi: 10.1038/nature08057
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Arnao M. B., Giraldo-Acosta M., Castejón-Castillejo A., Losada-Lorán M., Sánchez-Herrerías P., El Mihyaoui A. ve ark. (2023). Sentetik melatoninin olası alternatifi olarak mikroorganizmalardan, alglerden ve bitkilerden melatonin. Metabolites13, 72. doi: 10.3390/metabo13010072
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Bo Y., Wang S., Ma F., Yurevich Manyakhin A., Zhang G., Li X. ve ark. (2023). Farklı ışık yoğunluklarına adapte olmuş Isochrysis türünde fukoksantin birikimine spermidinin etkisi. Bioresour. Technol.387, 129688. doi: 10.1016/j.biortech.2023.129688
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Chadova K. (2024). Çevresel streslere alg adaptasyonu: Lipidomik araştırmalar. Int. J. Plant Biol.15, 719–732. doi: 10.3390/ijpb15030052
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Choudhury S., Panda P., Sahoo L., Panda S. K. (2013). Abiyotik streste bitkilerde reaktif oksijen türleri sinyal iletimi. Plant Signaling Behav.8, e23681. doi: 10.4161/psb.23681
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Cvjetinovic J, Bedoshvili Y. D, Davidovich N. A, Maksimov E. G, Prikhozhdenko E. S, Todorenko D. A ve ark. (2024).
İleri fotonik teknikler kullanılarak deniz diatomlarında tuzluluk tarafından tetiklenen adaptasyonların incelenmesi. Sci. Rep.14, 32007. doi: 10.1038/s41598-024-83640-9- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Ding W, Zhao P, Peng J, Zhao Y, Xu J.-W, Li ve ark. (2018).
Melatonin, yeşil mikroyosun Haematococcus pluvialisde astaksantin birikimini olası olarak biyotik olmayan strese dayanıklılıkla ilişkili mekanizmalar aracılığıyla artırır. Algal Res.33, 256–265. doi: 10.1016/j.algal.2018.05.021- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Dondini L, Bonazzi S, Serafini-Fracassini D. (2000).
Poliaminlerin poliamin açısı olan bir Dunaliella salina varyant suşunda büyüme kapasitesinin ve kloroplast transglutaminaz aktivitesinin geri kazanılması. J. Plant Physiol.157, 473–480. doi: 10.1016/S0176-1617(00)80101-7- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Fal S, Aasfar A, Rabie R, Smouni A, Arroussi H. E. (2022).
Tuz tarafından tetiklenen oksidatif stres, yeşil mikroyosun Chlamydomonas reinhardtiinin fizyolojik, biyokimyasal ve metabolomik tepkilerini değiştirir. Heliyon8, e08811. doi: 10.1016/j.heliyon.2022.e08811- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Hardeland R. (2015).
Bitkiler ve diğer fototroflarda melatonin: fonksiyon çeşitliliğine dair ilerlemeler ve açıklar. J. Exp. Bot.66, 627–646. doi: 10.1093/jxb/eru386- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
HeH.YangX.ZebA.XuJ.DongJ.LiuJ.et al. (2025).
A PP2C-SnRK2-MnSOD modülü, tuz stresi altında Ulva prolifera‘nin ROS homeostazini düzenler. Algal Res.92, 104385. doi: 10.1016/j.algal.2025.104385- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
IsmaielM. M. S.Piercey-NormoreM. D.RampitschC. (2024).
Taze suda yaşayan yeşil alg Pseudochlorella pringsheimii‘nin demir ve tıklık stresine biyokimyasal ve proteomik yanıtı. BMC Plant Biol.24, 42. doi: 10.1186/s12870-023-04688-9- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
JohnsonS. M.CumminsI.LimF. L.SlabasA. R.KnightM. R. (2015).
Yeşil kalan ve yaşlanan Sorghum bicolor hatlarını karşılaştıran transkriptomik analiz, prolin biyosentezinin yeşil kalan özelliğindeki rolünü ortaya koyar. J. Exp. Bot.66, 7061–7073. doi: 10.1093/jxb/erv405- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
KhanA.NumanM.KhanA. L.LeeI.-J.ImranM.AsafS.et al. (2020).
Melatonin: bitkilerde oksidatif stres sırasında savunma mekanizmalarını uyandırmak. Plants9, 407. doi: 10.3390/plants9040407- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
KurahashiM.NakaA.EnokidaK.MoritaY. (2023).
Dunaliella salina‘de glutasyon konsantrasyonu: büyüme fazına bağlı bir çalışma. Microbiol. Res.14, 1483–1488. doi: 10.3390/microbiolres14040101- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
LavandosqueL. L.Vischi WinckF. (2025).
Poliamin aracılı büyüme düzenlemesi mikrogallerde: redoks dengesi ve amino asit yolunun metabolik mühendisliğe entegrasyonu. SynBio3, 8. doi: 10.3390/synbio3020008- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Laxa M, Liebthal M, Telman W, Chibani K, Dietz K.-J. (2019). Bitki antioksidan sisteminin kuraklığa dayanıklılıktaki rolü. Antioxidants 8, 94. doi: 10.3390/antiox8040094
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Lin H.-Y, Liu C.-H, Kang Y.-T, Lin S.-W, Liu H.-Y, Lee C.-T. ve ark. (2024). Deniz diatomu Phaeodactylum tricornutuminde hızlı büyümeyi artırmak için spermidin sentaz bazlı poliamin biyosentez yolunun güçlendirilmesi. Biomolecules 14, 372. doi: 10.3390/biom14030372
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Ma Y, Liu Y, Wang G, Rong G, Wang H. (2026). Nanomalzeme aracılı yağ asiti biyosentezinin Nitzschia closteriuminde farklı şekilde düzenlenmesinin moleküler mekanizmaları. Chem. Eng. J. Adv. 26, 101189. doi: 10.1016/j.ceja.2026.101189
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Majdalawieh A. F, Mansour Z. R. (2019). Susam tohumlarının (Sesamum indicum) başlıca lignanlarından biri olan sesamol: kanser önleyici özellikleri ve etki mekanizmaları. Eur. J. Pharmacol. 855, 75–89. doi: 10.1016/j.ejphar.2019.05.008
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Morra S, Lanzilli M, Grazioso A, Cupo A, Landi S, Nuzzo G. ve ark. (2023). Deniz diatomu Cyclotella crypticainde heterotrofi altında lipid biyosentezinin potansiyeli. ACS Sustain. Chem. Eng. 11, 17607–17615. doi: 10.1021/acssuschemeng.3c02542
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Negi, S., Daughton, B., Carr, C. K., Klein, B., Davis, R., Banerjee, S. ve diğerleri (2024). Bitki büyümesini destekleyen moleküllerin DISCOVR üretim suşlarında biyokütle verimliliğini artırma etkisi. Algal Res. 77, 103364. doi: 10.1016/j.algal.2023.103364
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Pathak, N., Rai, A. K., Kumari, R., Thapa, A., Bhat, K. V. (2014). Susam: Gıda değerinin artırılması için büyük potansiyele sahip, yeterince incelenmemiş bir yağ tohumu. Agric. Sci. 5, 519–529. doi: 10.4236/as.2014.56054
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Posmyk, M. M., Janas, K. M. (2009). Bitkilerde melatonin. Acta Physiol. Plant 31, 1–11. doi: 10.1007/s11738-008-0213-z
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Rice-Evans, C. A., Miller, N. J., Paganga, G. (1996). Flavonoidlerin ve fenolik asitlerin yapı-antioksidan aktivite ilişkileri. Free Radical Biol. Med. 20, 933–956. doi: 10.1016/0891-5849(95)02227-9
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Rico, M., Santiago-Díaz, P., Rivero, A., Santana-Casiano, J. M. (2024). Bakır stresi altında yetiştirilen Phaeodactylum tricornutum diatomu tarafından salgılanan polifenollerin ve karbonhidratların karakterizasyonu. Sci. Rep. 14, 9367. doi: 10.1038/s41598-024-60252-x
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Roopin, M., Yacobi, Y. Z., Levy, O. (2013). Melatoninın kültüre edilen symbiodinium’ün fotosentetik performansı üzerindeki oluşumu, günlük örüntüleri ve etkisi. J. Pineal Res. 55, 89–100. doi: 10.1111/jpi.12046
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Selvam, J., Mal, J., Singh, S., Yadav, A., Giri, B. S., Pandey, A. ve diğerleri (2024). Değerli bileşikler için sürdürülebilir biyofabrikler olarak deniz mikroyeşillerinin biyoprospektif analizi. Algal Res.79, 103444. doi: 10.1016/j.algal.2024.103444
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Shahidi, F., Ambigaipalan, P. (2015). Besinlerde, içeceklerde ve baharatlarda fenolikler ve polifenolikler: Antioksidan aktivite ve sağlık etkileri – bir derleme. J. Funct. Foods18, 820–897. doi: 10.1016/j.jff.2015.06.018
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Stirk, W. A., van Staden, J. (2020). Biyoteknolojik uygulamalar için mikroyeşil verimliliğini artırmada fitohormonların strateji olarak potansiyeli. Biotechnol. Adv.44, 107612. doi: 10.1016/j.biotechadv.2020.107612
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Su, D., Li, X., Liu, S., Bu, Y. (2022). Tuz stresinin mikroyeşillerin fotosentezi ve lipidleri üzerindeki etkilerine dair araştırma ilerlemeleri. Mol. Soil Biol.13, 1–6. doi: 10.5376/msb.2022.13.0001
- CrossRef
- Google Scholar
- View reference in article
-
Teh, K. Y., Loh, S. H., Aziz, A., Takahashi, K., Effendy, A. W. M., Cha, T. S. (2021). Chlorella vulgaris‘de tuzluluk dalgalanmalarını azaltmada farklı yağ asidi türlerinin rolü ve lipid birikim desenleri. Sci. Rep.11, 438. doi: 10.1038/s41598-020-79950-3
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Tonon, T., Sayanova, O., Michaelson, L. V., Qing, R., Harvey, D., Larson, T. R. ve diğerleri (2005). Thalassiosira pseudonana mikroyeşilinden yağ asidi desaturazları. FEBS J.272, 3401–3412. doi: 10.1111/j.1742-4658.2005.04755.x
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Valdés-SantiagoL.Ruiz-HerreraJ. (2014).
Mantarlarda stres ve poliamin metabolizması. Front. Chem.1. doi: 10.3389/fchem.2013.00042- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
WangS.ZhouX.WuS.ZhaoM.HuZ. (2023).
Transkriptomik ve metabolomik analizler, mixotrofik Cylindrotheca türünün gliserol kullanımı ve biyokütle artışını düzenleme mekanizmasını ortaya koydu. Biotechnol. Biofuels Bioprod.16, 84. doi: 10.1186/s13068-023-02338-8- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
YinZ.LuJ.MengS.LiuY.MostafaI.QiM.et al. (2019).
Ekzojen melatonin, fotosentez elektron akısının ve askorbat-glutatyon döngüsünün düzenlenmesiyle domatesın tuz toleransını artırır. J. Plant Interact.14, 453–463. doi: 10.1080/17429145.2019.1645895- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
YuX.ChenL.ZhangW. (2015).
Mikroalg büyümesini ve yüksek değerli biyoproduct birikimini artıran kimyasallar. Front. Microbiol.6. doi: 10.3389/fmicb.2015.00056- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
ZhangW.HaoQ.ZhuJ.DengY.XiM.CaiY.et al. (2023).
Nano planktonik diatom, değişen besin konsantrasyonlarına yanıt olarak lipid içeriğini ve bileşimini düzenleyerek batma hızını hızla değiştirir. Front. Mar. Sci.10. doi: 10.3389/fmars.2023.1255915- CrossRef
- Google Scholar
-
ZhangX.ChengJ.LuH.ChuF.XuJ.WangX.et al. (2019).
Spermidin, fotosentez büyüme hızını iyileştirmek için Chlorella‘nin yüksek CO2 ve yoğun ışık seviyelerine karşı direncini artırır. RSC Adv.9, 26495–26502. doi: 10.1039/C9RA05152J- Pubmed Özeti
- CrossRef
- Google Scholar
-
Zhao, J., Kong, N., Sun, S., Hao, W., Wang, B., Wang, L., ve diğerleri (2026). Fosfor ve silikon açlığının diatom Nitzschia closterium f. minutissima’da yağ asidi dengesi bozması ve istiridye larvalarında iltihabi yanıt tetiklemesi. Water Biol. Secur. 5, 100515. doi: 10.1016/j.watbs.2025.100515
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Zhao, Y., Song, X., Zhao, P., Li, T., Xu, J.-W., Yu, X. (2021). Melatoninin mikroalg Monoraphidium sp. QLY-1’de lipid birikimi, otofaji ve tuzluluk kaynaklı oksidatif strestin düzenlenmesindeki rolü. Algal Res. 54, 102196. doi: 10.1016/j.algal.2021.102196
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Zhao, Y., Wang, H.-P., Han, B., Yu, X. (2019). Mikroalglerin lipid ve yüksek değerli yan ürün üretimi için biyotik olmayan strestlerin fitohormonlarla eşleştirilmesi: Bir derleme. Bioresour. Technol. 274, 549–556. doi: 10.1016/j.biortech.2018.12.030
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Zhong, J., Guo, Y., Liang, Z., Huang, Q., Lu, H., Pan, J., ve diğerleri (2021). Bir deniz diatomunun okyanus asifleşmesine ve ısınmasına uyumlanması, sınırlamaları ve ödünleşimleri ortaya koyuyor. Sci. Total Environ. 771, 145167. doi: 10.1016/j.scitotenv.2021.145167
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Zhu, L., Gao, H., Li, L., Zhang, Y., Zhao, Y., Yu, X. (2022). Melatonin indüksiyonuyla yeni alg Acutodesmus sp.’den lutein üretiminin artırılması. Bioresour. Technol. 362, 127818. doi: 10.1016/j.biortech.2022.127818
- Pubmed Abstract
- CrossRef
- Google Scholar
Özet
Anahtar Kelimeler
oksidatif stres fizyolojisi, exojen katkılar, yağ asidi profili, düşük tuzluluk stresi, Nitzschia closterium, antioksidan savunma
Başvuru
Fei Z, Peng R, Wang J, Zhou H, Chen M, Zeng G ve Feng X (2026) Düşük tuzluluk stresinde Nitzschia closterium‘nin büyümesi, biyokimyasal bileşimi ve antioksidan yanıtları üzerinde sesameol, melatonin ve spermidin kombinasyonlarının ampirik taraması. Front. Mar. Sci. 13:2013473. doi: 10.3389/fmars.2026.2013473
Alındı
29 Eylül 2026
Düzeltildi
15 Ekim 2026
Kabul edildi
19 Ekim 2026
Yayınlandı
11 Kasım 2026
13 – 2026
Amit Ranjan, Tamil Nadu Fisheries University, Hindistan
Mohammad Oves, King Abdulaziz University, Suudi Arabistan
Iffat Jahan, Central Institute of Fisheries Education (ICAR), Hindistan
© 2026 Fei, Peng, Wang, Zhou, Chen, Zeng ve Feng.
Bu açık erişimli makale, Creative Commons Atıf Lisansı (CC BY) koşulları altında dağıtılmaktadır. Orijinal yazar(lar)ın ve telif hakkı sahib(lar)ının belirtilmesi ve kabul edilen akademik uygulamalara uygun olarak bu dergideki orijinal yayının atıf edilmesi şartıyla, diğer forumlarda kullanım, dağıtım veya çoğaltma izinlidir. Bu koşullara uymayan herhangi bir kullanım, dağıtım veya çoğaltma izinlidir.
*İletişim: Ruibing Peng, pengruibing@nbu.edu.cn
Bu makalede ifade edilen tüm iddialar yalnızca yazarlara aittir ve onların bağlı oldukları kuruluşların, ya da yayıncının, editörlerin ve değerlendirenlerin görüşlerini kesin olarak temsil etmeyebilir. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.