Özet
\n
Kaplan köpekbalıkları (Galeocerdo cuvier), tropikal ve subtropikal deniz ekosistemlerinde yerleşik ekolojik rolleri olan en üst düzey avcılardır; ancak doğu Atlantik’teki mekânsal ekolojileri neredeyse tamamen çözümsüz kalmıştır. Bu çalışmada, elasmobranh koruma için öncelikli bir alan olan Cabo Verde takımadalarındaki Boa Vista Adası çevresinde kaplan köpekbalıklarının habitat kullanımına ilişkin ilk sistematik ve kapsamlı karakterizasyonu sunuyoruz. Ada, Atlantik’in en büyük kaplumbağa yuva topluluklarından birine ev sahipliği yapmaktadır. Adadaki kaplan köpekbalıkları habitat kullanımını karakterize etmek amacıyla 2025’te dört araştırma dönemi boyunca gerçekleştirilen 526 stereo-ylemli uzaktan su altı video (stereo-BRUV) yerleştirmesi, 40 yerel ekolojik bilgi (LEK) görüşmesiyle birleştirilmiştir. Kaplan köpekbalıkları yerleştirmelerin %5,5’inde (29 tespit) gözlemlenmiş ve tespitlerin %86’sı 22,80° B enleminin doğusunda gerçekleşmiştir. Tespit sıklığı, kaplumbağa yuva sezonunun başlangıcına denk gelen Haziran ayında %11,6 ile zirve yaparken, diğer araştırma dönemlerinde %1,9–2,8 arasında kalmıştır. Tespit olasılığı deniz yüzeyi sıcaklığı ile negatif, tuzluluk ile pozitif ilişki göstermiştir; ancak her iki kovaryable de neredeyse tamamen örnekleme ayları arasında değiştiğinden, bu ilişkilerin zamansal değişimden ayırt edilmesi mümkün olmamıştır. Ölçülen bireylerin çatal uzunluğu 1.487 ila 4.502 mm arasında değişmiş ve 26 bireyden 12’si (%46) genç boyutlardaydı. Bu durum, farklı boyut sınıflarının kıyı şelalesini kullandığını ve bölgedeki erken yaşam habitat kullanımının gelecekteki araştırmalar için öncelikli bir konu olduğunu göstermektedir. LEK, daha geniş bir algılanan yayılma alanını ortaya koymuş; kıyı araştırma alanı içindeki Baía de Sal Rei ve bunun ötesindeki açık denizdeki João Valente Bankı’nı —her ikisi de IUCN tarafından Önemli Köpekbalığı ve Akrepbalığı Alanları olarak belirlenmiş— hedefli gelecekteki araştırmalar için öncelikli alanlar olarak işaretlemiştir. Bu bulgular, doğu Atlantik’teki kaplan köpekbalıklarına ilişkin kanıt tabanını basit bir varlık teyidinden, tekrarlayan ve mevsimsel olarak yapılandırılmış habitat kullanımının ilk sistematik tanımına taşıyarak, veri açısından fakir ancak ekolojik olarak önemli bir bölgede bu en üst düzey avcının koruma planlaması için ilk ampirik temeli oluşturmaktadır.
\n
1 Giriş
\n
Deniz megafaunası, büyük ölçüde deniz besin ağlarının üst trofik seviyelerini işgal eder ve ekosistem işlevini ve sağlığını yapılandırmada merkezi bir rol oynar (Burkholder ve diğerleri, 2013; Rosa ve diğerleri, 2014; Ferreira ve diğerleri, 2017). Bunlar arasında, kıkırdaklı balıklar —köpekbalıkları, akrepbalıkları ve chimaeralar (Chondrichthyes sınıfı)— yavaş büyüme, geç olgunlaşma, düşük doğurganlık ve uzun yaşam süresiyle karakterize edilen K-seçilmiş yaşam öyküsü stratejileri nedeniyle popülasyon düşüşüne orantısız bir şekilde maruz kalırlar (Myers ve Worm, 2005; Rosa ve diğerleri, 2017). Küresel olarak köpekbalıkları ve akrepbalıkları, en çok tehdit altındaki ikinci omurgalı soyudur; 1950’den bu yana göreceli bollukları neredeyse üçte iki oranında azalmış ve türlerin üçte birinden fazlası şu anda nesli tükenme tehlikesiyle karşı karşıyadır (Dulvy ve diğerleri, 2021, ). Bu nesli tükenme krizi temel olarak aşırı avlanmadan kaynaklanmakta ve habitat bozulması ile iklim değişikliği ile daha da ağırlaşmaktadır (Dulvy ve diğerleri, 2014, ; Santos ve diğerleri, 2024).
\n
Neredeyse tehdit altındaki kaplan köpekbalığı, Galeocerdo cuvier, deniz koruma alanındaki zorlukları örneklendirir. En büyük carcharhinidlerden biri ve ılıman ile tropikal okyanuslarda küresel olarak yaygın bir en üst düzey avcı olarak (Compagno, 1984; Heithaus ve diğerleri, 2002; Meyer ve diğerleri, 2014), geniş beslenme alışkanlıkları, yüksek hareketliliği ve hem kıyı hem de pelajik ortamları kullanması, habitatları birbirine bağlamada ve av popülasyonlarını düzenlemede orantısız bir ekolojik rol üstlenmesini sağlar (Lowe ve diğerleri, 1996; Heithaus ve diğerleri, 2012; Burkholder ve diğerleri, 2013; Ferreira ve diğerleri, 2017). Ekolojik önemine rağmen, kaplan köpekbalığının mekânsal ekolojisi hakkındaki bilgiler coğrafi olarak dengesizdir (Ek Şekil S1); araştırma çabası orantısız bir şekilde batı Kuzey Atlantik ve Hint-Pasifik’in bazı bölgelerinde yoğunlaşmış olup, doğu Atlantik’in geniş alanları incelenmemiştir. Bu çalışmadan önce, merkezi doğu Atlantik’te G. cuvier‘in mekânsal ekolojisi hakkında tür özelinde bilgiler çok sınırlıydı ve Seymour ve diğerleri (2026) tarafından yapılan yakın tarihli bir çalışma ilk bulguları sunmuştu.
\n
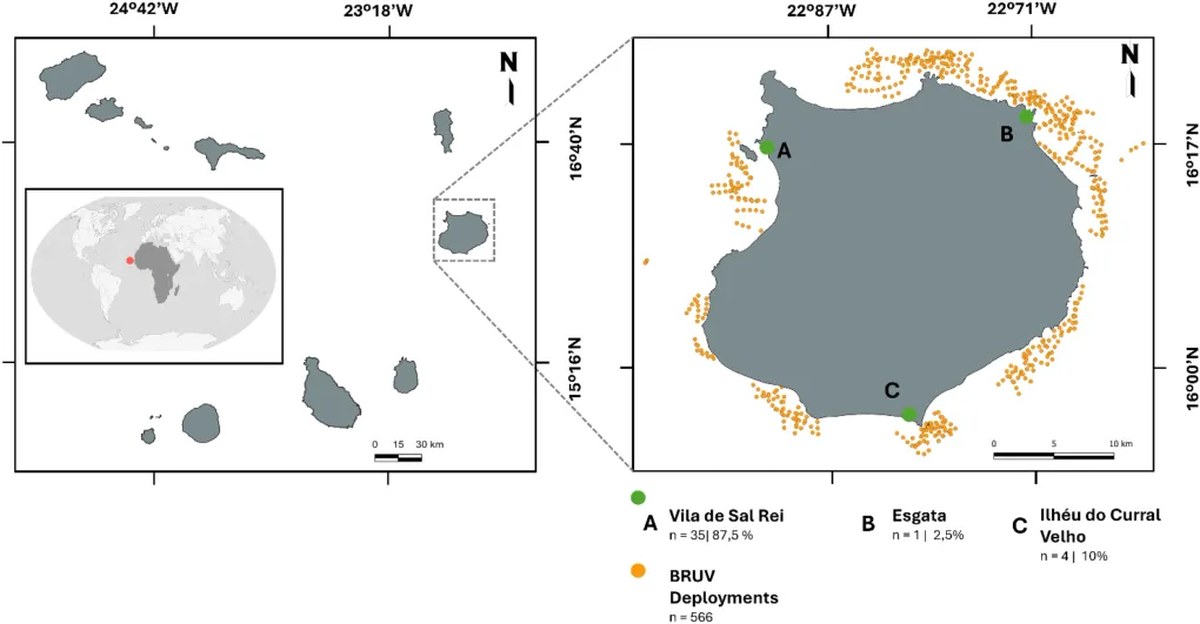
Macaronesia bölgesi içinde Cabo Verde, tehdit altındaki köpekbalığı türlerinin en yüksek oranına (%66) ve antropojenik baskıların en büyük çeşitliliğine sahipti (Varela ve diğerleri, 2025a). Batı Afrika kıyısından yaklaşık 500 km uzaklıkta, doğu tropikal Atlantik’te (Şekil 1) yer alan bu takımadalar, karmaşık okyanusografya, dik batimetri ve güçlü çevresel gradyanlarla karakterize edilir. Özellikle Boa Vista Adası, dünya çapında en büyük kaplumbağa yuva popülasyonlarından birine (Caretta caretta) ev sahipliği yapar (Marco ve diğerleri, 2012) ve Kuzey Atlantik kambur balinaları için mevsimsel bir üreme habitatı görevi görür (Wenzel ve diğerleri, 2020). Ayrıca bu ada, Atlantik Afrika’daki ilk potansiyel çok türlü köpekbalığı ana yuvası alanı olarak da bilinir (Rosa ve diğerleri, 2023); özellikle süt köpekbalığı (Rhizoprionodon acutus), yelpaze başlı köpekbalığı (Sphyrna lewini), siyah uçlu köpekbalığı (Carcharhinus limbatus), Atlantik tilki köpekbalığı (Paragaleus pectoralis) ve hemşire köpekbalığı (Ginglymostoma cirratum) için. Boa Vista Adası’nın deniz megafaunası için bir sıcak nokta olarak bilinmesine rağmen, büyük köpekbalıklarının mekânsal dinamikleri hâlâ iyi anlaşılamamıştır. Cabo Verde’nin doğu adaları boyunca yapılan önceki BRUV araştırmalarında kaplan köpekbalıkları yalnızca seyrek olarak tespit edilmiştir; az sayıdaki tespit Sal Adası’ndan (n = 3) gelmiş, Boa Vista çevresinde hiç tespit edilmemiştir (Seymour ve diğerleri, 2024). Daha sonraki uydu takibi, Boa Vista da dahil olmak üzere daha geniş doğu takımadalarında kaplan köpekbalıklarının varlığını doğrulamış olsa da, Boa Vista kıyı şelalesindeki varlıklarının tutarlılığını veya varlıklarını etkileyen spesifik yerel koşulları aydınlatamamıştır (Seymour ve diğerleri, 2026).
\n
Kaplan köpekbalıkları canlı doğum yapar; dişiler yaklaşık 15–16 aylık bir gebelik süresinin ardından canlı yavrular doğurur (Ebert ve diğerleri, 2021). Yavrular yaklaşık 510–760 mm toplam uzunlukta (TL) doğar ve batımları 10 ila 82 yavru arasında değişir; bu, herhangi bir köpekbalığı türü arasında en büyüklerindendir (Ebert ve diğerleri, 2021). Olgunluk boyutu cinsiyetlere ve popülasyonlara göre değişir; batı Kuzey Atlantik’ten elde edilen son tahminler, erkekler için 2.589 mm çatal uzunluğunda (FL) ve dişiler için 2.614 mm FL’de medyan olgunluk boyutlarını göstermektedir (Natanson ve diğerleri, 2023). Batı Kuzey Atlantik’te, Florida ile Georgia arasındaki kıta şelalesi, genç bireyler ve potansiyel doğum için önemli bir alan olarak ortaya çıkmıştır (Driggers ve diğerleri, 2008; Natanson ve diğerleri, 2023). Ayrıca, Bahamalar’daki Bimini de bir doğum alanı olarak tanımlanmıştır (Smukall ve diğerleri, 2022). Kaplan köpekbalıklarının erken yaşam habitat kullanımı, sığ, neritik ortamlarla güçlü bir şekilde ilişkilidir; ardından ontogenetik olarak daha derin, daha okyanusik habitatlara doğru genişleme gösterirler (Afonso ve Hazin, 2015). Ayrı ana yuva habitatları kullanan kıyı köpekbalığı türlerinin aksine (sensu Heupel ve diğerleri, 2007), kaplan köpekbalıkları batı Kuzey Atlantik’in bazı bölgelerinde daha geniş, daha dağınık doğum ve gençlik kullanım alanları kullanıyor gibi görünmektedir (Driggers ve diğerleri, 2008; Lea ve diğerleri, 2015; Lourie ve diğerleri, 2025). Batı Atlantik ve Hint-Pasifik’te kaplan köpekbalıklarının mekânsal ekolojisi üzerine artan araştırma birikimine rağmen, türün en erken yaşam evreleri hakkındaki bilgiler büyük ölçüde birkaç iyi incelenmiş yerle sınırlıdır. Bu kritik boşluk, düzenli olarak birden fazla ekolojik ve jeopolitik sınırı aşan bir tür için mekânsal olarak açık koruma stratejilerinin geliştirilmesini engellemektedir (Kohler ve diğerleri, 1998).
\n
Yemli uzaktan su altı video sistemleri (BRUV’ler), elasmobrançların varlığını, davranışlarını ve göreceli bolluklarını fiziksel yakalama olmaksızın ölçmek için non-invaziv ve tekrarlanabilir bir yaklaşım sunar. Bu sistemler, istatistiksel güç ve tutarlılık açısından yemsiz sistemlere kıyasla kanıtlanmış avantajlara (Bernard ve Götz, 2012; Sherman ve diğerleri, 2020) ve çeşitli habitatlarda çevresel kovaryantlarla birlikte hassas mekansal referans entegrasyonu esnekliğine (Whitmarsh ve diğerleri, 2017; Przeslawski ve Foster, 2018) sahiptir. Ana kısıtlamaları —yem bulutu dinamiklerine, görüş alanına, günün saatine ve türlere özgü tepkilere bağlı koşullu tespit— destekledikleri çıkarımları geçersiz kılmak yerine tanımlar; bu da modellemeye uygun, mekansal ve zamansal olarak sınırlı tespit verileri sağlar. Yerel ekolojik bilgi (LEK) tamamlayıcı bir bakış açısı sunar: balıkçılar ve okyanus kullanıcıları, tekrarlanan doğrudan deneyimler yoluyla ince ölçekli gözlemsel bilgi biriktirirler; bu da veri kısıtlı sistemlerde sistematik araştırmaların ulaşamayacağı zaman ve mekan kapsamını genişletir (Hamilton ve diğerleri, 2012; Pissarra ve diğerleri, 2024; Varela ve diğerleri, 2025b). LEK, doğası gereği bireysel algı, hafıza ve sosyo-ekonomik bağlamdan etkilenir ve yalnız bir kaynak olarak ele alınmak yerine açık kalite kontrolleriyle analiz edildiğinde ve ampirik verilerle entegre edildiğinde en güvenilir halini alır (Pissarra ve diğerleri, 2024). BRUV’ler ve LEK birlikte, temel verilerin genellikle bulunmadığı okyanusal ada sistemlerinin ekolojik ve lojistik kısıtlamalarıyla uyumludur.
\n
Bu çalışma, 2025 yılında Boa Vista Adası çevresinde birden fazla mevsimsel örnekleme dönemi boyunca gerçekleştirilen en büyük BRUV veri setini (> 500 yerleştirme; n = 526) LEK ile birleştirerek bu tamamlayıcı yaklaşımları entegre eder. Spesifik olarak bu çalışma şu soruları ele alır: (i) Boa Vista Adası çevresinde stereo-BRUV’lerde ve yerel balıkçılar tarafından bildirilen kaplan köpekbalıkları nerede tespit edildi, (ii) tespitler araştırma dönemleri arasında nasıl değişti ve (iii) hangi çevresel ve habitat değişkenleri tespitle ilişkilidir. Bu soruları yanıtlamak için kaplan köpekbalığı tespit olasılığı; deniz yüzeyi sıcaklığı, klorofil-a, tuzluluk, çözünmüş oksijen, akıntı hızı, derinlik, habitat türü ve potansiyel av olarak deniz kaplumbağalarının varlığı da dahil olmak üzere çevresel ve habitat değişkenlerinin bir fonksiyonu olarak modellenir. Paralel olarak, tespit edilen köpekbalıklarının boyut yapısını tanımlamak için vücut boyutu çevresel gradyanlar arasında incelenir. Bu yaklaşımlar birlikte, kaplan köpekbalığının habitat kullanımının mekansal olarak kapsamlı bir karakterizasyonunu sağlar ve doğu Atlantik’teki ekolojilerinin anlaşılmasındaki büyük bir boşluğu doldurur.
\n
2 Materyaller ve Yöntemler
\n
2.1 Çalışma alanı ve araştırma tasarımı
\n
Bu çalışma, doğu orta Atlantik’teki Boa Vista Adası (16°5′42.04″K, 22°48′28.21″B; Şekil 1) çevresinde yürütülmüştür. Kaplan köpekbalığı tespit örüntülerini, habitat kullanımını ve mevsimler arası vücut boyutu yapısını karakterize etmek için, 2025 yılında örtüşen araştırma dönemlerinde paralel olarak gerçekleştirilen iki tamamlayıcı araştırma yaklaşımı birleştirilmiştir: stereo-yemli uzaktan su altı video sistemleri (stereo-BRUV’ler) ve yarı yapılandırılmış yerel ekolojik bilgi (LEK) görüşmeleri.
\n
2.2 Stereo-BRUV örnekleme ve video işleme
\n
Ada çevresinde toplam 566 stereo-BRUV yerleştirmesi gerçekleştirilmiş ve yaklaşık 660 saatlik video görüntüsü elde edilmiştir. Kayıt süresi yerleştirmeler arasında değişmiş olup, bazı videolar yaklaşık 60 dakika sürerken diğerleri 70–80 dakika veya daha uzun sürmüştür. Ters dönmüş yerleştirmeler, düşük görünürlüğe sahip kayıtlar ve eksik kovaryant bilgisine sahip kayıtlar hariç tutulduktan sonra, tanımlayıcı analizler için 526 yerleştirme korunmuştur. Bunlardan 13’ünün habitat sınıflandırması belirsiz (“Bilinmiyor”) olduğundan tespit modellemesinden çıkarılmış ve geriye 513 yerleştirme ile 28 kaplan köpekbalığı tespiti kalmıştır.
\n
Örnekleme yedi geniş sektörü kapsamıştır: Derrubado, Esgata, Porto Ferreira, Ervatão, Ilhéu do Curral Velho, Santa Mónica ve Baía de Sal Rei (Şekil 1). Yer seçimi, resmi veri toplama öncesinde, balıkçıların ön bilgisi ile ada çevresindeki daha geniş mekansal kapsamı birleştirmiştir. Bu nedenle, bu üç alan bilinçli olarak araştırmada temsil edilmiş, aynı zamanda adanın dört çeyreğini ve karşıt habitatları, dalga maruziyeti koşullarını ve hidrodinamik yapıları kapsamak için örnekleme dört ek sektöre genişletilmiştir. Ön balıkçı bilgisinin bu üç geniş alanın dahil edilmesine rehberlik ettiğini, ancak bireysel yerleştirme koordinatlarını belirlemediğini belirtmek önemlidir.
\n
Yerleştirmeler 2 ila 37 m derinlik arasında değişmiş ve mümkün olduğunda, Global FinPrint BRUV protokolü önerilerine (Global FinPrint, 2024) uygun olarak aynı bireyin tekrar tekrar kaydedilme olasılığını azaltmak için BRUV’ler arasında en az yaklaşık 500 m’lik bir mesafe bırakılmıştır. Örnekleme dört araştırma döneminde gerçekleştirilmiştir: Mart-Nisan, Haziran, Ağustos ve Ekim 2025. Bu dönemler dört karşıt mevsimsel pencereyi temsil etmek üzere seçilmiştir: kurak mevsim (Şubat–Mart), kurak mevsimden yağışlı mevsime geçiş (Mayıs–Haziran), yağışlı mevsim (Temmuz–Ağustos) ve yağışlı mevsimden kurak mevsime geçiş (Ekim) (Rosa ve diğerleri, 2023). Hava durumu, deniz durumu ve operasyonel kısıtlamalar nedeniyle araştırma çabası dönemler arasında değişmiştir.
\n
Araştırmalar için beş stereo-BRUV ünitesi inşa edilmiştir. Her bir ünite, yaklaşık 8° açıyla içe dönük ve yaklaşık 40 cm aralıklı iki GoPro Hero 11 kamerasıyla donatılmış bir demir çerçeveden oluşmuştur. Kamera sisteminin önüne yerleştirilen yemli bir direk, her yerleştirmede yaklaşık 1 kg dondurulmuş sarıkanatlı ton balığı (Thunnus albacares) taşımıştır. Yem, her yerleştirme gününün sonunda atılmıştır. İki ila üç kişiden oluşan bir saha ekibi, BRUV’leri 6,5 m’lik geleneksel bir balıkçı motorlu teknesinden yerleştirmiştir. Toplam kayıt süresi yerleştirmeler arasında değişse de, Global FinPrint protokolüne (MacNeil ve diğerleri, 2020) ve resifle ilişkili elasmobrançlar için önerilere (Currey-Randall ve diğerleri, 2020) uygun olarak her yerleştirme için standart 60 dakikalık bir gözlem penceresi analiz edilmiştir. Deniz durumu, hava durumu veya yerel topografi planlanan yerleştirmeleri engellediğinde örnekleme rotaları ayarlanmıştır.
\n
BRUV görüntüleri, elasmobrançları tanımlamak ve tek bir video karesinde görülebilen belirli bir türden maksimum birey sayısını tanımlayan MaxN’i kaydetmek için SharkTrack (Varini ve diğerleri, 2026) kullanılarak işlenmiştir. MaxN daha sonra ikili bir tespit değişkenine dönüştürülmüştür, çünkü herhangi bir pozitif tespitte birden fazla birey kaydedilmemiştir (Garzon ve diğerleri, 2021; Lester ve diğerleri, 2022). Kaplan köpekbalıkları daha sonra stereo-video görüntülerinden EventMeasure (http://www.seagis.com.au) kullanılarak ölçülmüştür. Kalibrasyon, seaGIS’in kalibrasyon yazılımı olan CAL kullanılarak gerçekleştirilmiştir. Neredeyse her sistemde 1:10000’lik önerilen bir göreli hassasiyet elde edilmiş ve bu, bilinen sabit mesafeli (327.8, 588.9 ve 916.6 mm) bir çubuk 2.20 m mesafeden ölçülerek doğrulanmıştır. Beş sistem genelinde ortalama mutlak hata 8.0 mm (%1.4) iken, ortalama işaretli hata +6.8 mm (SD 10.5 mm) olmuştur. Sistem başına ortalama mutlak hata 0.9 mm (%0.2) ile 22.9 mm (%4.3) arasında değişmiş ve bireysel hatalar −4.6 ila +34.4 mm (−%0.7 ila +%7.4) arasında olmuştur. Güvenilir boyut tahminlerine sahip bireylere, bölüm 2.6.2’de açıklandığı gibi tanımlayıcı boyut sınıfları atanmıştır.
\n
2.3 Yerel ekolojik bilgi araştırması
\n
17 Mart ile 12 Ağustos 2025 arasında Boa Vista Adası’ndaki üç ana balıkçı limanında toplam 40 yarı yapılandırılmış görüşme gerçekleştirilmiştir: adanın ana balıkçılık merkezi olan Vila de Sal Rei; kuzeydeki balıkçı limanı Esgata; ve güneydeki bir kıyı balıkçılık alanı olan Ilhéu do Curral Velho. Burada analiz edilen resmi LEK görüşmeleri, BRUV örnekleme ile aynı saha programı sırasında yürütülmüş ve BRUV yerleştirme yerlerini veya zamanlamasını seçmek ya da değiştirmek için kullanılmamıştır.
\n
Tüm katılımcılar erkekti. Görüşme yapılanların ortalama 20.0 ± 15.2 yıllık balıkçılık deneyimi vardı (aralık: 1–67 yıl), bu da uzmanlık düzeylerinde önemli bir farklılık olduğunu göstermektedir. Mesleki profiller değişkenlik göstermiştir. 40 katılımcıdan 18’i el hattı, trolling veya tuzak kullanan geleneksel balıkçılar, 13’ü günde birden fazla dalış yapan mızraklı balıkçılar, 2’si rekreasyonel balıkçılar ve 11’i profesyonel dalış veya turizmle ilgili faaliyetlerde bulunuyordu. Toplamda 10 katılımcı birden fazla meslek bildirdi.
\n
Yazarlar, Sphyrna Derneği’nden yerel bir üyenin sağladığı Crioulo çevirisi desteğiyle, Portekizce veya Kabo Verde Kreolü (Crioulo) dillerinde görüşmeler gerçekleştirdiler.
\n
Görüşme kılavuzu beş ana temayı kapsıyordu: balıkçılık uygulamaları (balıkçılık deneyimi, sıklık, süre, yöntemler ve balıkçılık alanları); kaplan köpekbalığı bilgisi (türü tanıma, yakın ve geçmişteki gözlemler ile algılanan mevsimsellik); kaplan köpekbalığının daha yoğun bulunabileceği düşünülen alanlar; kaplan köpekbalıklarının doğrudan gözlemlendiği veya dolaylı yoldan bildirildiği yerler; ve katılımcıların ana meslekleri de dahil olmak üzere sosyo-demografik bilgileri. LEK yanıtları Ek Tablo S1‘de özetlenmiştir. Türle ilgili yerel ekolojik bilginin güvenilirliğini değerlendirmek amacıyla katılımcılardan, Boa Vista Adası’nda en sık görülen on diğer köpekbalığı türünü içeren resimli bir tanımlama kartından kaplan köpekbalığını (Galeocerdo cuvier) tanımlamaları istendi (Rosa ve diğerleri, 2023; Seymour ve diğerleri, 2024; Varela ve diğerleri, 2025b). Bu türler arasında yelpaze başlı çekiç başlı köpekbalığı (Sphyrna lewini), pürüzsüz başlı köpekbalığı (Mustelus mustelus), boğa köpekbalığı (Carcharhinus leucas), mavi köpekbalığı (Prionace glauca), kısa yüzgeçli mako köpekbalığı (Isurus oxyrinchus), siyah uçlu köpekbalığı (Carcharhinus limbatus), hemşire köpekbalığı (Ginglymostoma cirratum), limon köpekbalığı (Negaprion brevirostris), okyanus beyaz uçlu köpekbalığı (Carcharhinus longimanus) ve çarpıcı köpekbalığı (Alopias sp.) bulunuyordu. Ardından katılımcılardan kişisel olarak kaplan köpekbalığı gözlemledikleri yerleri ve diğer balıkçılar veya okyanus kullanıcıları tarafından kaplan köpekbalığı varlığının bildirildiği yerleri belirtmeleri istendi. Bu kayıtlar, görgü tanığı ve dolaylı bildirimler olarak ayrı tutuldu.
\n
Her görüşmeden önce katılımcılara katılımın gönüllü ve anonim olduğu, herhangi bir soruyu yanıtlamak zorunda olmadıkları ve doğru ya da yanlış cevap olmadığı açıklandı. Bu yaklaşım, algılanan otorite yanlılığını azaltmak ve açık katılımı teşvik etmek için kullanıldı. Katılım ve anonimleştirilmiş yanıtların kullanımı için sözlü onay alındı. Bireysel görüşme yanıtları Ek Tablo S1‘de özetlenmiştir.
\n
2.4 Çevresel ve habitat kovaryatları
\n
Her bir BRUV yerleşimi için çevresel kovaryatlar, koordinatları ve örnekleme ayı kullanılarak çıkarıldı. Aylık deniz yüzeyi sıcaklığı (SST, °C), tuzluluk (pratik tuzluluk ölçeği, boyutsuz) ve yüzey akıntı hızı bileşenleri (m s⁻¹), Copernicus Marine Küresel Okyanus Fizik Yeniden Analizi ürününden (Copernicus Marine Service, 2025a) alınırken; aylık klorofil-a (mg m⁻³) ve çözünmüş oksijen (mmol m⁻³) değerleri Copernicus Marine Küresel Okyanus Biyojeokimya Geriye Dönük Tahmin ürününden (Copernicus Marine Service, 2025b) elde edildi. Bu kovaryatların zamansal çözünürlüğünün sonuçları etkileyip etkilemediğini değerlendirmek için aynı değişkenler, her bir yerleşimin tarihine göre günlük Copernicus Marine küresel analiz ve tahmin ürünlerinden de (yüzey katmanı; fizik 1/12° ve biyojeokimya 1/4° çözünürlükte; Copernicus Marine Service, 2025c, 2025d) çıkarıldı; değerleri olmayan kıyısal grid hücreleri komşu hücrelerin ortalamasıyla dolduruldu.
\n
Yüzey akıntıları, akışın yönünü ve büyüklüğünü birlikte tanımlayan zonal (uₒ; doğu–batı) ve meridional (vₒ; kuzey–güney) hız bileşenleriyle (m sₒ¹) temsil edildi. Aylık ürünler için fizik katmanları, veri çıkarılmadan önce biyojeokimya gridine yeniden örneklendi. Günlük kovaryatlar kendi doğal gridlerinden çıkarıldı. Çevresel değerler, her bir BRUV konumunda çift doğrusal enterpolasyon kullanılarak elde edildi. Akıntı hızı, bu bileşenlerin vektör büyüklüğü olarak hesaplandı (√ (uₒ² + vₒ²)). Derinlik, BRUV yerleşimi sırasında in situ olarak kaydedildi. Kaplumbağa varlığı, analiz edilen görüntülerden her bir yerleşim için ikili bir değişken olarak kaydedildi (1 = en az bir deniz kaplumbağası gözlemlendi; 0 = hiçbiri).
\n
Benitik habitat, her bir yerleşim için stereo-BRUV görüntülerinden sınıflandırıldı ve Allen Mercan Atlası’nın (Allen Coral Atlas, 2020) benitik sınıflarına standartlaştırıldı: Mercan/Alg, Kaya, Rhodolitler ve Kum. Atlas ile eşleşen 49 yerleşimde, video tabanlı sınıflandırmalar Atlas ile karşılaştırıldı ve görüntülerin belirsiz olduğu (örneğin kamera yukarı doğru eğik veya deniz tabanı görünmediği durumlar) veya Atlas ile uyuşmadığı durumlarda Atlas sınıfı benimsendi. Diğer tüm yerleşimler video tabanlı sınıflandırmalarını korudu. Habitatın belirlenemediği yerleşimler ‘Bilinmiyor’ (n = 13) olarak sınıflandırıldı ve tespit modellemesinden (Bölüm 2.6.1) çıkarıldı.
\n
2.5 Mekansal dağılım
\n
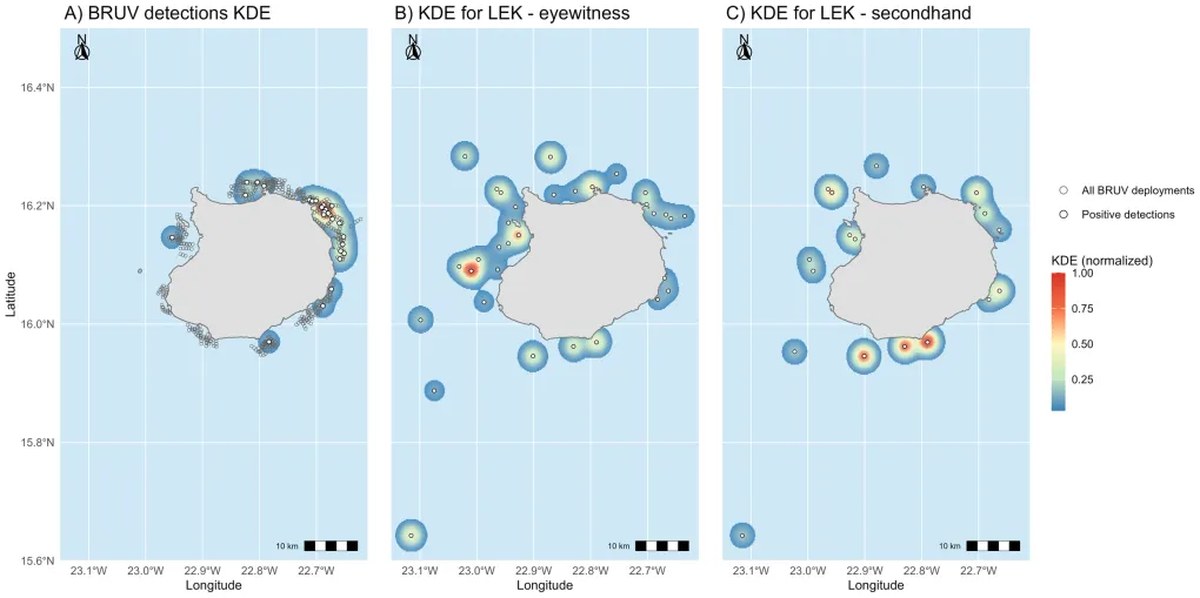
Kaplan köpekbalığı kayıtlarının mekansal kümelenmesi, BRUV tespitleri, balıkçılar tarafından bildirilen görgü tanığı konumları ve balıkçılar tarafından bildirilen dolaylı raporlar için ayrı ayrı uygulanan spatstat (Baddeley ve Turner, 2005) içindeki çekirdek yoğunluk tahmini (KDE) kullanılarak görselleştirildi. Haritalama öncesinde LEK kayıtlarından yinelenen koordinat çiftleri kaldırıldı. KDE yüzeyleri, kenar düzeltmesi ile bir Gauss çekirdeği kullanılarak oluşturuldu. Bu haritalar, göreceli mekansal sıcak noktaları tanımlamak için betimsel olarak kullanıldı ve çıkarımsal habitat modelleri olarak yorumlanmadı.
\n
Kaplan köpekbalığı tespitlerindeki mekansal otokorelasyon, Moran’s I (R paketi spdep; Bivand ve Wong, 2018) kullanılarak test edildi; yerleşim koordinatları UTM bölgesi 27N’ye projekte edildi, 1, 2 ve 5 km’lik mesafe tabanlı komşuluklar, satır standartlı ağırlıklar ve 999 permütasyon kullanıldı. Testler ham tespitlere (N = 526), anket dönemi ortalamalarına merkezlenmiş tespitlere ve tespit modelinin simüle edilmiş artıklarına (N = 513; Bölüm 2.6.1) uygulandı. Tespitlerdeki mevsimsel örüntünün yerleşimlerin yapıldığı yerlerden bağımsız olup olmadığını değerlendirmek için, Haziran ayındaki ve diğer anket dönemlerindeki tespit oranları, en az üç anket döneminde örneklenmiş 0.05°’lik grid hücreleri içinde Fisher’ın kesin testi kullanılarak karşılaştırıldı.
\n
2.6 İstatistiksel analiz
\n
Tüm istatistiksel analizler R sürüm 4.6.1’de (R Core Team, 2026) gerçekleştirildi. Tersine dönmüş yerleşimler, düşük görünürlüğe sahip olanlar ve kovaryat bilgileri eksik olan kayıtlar çıkarıldıktan sonra, betimsel tespit özetleri için 526 yerleşim korundu; bunlar 29 kaplan köpekbalığı tespiti ve 497 tespit içermeyen yerleşimden oluşuyordu. Anket dönemine ve habitata göre tespit oranları, Wilson güven aralıkları ile ikili oranlar kullanılarak betimsel olarak özetlendi.
\n
2.6.1 Tespit modellemesi
\n
Tespit modellemesi için, ‘Bilinmeyen’ habitat olarak sınıflandırılan yerleşimler (n = 13) çıkarıldı, çünkü bu kategori çözümlenmemiş ve yorumlanamayan habitat bilgilerini temsil ediyordu. Nihai modelleme veri seti 513 yerleşimden oluşuyordu. MaxN’nin sayım tabanlı modellenmesi başlangıçta düşünüldü; ancak, kaplan köpekbalığı tespitlerinin nadirliği ve her pozitif yerleşimde en fazla bir bireyin gözlemlenmesi nedeniyle ikili bir tespit yanıtı (tespit/tespit yok) benimsendi. Bu yaklaşım, düşük MaxN değerlerinin görüldüğü BRUV tabanlı elasmobranch çalışmalarında, tespit olasılığı sorusunu doğrudan ele almak için ikili modellerin kullanılmasıyla uyumludur (Garzon ve diğerleri, 2021). Kaplan köpekbalığı tespiti, yanıt değişkeni olarak tespit (1) veya tespit yok (0) ile deniz yüzeyi sıcaklığı (SST), tuzluluk, klorofil-a, akıntı hızı, derinlik ve benitik habitatın öngörücü değişkenler olduğu ikili bir GLM kullanılarak modellendi. Model, logit bağlantısı kullandı ve Mercan/Alg referans habitat kategorisi olarak alındı:
\n
, burada pi, i. yerleşiminde kaplan köpekbalığı tespit olasılığıdır.
\n
Modelleme veri seti 28 tespiti içeriyordu; bu nedenle seçilen model, parametre başına yaklaşık 3,5 olay ile sekiz eğim parametresi tahmin etti. Bu değer, önerilen 10’dan (Peduzzi ve diğerleri, 1996) ve daha esnek olan 5–9’dan (Vittinghoff ve McCulloch, 2007) daha düşüktü; dolayısıyla katsayı tahminleri keşif amaçlı olarak ele alındı. Aday modellerde SST, tuzluluk, klorofil-a, akıntı hızı, derinlik, bentik habitat, çözünmüş oksijen, araştırma dönemi ve kaplumbağa varlığı (Bölüm 2.4’ta tanımlanmıştır) kombinasyonları test edildi. Boa Vista’nın Atlantik’teki en büyük loggerhead kaplumbağası (Caretta caretta) yumurtlama topluluklarından birine ev sahipliği yapması ve kaplan köpekbalıklarının deniz kaplumbağası üreme alanlarıyla mekânsal olarak ilişkili olduğu bilindiği için sonuncusu modele dahil edildi (Seymour ve diğerleri, 2026). Zuur ve diğerleri (2010) uyarınca, öngörücü değişkenler arasındaki çoklu doğrusallık Pearson korelasyon matrisleri ve varyans şişirme faktörleri kullanılarak değerlendirildi. Klorofil-a ile çözünmüş oksijen arasında yüksek bir çoklu doğrusallık (r = 0,95) tespit edildi. Bu durumu ele almak için her iki değişken de aday modellerde değerlendirildi; biyolojik yorumlanabilirlik ve model performansı temelinde, klorofil-a birincil üretkenliğin bir göstergesi olarak nihai yorumlayıcı modele dahil edilirken, çözünmüş oksijen gereksiz tekrarlamayı ve kararsız parametre tahminlerini önlemek için çıkarıldı. Hassasiyet analizleri, çözünmüş oksijenin çıkarılmasının diğer öngörücülerin etkilerini niteliksel olarak değiştirmediğini doğruladı.
\n
Aday modeller Akaike Bilgi Kriteri (AIC) kullanılarak karşılaştırıldı. Birden fazla modelin benzer AIC değerlerine sahip olduğu durumlarda (ΔAIC < 2), en iyi modeller arasındaki parametre tutarlılığı ve biyolojik yorumlanabilirlik model seçiminde kullanıldı. Artık dağılım ve aykırı değerler, simülasyon tabanlı artık analizleriyle (DHARMa; Ek Şekil S4) kontrol edildi. Ayırt edicilik, ROC eğrisi altındaki alan (AUC; Ek Şekil S5) olarak ölçüldü. Aynı verilerle seçilen bir modelin AUC’sinin iyimser olma eğiliminde olması nedeniyle, tekrarlanan katmanlı beş katlı çapraz doğrulama (50 tekrar) ve aynı 0,05° grid hücresindeki tüm yerleştirmelerin birlikte dışarıda bırakıldığı mekânsal olarak bloklu çapraz doğrulama ile de tahmin edildi (Roberts ve diğerleri, 2017). Çapraz doğrulama, seçilen model yapısını her bir eğitim katmanında yeniden uyarladı; model seçimi katmanlar içinde tekrarlanmadı. Bu nedenle bu tahminler, seçilen modelin o yapıya koşullu olarak değerlendirildiğini ve model seçimi belirsizliğini hesaba katmadığını göstermektedir.
\n
Aylık çevresel kovaryatlar araştırma dönemiyle karışabileceğinden, dört ek analiz gerçekleştirildi. İlk olarak, hem aylık hem de günlük kovaryatlar için her bir kovaryattaki varyasyonun yüzde kaçının örnekleme ayları arasında ve yüzde kaçının araştırma dönemleri arasında meydana geldiği hesaplandı (Bölüm 2.4). İkinci olarak, seçilen model, araştırma dönemi sabit bir etki olarak, araştırma dönemi veya ay ise rastgele bir kesme olarak yeniden uyarlandı (R paketi lme4; Bates ve diğerleri, 2015); ayrıca aylık yerine günlük kovaryatlar kullanıldı. Üçüncü olarak, SST ve tuzluluk aylık ortalamalarına ve her bir yerleştirmenin bu ortalamadan sapmasına ayrıldı (iç–arası merkezleme; van de Pol ve Wright, 2009), böylece aylar içindeki çevresel değişime verilen tepki, aylar arasındaki farklılıklardan ayırt edilebildi. Dördüncü olarak, parametre başına düşük olay sayısı nedeniyle, seçilen model ve yalnızca araştırma dönemini öngörücü olarak alan bir model, Firth’in cezalı olabilirlik lojistik regresyonu ile yeniden uyarlandı (R paketi logistf; Firth, 1993; Heinze ve Schemper, 2002; ayrıca bkz. Jenkins ve Quintana-Ascencio, 2020); sürekli kovaryatlar standartlaştırıldı. Olağan GLM katsayı tabloları Wald p-değerlerini ve %95 profil-olabilirlik güven aralıklarını raporlarken, Firth modelleri cezalı olabilirlik-oran p-değerlerini ve profil cezalı-olabilirlik güven aralıklarını raporlamaktadır.
\n
2.6.2 Vücut boyutu–çevre ilişkileri
\n
Vücut uzunluğu, güvenilir stereo-video ölçümlerine sahip kaplan köpekbalıkları için ayrı olarak analiz edildi. Bireyler, Natanson ve diğerleri (2023) tarafından Galeocerdo cuvier için bildirilen dişi olgunlaşma medyan boyutuna dayanarak juvenil boyutlu (<2.614 mm FL) veya yetişkin boyutlu (≥2.614 mm FL) olarak sınıflandırıldı. BRUV görüntülerinden cinsiyetin belirlenememesi nedeniyle, dişi eşiği cinsiyete özgü medyan olgunlaşma tahminlerinin (erkekler için 2.589 mm FL ve dişiler için 2.614 mm FL) daha muhafazakâr olanı olarak seçildi; bu, Natanson ve diğerleri (2023) tarafından cinsiyeti bilinmeyen bireyler için kullanılan yaklaşımla tutarlıdır. Bu sınıflar, temel olgunlaşma tahminleri batı Kuzey Atlantik’ten türetildiği ve Cabo Verde için bölgesel olgunlaşma tahminleri mevcut olmadığından, doğrulanmış olgunluk aşamaları veya yaşlar yerine tanımlayıcı boyut kategorileri olarak yorumlandı.
\n
Uzunluk–çevre analizleri keşif amaçlı olarak ele alındı, çünkü ölçülen birey sayısı azdı, mevsimsel temsil düzensizdi, ölçülen bireyler için derinlik bilgileri büyük ölçüde mevcut değildi ve test edilen çevresel öngörücüler (SST, tuzluluk, klorofil-a, akıntı hızı ve çözünmüş oksijen) arasında güçlü bir çoklu doğrusallık vardı. Bu nedenle, çok değişkenli uzunluk modelleri yorumlanmadı. Bunun yerine, sürekli vücut uzunluğu her bir çevresel gradyanla Spearman’ın sıra korelasyonu kullanılarak test edildi ve tamamlayıcı bir sağlamlık kontrolü olarak Kendall’ın τ’si kullanıldı. Vücut uzunluğundaki mevsimsel farklılıklar Kruskal–Wallis testi ile değerlendirildi; bu, örneklem yapısının daha karmaşık modellemeyi sınırladığı durumlarda parametrik olmayan yaklaşımlar kullanan benzer kaplan köpekbalığı boyut-yapısı çalışmalarıyla tutarlıdır (Afonso ve diğerleri, 2014; Séguigne ve diğerleri, 2023).
\n
3 Sonuçlar
\n
3.1 Mekânsal örüntüler
\n
Kaplan köpekbalıkları, tanımlayıcı analiz için korunan 526 stereo-BRUV yerleştirmesinden 29’unda tespit edildi; bu, yerleştirme düzeyinde %5,5’lik bir tespit oranına karşılık gelmektedir. Hiçbir pozitif yerleştirmede birden fazla birey kaydedilmedi (MaxN = 1). BRUV tespitlerinin çekirdek yoğunluk tahmini, Esgata bölgesini ana tespit yoğunluğu olarak belirledi (Şekil 2A). Fisher tarafından bildirilen görgü tanığı gözlemleri, Pico do Homem, Sal Rei Körfezi ve Boa Vista’nın güneybatısındaki açık denizdeki João Valente Sırtı yakınlarında daha yüksek kaplan köpekbalığı varlığına işaret etti (Şekil 2B); bu bir su altı dağı olup Boa Vista ve Maio adaları arasında yer almaktadır. İkinci el raporlar genel olarak bu örüntüyle tutarlıydı (örneğin, João Valente Sırtı’nı da bir potansiyel yoğunluk alanı olarak belirterek) ve adanın güney kıyısı boyunca başka yüksek rapor edilmiş varlık alanlarını (Curral Velho ve Lacacão) da gösteriyordu (Şekil 2C). LEK görüşmeleri sırasında bildirilen ve Şekil 2B, C’de gösterilen tüm konumlar Ek Şekil S2’de belirtilmiştir.
\n
29 tespitten 25’i (%86) 22,80° W’nin doğusunda gerçekleşti (Şekil 2A). Tespitler 1–5 km aralığında zayıf ancak anlamlı pozitif mekânsal otokorelasyon gösterdi (Moran’s I = 0,044–0,061, p ≤ 0,008); bu durum, tespitler araştırma dönemi ortalamalarına göre merkezleştirdikten sonra da devam etti (I = 0,042–0,057, p ≤ 0,017). Model artıklarında test edilen mesafelerde istatistiksel olarak anlamlı pozitif mekânsal otokorelasyon tespit edilmedi (I = −0,008 ila 0,007, p ≥ 0,35; Ek Tablo S2). Tanıtım kartı gösterildiğinde, 40 katılımcıdan 29’u ( %72,5) sunulan on bir köpekbalığı türü arasında G. cuvier’i doğru bir şekilde tanıdı (Ek Tablo S3). Türü doğru tanıyamayan 11 katılımcının mekânsal ve mevsimsel kayıtları da analizde korundu.
\n
3.2 Zamansal örüntüler ve habitat türü
\n
Kaplan köpekbalığı tespit olasılığı örnekleme dönemleri arasında belirgin şekilde değişti (Şekil 3A). Haziran kampanyası en yüksek tespit oranını ( %11,6; 181 yerleştirmede 21 tespit) verdi ve diğer tüm dönemlerin oranlarını önemli ölçüde aştı. Mart/Nisan (%1,9; 107’de 2), Ağustos (%2,8; 143’te 4) ve Ekim (%2,1; 95’te 2) dönemlerinde tespit oranları sürekli olarak düşüktü. Haziran’daki zirve, en az üç araştırma döneminde örneklenen 0,05° grid hücreleri içinde de belirgindi: Haziran yerleştirmelerinin %11,8’inde (169’da 20) kaplan köpekbalığı tespit edilirken, diğer dönemlerde bu oran %2,3’tü (310’da 7) (Fisher’ın kesin testi, p < 0,001).
\n
Bu mevsimsel örüntü, kaplan köpekbalığı tespitlerinde kurak mevsimden yağışlı mevsime geçiş döneminde (Mayıs–Haziran) belirgin bir zirve olduğunu, diğer araştırma dönemlerinde ise tespit olasılıklarının daha düşük ve nispeten homojen olduğunu göstermektedir. Tespit olasılığı bentik habitat türleri arasında önemli ölçüde farklılık göstermiştir (Şekil 3B). Mercan/yosun habitatları en yüksek tespit oranını (yüzde 7,8; 116 yerleştirme sırasında 9 tespit) sağlarken, bunu hemen rhodolith yatakları (yüzde 7,7; 195 yerleştirme sırasında 15 tespit) takip etmiştir. Kum habitatları orta düzeyde tespit (yüzde 3,6; 83 yerleştirme sırasında 3 tespit) göstermiş, kaya substratları ise en düşük tespit olasılığına (yüzde 0,8; 119 yerleştirme sırasında 1 tespit) sahip olmuştur. Bu betimsel farklılıklar, habitat etkilerinin anlamlı olmadığı tespit modelinde desteklenmemiştir (Bölüm 3.3).
\n
Boa Vista çevresindeki kaplan köpekbalığı bolluğunda son on yılda yaşanan algılanan değişiklikler sorulduğunda, katılımcılar farklı görüşler belirtmiştir. 40 katılımcıdan 20’si (yüzde 50) yıllar arası yüksek değişkenlik nedeniyle belirsizlik yaşadığını, sekizi (yüzde 20) kaplan köpekbalığı bolluğunda bir artış olduğunu, üçü ise (yüzde 7,5) bir azalma olduğunu belirtmiştir.
\n
Ayrı bir soruda katılımcılar, 2025 yılında ve önceki on yıl boyunca (2015–2025) şahsen kaç kaplan köpekbalığıyla karşılaştıklarını bildirmişlerdir. Bu veriler yıllık ortalamalar yerine her bir hatırlama dönemi için bildirilen toplam sayıları içermektedir. En sık bildirilen kategori her iki dönemde de 2–10 köpekbalığı olmuştur: 2025’te 16 katılımcı (yüzde 41,0) ve 2015–2025 döneminde 19 katılımcı (yüzde 48,7). On yıllık dönemde daha yüksek karşılaşma kategorileri daha sık bildirilmiştir (Şekil 4). Hatırlama dönemlerinin süreleri farklı olduğundan ve sayımlar gözlem çabasına göre standartlaştırılmadığından, bu karşılaştırma kaplan köpekbalığı bolluğunda bir değişikliğin kanıtı olarak yorumlanamaz.
\n
Bu farklı algılar, balıkçılık uygulamaları ve ekipman türlerindeki farklılıkları yansıtıyor gibi görünmektedir: Geleneksel balıkçılar genellikle teknelerine yaklaşan veya menziline giren bireyleri gözlemlerken, dalgıçlar ve mızraklı balıkçılar daha doğrudan su altı karşılaşmaları yaşamıştır.
\n
3.3 Çevresel kovaryatlar, araştırma dönemi ve model performansı
\n
Seçilen binomiyal GLM; SST, tuzluluk, klorofil-a, akıntı hızı, derinlik ve habitatı içermiştir (Tablo 1). Tespit, SST ile negatif (β = −0,909, %95 GA: −1,759 ila −0,249, p = 0,016) ve tuzluluk ile pozitif (β = 6,999, %95 GA: 0,278 ila 14,229, p = 0,044) ilişkilendirilmişken; klorofil-a, akıntı hızı, derinlik ve habitat Wald testlerinde istatistiksel anlamlılığa ulaşamamıştır (Tablo 1). Tuzluluk katsayısının büyük ve belirsiz olması, örneklenen dar tuzluluk aralığını (35,9–36,4) ve parametre başına düşen olay sayısının azlığını yansıtmaktadır; bu nedenle tüm çevresel katsayılar keşif amaçlı olarak yorumlanmalıdır. Firth’in cezalı olabilirlik regresyonu, tutarlı SST ve tuzluluk tahminleri vermiştir (standartlaştırılmış katsayılar: SST = −1,54, %95 GA: −3,02 ila −0,34; tuzluluk = 1,15, %95 GA: 0,17 ila 2,05; Ek Tablo S5).
\n
| Terim | Tahmin | SE | %95 GA | z | p |
|---|---|---|---|---|---|
| Kesme | −224,974 | 122,751 | −477,891 ila 17,726 | −1,83 | 0,067 |
| SST (°C) | −0,909 | 0,376 | −1,759 ila −0,249 | −2,42 | 0,016 |
| Tuzluluk | 6,999 | 3,477 | 0,278 ila 14,229 | 2,01 | 0,044 |
| Klorofil-a (mg m⁻³) | −18,179 | 9,898 | −38,907 ila 1,170 | −1,84 | 0,066 |
| Akıntı hızı (m s⁻¹) | −45,889 | 36,074 | −142,829 ila −2,178 | −1,27 | 0,203 |
| Derinlik (m) | −0,015 | 0,038 | −0,092 ila 0,058 | −0,39 | 0,700 |
| Habitat: Kaya | −1,833 | 1,082 | −4,775 ila −0,082 | −1,69 | 0,090 |
| Habitat: Rhodolithler | 0,059 | 0,492 | −0,898 ila 1,051 | 0,12 | 0,905 |
| Habitat: Kum | 0,201 | 0,764 | −1,447 ila 1,637 | 0,26 | 0,793 |
\n
Tahminler, her bir kovaryatın (SST, °C; tuzluluk, pratik tuzluluk ölçeği; klorofil-a, mg m⁻³; akıntı hızı, m s⁻¹; derinlik, m) bir birimindeki log-olasılıklardır; habitat etkileri Mercan/Yosun’a göre görelidir. p değerleri Wald testlerinden gelmektedir; GA, %95 profil-olasılık güven aralığını belirtir. Bu yöntemler, seyrek verilerde farklı çıkarımsal sonuçlar üretebilir. Parametre başına düşen olay sayısının az olması (Bölüm 2.6.1) ve SST ile tuzluluğun araştırma döneminden ayrılamaması nedeniyle (Bölüm 3.3; Ek Tablolar S3–S5), bu katsayılar keşif amaçlı olarak yorumlanmalıdır.
\n
Ancak bu ilişkiler araştırma döneminden ayrılamamıştır. SST, tuzluluk, klorofil-a ve çözünmüş oksijen neredeyse tamamen örnekleme ayına göre değişmiştir (varyasyonlarının sırasıyla %99,9, %95,0, %98,4 ve %99,5’i) ve günlük verilerden çıkarıldığında SST neredeyse tamamen mevsimsel kalmıştır (%97,0; Ek Tablo S3). Araştırma dönemi sabit bir etki olarak eklendiğinde, ne SST (p = 0,74) ne de tuzluluk (p = 0,59) anlamlı kalmış ve varyasyon şişmesi aşırı olmuştur (genelleştirilmiş varyasyon şişme faktörü: SST için 2.383 ve tuzluluk için 213; Ek Tablo S4). Araştırma dönemi veya ay rastgele bir kesme olarak modellendiğinde, varyasyonu sıfır olarak tahmin edilmiş (tekil uyum) ve tahminler seçilen modeldekiyle aynı olmuştur. Günlük kovaryatlarla birlikte, SST araştırma dönemi olmadan anlamlı iken (p = 0,004), araştırma dönemi eklendiğinde anlamlı olmamıştır (p = 0,87); tuzluluk ise her iki modelde de anlamlı olmamıştır (p = 0,42 ve 0,17; Ek Tablo S4). Günlük kovaryatların iç–arası merkezlenmesiyle, ne ay içi SST (p = 0,98) ne de ay içi tuzluluk (p = 0,19) tespitle istatistiksel olarak anlamlı bir ilişki göstermiştir (Ek Tablo S5A2). Tespit olasılıkları Mart/Nisan’a kıyasla Haziran’da daha yüksekti (Firth regresyonu: olasılık oranı = 5,2, %95 GA: 1,6–26,4; Ek Tablo S5). Uygulanan ilişkiler Şekil 5A, B’de gösterilmektedir; her iki kovaryat da neredeyse tamamen aylar arasında değiştiğinden, bu tahminler sıcaklığa veya tuzluluğa bağımsız bir yanıtı değil, her bir araştırma döneminin koşullarını tanımlamaktadır.
\n
Model teşhisleri aşırı dağılım (DHARMa dağılım testi: p = 0,92) veya aşırı aykırı değer olmadığını göstermiştir (p = 0,31; Ek Şekil S4). Örneklem içi AUC 0,81 olmuştur (Ek Şekil S5); çapraz doğrulanmış AUC 0,74 (tekrarlar arası %95 aralık: 0,70–0,76) ve uzamsal olarak bloklanan çapraz doğrulanmış AUC 0,70 (0,66–0,73) olarak bulunmuş olup, bu da seçilen model yapısına koşullu olarak orta düzeyde ayırt ediciliği göstermektedir (Ek Tablo S6).
\n
3.4 Vücut boyutu analizi
\n
Keşif amaçlı analizler, kaplan köpekbalığının vücut uzunluğu ile çözünmüş oksijen konsantrasyonu arasında anlamlı bir negatif ilişki olduğunu ortaya koymuştur (Şekil 5C). Hem Spearman’ın sıralama korelasyonu (ρ = −0,446, p = 0,022) hem de Kendall’ın τ’si (τ = −0,328, p = 0,029), daha büyük bireylerin daha düşük çözünmüş oksijen seviyelerine sahip sularda bulunma eğiliminde olduğunu göstermiştir. Vücut uzunluğu ile SST (Spearman ρ = −0,01, p = 0,97), tuzluluk (ρ = 0,02, p = 0,94), klorofil-a (ρ = −0,03, p = 0,88) veya akıntı hızı (ρ = −0,004, p = 0,98) arasında anlamlı bir korelasyon tespit edilememiştir. Ancak, çevresel öngörücüler arasındaki güçlü çoklu doğrusallık (özellikle klorofil-a ile çözünmüş oksijen arasında, r = 0,95) ve sınırlı örneklem boyutu (n = 26), çok değişkenli yorumu kısıtlamaktadır. Çözünmüş oksijen neredeyse tamamen örnekleme ayları arasında değiştiğinden (Ek Tablo S3), gözlemlenen ilişki boyutla ilgili habitat kullanımını örneklenen çevresel koşullardaki zamansal farklılıklardan ayıramamaktadır.
\n
Ölçülen kaplan köpekbalıklarının çatal uzunluğu (FL) 1.487 ila 4.502 mm arasında değişirken, ortalama değer 2.722 ± 881 mm olarak belirlendi (Şekil 6). Tanımlama amacıyla bireyler, Natanson ve diğerleri (2023) tarafından bildirilen 2.614 mm’lik dişi olgunlaşma medyan FL değeri kullanılarak juvenil veya yetişkin boyutlu olarak sınıflandırıldı. BRUV görüntülerinden cinsiyetin belirlenememesi nedeniyle, Natanson ve diğerleri (2023) tarafından bilinmeyen cinsiyetteki bireyler için benimsenen yaklaşım doğrultusunda dişi eşiği daha ihtiyatlı kriter olarak seçildi. Buna göre, 12 birey (%46) juvenil boyutlu (<2.614 mm FL), 14 birey ise (%54) yetişkin boyutlu (≥2.614 mm FL) olarak sınıflandırıldı. Bu sınıflandırmalar, eşik değerlerin batı Kuzey Atlantik’ten türetildiği ve Cabo Verde için bölgeye özgü olgunlaşma tahminlerinin bulunmadığı göz önüne alındığında, kesin olgunluk durumu yerine boyuta dayalı kategoriler olarak yorumlanmalıdır. Ölçülen örneklem bileşimi araştırma dönemlerine göre farklılık gösterdi. Juvenil bireyler Mart/Nisan, Haziran, Ağustos ve Ekim aylarında kaydedilirken, yetişkin bireyler Haziran, Ağustos ve Ekim aylarında tespit edildi. Haziran ayında ölçülen birey sayısı en yüksek seviyedeydi (7 juvenil ve 11 yetişkin), diğer dönemlerdeki örneklem büyüklükleri ise sınırlıydı (n = 2–4). Kruskal–Wallis testi, araştırma dönemleri arasında vücut uzunluğunda istatistiksel olarak anlamlı bir fark olmadığını gösterdi (χ² = 2,2445, df = 3, p = 0,5232); ancak dönemler arasındaki küçük ve dengesiz örneklem büyüklükleri yorumu kısıtlamaktadır.
\n
4 Tartışma
\n
4.1 Boa Vista’da kaplan köpekbalığı varlığının bölgesel ve küresel bağlamı
\n
Kaplan köpekbalığının (Galeocerdo cuvier) ekolojisi batı Kuzey Atlantik, Karayipler ve Hint-Pasifik’in bazı bölgelerinde giderek daha iyi anlaşılmış olsa da, doğu ve güney Atlantik genelinde hâlâ yetersiz düzeyde bilinmektedir (Ek Şekil S1). Üreme habitatları, yarı yetişkin ekolojisi, habitat ayrımı ve hareketleri etkileyen çevresel faktörler konusunda önemli boşluklar bulunmaktadır (Holland ve diğerleri, 2019). Son sentez çalışmaları, Güney Atlantik’teki araştırmaların hâlâ sınırlı olduğunu, coğrafi olarak kuzeydoğu Brezilya’da yoğunlaştığını ve Afrika Atlantik ülkelerinde büyük ölçüde eksik olduğunu göstermektedir (Balanin ve diğerleri, 2023).
\n
Son çalışmalar, Cabo Verde deniz ekosisteminde kaplan köpekbalıklarının varlığını ortaya koymaya başlamıştır. Doğu adaları genelinde gerçekleştirilen topluluk düzeyinde bir BRUV araştırması, kaplan köpekbalıklarını seyrek de olsa tespit etmiş; toplamda en fazla üç birey kaydedilmiş ve bunların hepsi Sal adasından gelmiş, Boa Vista çevresinde ise hiçbir tespit yapılamamıştır (Seymour ve diğerleri, 2024). Sonraki telemetri çalışmaları, daha geniş doğu takımadalarının kullanıldığını doğrulamış; hareketler en çok doğudaki üç adanın (Sal, Boa Vista ve Maio) doğu ve kuzey kıyıları boyunca yoğunlaşmış, batı adalarına ise hiçbir hareket kaydedilmemiştir (Seymour ve diğerleri, 2026). Ancak bu çalışmaların hiçbiri kaplan köpekbalıklarının Boa Vista rafını ne kadar düzenli kullandığını veya yerel ekolojik koşulların varlıklarıyla nasıl ilişkili olduğunu aydınlatamamıştır. Mevcut çalışma bu boşluğu doğrudan ele almaktadır: Analiz edilen 526 BRUV yerleştirmesi boyunca kaplan köpekbalıkları 29 kez tespit edilmiş ve bu da %5,5’lik bir tespit oranına karşılık gelmiştir. Bu, Cabo Verde’de kaplan köpekbalıkları için bugüne kadar bildirilen en yüksek BRUV tespit oranıdır. Doğu adaları üzerindeki tek önceki BRUV araştırmasında kaplan köpekbalıkları yalnızca Sal çevresinde kaydedilmiş; 63 yerleştirme boyunca toplamda üç kayıt (toplam MaxN = 3) elde edilirken, Boa Vista veya diğer araştırılan konumlarda hiçbir tespit yapılamamıştır (Seymour ve diğerleri, 2024). Bu tekrarlanan tespitler, BRUV ile Boa Vista’nın yalnızca tesadüfi ziyaretler yerine düzenli kaplan köpekbalığı kullanımını destekleyebileceğine dair ilk kanıtı sunmaktadır.
\n
Daha geniş bir BRUV bağlamında, Espinoza ve diğerleri (2014) Büyük Bariyer Resifi’nde gerçekleştirilen 2.438 BRUV yerleştirmesi boyunca 94 kaplan köpekbalığı gözlemi ve toplamda 97 bireylik bir MaxN değeri bildirmiştir. Lester ve diğerleri (2022) ise kuzeybatı Avustralya’da gerçekleştirilen 1.273 stereo-BRUV yerleştirmesi boyunca toplamda 60 kaplan köpekbalığı MaxN değeri kaydetmiştir. Batı Atlantik BRUV araştırmalarında kaplan köpekbalıkları nadiren kaydedilmiştir; bunlara Bahamalar da dahildir, burada G. cuvier 279 yerleştirmenin sadece dördünde tespit edilmiştir (%1,4; Brooks ve diğerleri, 2011). Cayman Adaları’nda ise kaplan köpekbalıkları, 550’den fazla yerleştirme boyunca ana köpekbalığı türleri arasında en düşük tür düzeyinde MaxN değerine sahip olmuştur (Kohler ve diğerleri, 2025). Bu araştırmalar yem türü ve miktarı, yerleştirme süresi, yerleştirme aralığı, derinlik aralığı, su görünürlüğü, gün/gece kapsama alanı, kamera konfigürasyonu ve saha seçimi yaklaşımı gibi tespit olasılığını etkileyen faktörler açısından farklılık göstermektedir.
\n
Örneğin, Espinoza ve diğerleri (2014) 1 kg ezilmiş yağlı sardalya kullanmış ve yerleştirme başına en az 45 dakika (ortalama 53,3 ± 11,3 dakika) süre kaydetmişlerdir. Buna karşılık Brooks ve diğerleri (2011) 90 dakikalık yerleştirmeler kullanmış, mevcut çalışmada ise yaklaşık 1 kg sarıkanatlı ton balığı ve sabit 60 dakikalık bir analiz penceresi benimsenmiştir. Dolayısıyla yukarıdaki çalışmalar nicel bir sıralama için değil, genel bir bağlam sağlamak amacıyla kullanılmıştır. Burada bildirilen kayıtlar, Boa Vista çevresinde tekrarlanan tespitlerin varlığını ortaya koyarken, örnekleme tasarımlarındaki farklılıklar bölgeler arasında doğrudan nicel karşılaştırmaları imkansız kılmaktadır.
\n
4.2 Köpekbalığı tespitlerindeki mevsimsel ve çevresel örüntüler
\n
Boa Vista çevresindeki kaplan köpekbalığı tespitleri deniz yüzeyi sıcaklığı (SST) ile negatif, tuzluluk ile pozitif ilişki göstermiştir. Ancak bu ilişkiler araştırma döneminden ayrılamaz: çevresel koşullar neredeyse tamamen örnekleme ayları arasında değişmiş ve araştırma dönemi hesaba katıldığında her iki değişken de anlamlılığını kaybetmiştir (Bölüm 3.3). Bu nedenle SST ve tuzluluk, tespitlerin yoğunlaştığı araştırma döneminin koşullarını tanımlamak için kullanılmaktadır (Haziran: ortalama SST 24,5 °C, Mart’taki 21,9 °C ile Ekim’deki 27,8 °C arasında yer alıyor ve aylık ortalama tuzluluk 36,35 ile en yüksek seviyedeydi); bu değerler tespitleri doğrudan etkileyen faktörler olarak yorumlanmamalıdır. Sıcaklığın bu mevsimsel örüntüye katkıda bulunup bulunmadığı tek bir yıla ait aylık verilerle test edilemez. Kıyısal kaplan köpekbalığı varlığı başka bölgelerde sıcaklıkla ilişkilendirilmiştir (Payne ve diğerleri, 2018; Niella ve diğerleri, 2022) ve Boa Vista çevresinde bu tür etkileri test etmek için birden çok yıla yayılan ve yerleştirme düzeyinde ölçümler içeren bir örnekleme gerekecektir.
\n
Kaplan köpekbalıkları habitat kullanımlarında önemli mevsimsel ve gün/gece değişimleri sergiler; bunlara habitat derinliğindeki mevsimsel kaymalar ve geceleyin yüzey sularının daha fazla kullanılması dahildir (Afonso ve Hazin, 2015; Ajemian ve diğerleri, 2020). Bizim örnekleme çalışmamız 2–37 m derinlik aralığıyla sınırlı kalmış ve gün ışığı saatlerinde gerçekleştirilmiştir; dolayısıyla türün dikey ve gün/gece habitat kullanımının yalnızca sınırlı bir kısmını temsil etmektedir. Bu nedenle, dikey veya yatay habitat kullanımındaki mevsimsel bir değişim, köpekbalıklarının BRUV’lerin örneklediği derinlik aralığına ve zaman penceresine girme olasılığını değiştirebilir; bu durum yerel bollukta bir değişiklik anlamına gelmeyebilir. Dolayısıyla, Haziran’daki artışın zaman içinde tekrarlanıp tekrarlanmadığını belirlemek için yıllar boyunca tekrarlanan örnekleme gerekirken, temel nedenlerini ayırt etmek için daha geniş derinlik ve gün/gece örnekleme, ideal olarak bağımsız hareket veya telemetri verileriyle desteklenmesi gerekecektir.
\n
Benzer şekilde, tuzluluğun kıyısal köpekbalığı dağılımını, genellikle sıcaklık, gelgit değişimi ve girişlere yakınlıkla birlikte etkilediği bilinmektedir (Froeschke ve diğerleri, 2010). Tuzluluk, Batı Avustralya’daki Shark Bay’de kaplan köpekbalıkları için en uygun habitat modelinde de yer almıştır; burada varlık, çok daha geniş bir aralıkta (35,29–39,77) 37 tuzluluk civarında zirve yapmıştır (D’Antonio ve diğerleri, 2025). Boa Vista çevresinde ise örneklenen tuzluluk aralığı dardır (35,9–36,4) ve ağırlıklı olarak aylar arasında değişmektedir. Bu nedenle pozitif ilişki, tuzluluğun kendisine bir yanıt olmaktan ziyade, su kütlelerinin mevsimsel farklılıklarını yansıtıyor olabilir.
\n
Haziran ayındaki tespitlerdeki artış, Cabo Verde’deki kaplumbağa kaplumbağalarının yuva yapma sezonunun başlangıcıyla aynı zamana denk geldi. Bu sezon Ekim ayına kadar devam etmekte olup, ülkenin yuva yapma faaliyetlerinin %80’inden fazlası Boa Vista’da yoğunlaşmaktadır (Martins, 2012). Kaplan köpekbalıklarının deniz kaplumbağalarının yuva yapma sistemleriyle mevsimsel olarak ilişkili olduğu iyi belgelenmiştir: Galápagos Deniz Koruma Alanı’nda, stereo-BRUV ve telemetri verileri, yeşil deniz kaplumbağalarının yuva yapma sezonunda köpekbalığı görülme oranının yuva yapma dışı dönemlere kıyasla daha yüksek olduğunu göstermiştir (Acuña-Marrero ve diğerleri, 2017). Burada seçilen modelde kaplumbağaların varlığı dikkate alınmamıştır; ancak Boa Vista’nın Atlantik’teki en önemli kaplumbağa kaplumbağası yuva alanı olması (Marco ve diğerleri, 2012) ve bu sezonun başlangıcıyla örtüşmesi, av takibinin Haziran ayındaki artan tespitler için makul bir hipotez olduğunu göstermektedir. Bu hipotezi doğrudan test etmek, tüm yuva yapma sezonu boyunca köpekbalıkları ve kaplumbağalar için eş zamanlı telemetri çalışmaları gerektirecektir ki bu da gelecekteki araştırmalar için bir öncelik olmalıdır.
\n
Balıkçılarının bilgileri de benzer bir mevsimsellik tablosu sunmaktadır. Bildirilen gözlemler Mayıs ile Ağustos ayları arasında yoğunlaşmıştır (kayıtların %71’i; 58/82), ancak zirve Haziran yerine Ağustos ayında gerçekleşmiştir (Şekil 3C). Dolayısıyla her iki kaynak da köpekbalığıyla karşılaşmaların kurak mevsimden yağışlı mevsime geçiş döneminde ve yağışlı mevsimde daha sık olduğunu göstermektedir (Bölüm 2.2); ancak zirve zamanlaması konusunda farklılık göstermektedir. Balıkçılık ve dalış faaliyetlerindeki mevsimsel değişkenlik, balıkçıların anılarının kapsadığı daha uzun süre ve Temmuz ayında BRUV örnekleminin yapılmamış olması bu farklılığa katkıda bulunabilir.
\n
4.3 Habitat kullanımı ve derinlik bağlamı
\n
Tespit modelinde habitatın anlamlı bir etkisinin olmaması, habitatın ekolojik olarak önemsiz olduğu şeklinde yorumlanmamalıdır. Galeocerdo cuvier genel olarak kıyısal, raf ve resif ortamlarında yaşadığı için sınıflandırılır (Espinoza ve diğerleri, 2014; Ebert ve diğerleri, 2021); bu tür, koylar ve haliçlerden açık raf ve resif habitatlarına kadar geniş bir bentik ortam yelpazesinden yararlanır. Boa Vista sonuçları bu genelci profili yansıtmaktadır: tespitler birden fazla bentik sınıfta gerçekleşmiş olup, tek bir habitat türüne yönelik bir tercih yerine adanın raf yapısının daha geniş bir mozaiğinin kullanıldığını göstermektedir. Burada örneklenen derinlik aralığı (2–37 m), Büyük Bariyer Resifi’ndeki köpekbalıkları için bildirilen aralıktan (15,3–85 m; Espinoza ve diğerleri, 2014) önemli ölçüde daha sığdır; orada tespitler aynı zamanda rafın konumu ve derinlikten de etkilenmiştir. Eğer daha büyük köpekbalıkları gündüzleri daha derin raf kenarı veya açık deniz habitatlarını kullanıyorsa —ki büyük bireylerin geceleyin çok sığ sulara doğru ilerleyip gündüzleri daha derin alanlara geri döndüğüne dair raporlarla bu tutarlıdır (Ebert ve diğerleri, 2021)— Boa Vista çevresindeki gündüz BRUV tespitleri, doğu Cabo Verde deniz manzarasının daha geniş çaplı kullanımını eksik yansıtmaktadır.
\n
4.4 Vücut boyutu yapısı
\n
Boa Vista çevresinde tespit edilen köpekbalıkları geniş bir vücut boyutu aralığını kapsamaktadır. 29 pozitif yerleştirmeden 26’sından güvenilir köpekbalığı boyu ölçümleri alınmış olup, bu ölçümler 1.487 ila 4.502 mm FL arasında değişmektedir. Natanson ve diğerleri (2023) tarafından bildirilen dişi olgunlaşma medyan boyutu referans olarak alındığında, bireylerin 12’si (%46) juvenil boyutlu (<2.614 mm FL), 14’ü ise (%54) yetişkin boyutlu (≥2.614 mm FL) olarak sınıflandırılmıştır. Bu kategoriler, BRUV görüntülerinden cinsiyetin belirlenememesi, olgunlaşma tahminlerinin batı Kuzey Atlantik’ten alınması ve Cabo Verde için bölgesel olgunlaşma tahminlerinin henüz mevcut olmaması nedeniyle kesin olgunluğu değil, vücut boyutunu tanımlamaktadır.
\n
Bu geniş boyut aralığındaki bireylerin varlığı, Boa Vista rafının hem daha küçük hem de daha büyük köpekbalıkları tarafından kullanıldığını göstermektedir. Karşılaştırma yapmak gerekirse, Driggers ve diğerleri (2008) batı Kuzey Atlantik köpekbalıklarında <1.800 mm FL olanları juvenil olarak sınıflandırmış ve yılın yavrularını bu sınıflandırmaya dahil etmemiştir. Boa Vista’da ölçülen en küçük köpekbalığı (1.487 mm FL) bu boyut aralığına girmekte olup, çalışma alanında nispeten küçük juvenil bireylerin de bulunduğuna dair karşılaştırmalı kanıt sunmaktadır. Ancak Driggers ve diğerleri (2008) kriteri farklı bir popülasyon için geliştirilmiştir ve burada yaş sınıfları belirlemek için kullanılmamıştır. Bildiğimiz kadarıyla, Cabo Verde’deki köpekbalıkları için yerel olarak geliştirilmiş bir boy-yaş ilişkisi yayınlanmamıştır; bu nedenle ölçülen bireylere spesifik yaşlar veya YOY durumu atandığı söylenemez.
\n
Bu boyut tanımları aynı zamanda ölçüm belirsizliği de içermektedir. Stereo-BRUV ölçümleri görünürlüğe, kameralardan olan mesafeye ve hayvanın çerçeve içinde tamamen ölçülüp ölçülemeyeceğine bağlıdır (Harasti ve diğerleri, 2017). Üç tespitte güvenilir boy ölçümü yapılamamış, 2.614 mm FL sınırına yakın tahmini boyu olan bireylerin ise iki tanımsal boyut sınıfından birine atanması daha az güvenilirdir. Dolayısıyla gözlemlenen sayılar, popülasyonun boyut yapısını değil, ölçülebilen örneklemini yansıtmaktadır.
\n
Juvenil boyutlu köpekbalıklarının varlığı, Boa Vista’nın juvenil habitat olarak rolünün daha fazla araştırılmasını gerektirir, ancak burada yerel olarak doğum veya yavrulama alanı olduğunu kanıtlamaz. Batı Kuzey Atlantik’te genç köpekbalıkları geniş raf ortamlarında bulunur ve yerel yoğunlaşmalar, ayrı yavrulama alanlarından ziyade önemli doğum alanlarına işaret etmektedir (Driggers ve diğerleri, 2008). Bir yavrulama alanı olduğunu kanıtlamak için, diğer alanlara kıyasla daha yüksek juvenil bolluğu, uzun süreli kalma veya geri dönüşü ve yıllar boyunca tekrarlanan kullanımı gösteren kanıtlar gereklidir (Heupel ve diğerleri, 2007). Köpekbalıklarında üreme alanı sadakati olduğunu gösteren kanıtlar (McClain ve diğerleri, 2022) ve Baía de Sal Rei’nin diğer köpekbalığı türleri için potansiyel bir yavrulama alanı olarak tanımlanması (Rosa ve diğerleri, 2023), Boa Vista çevresinde hedefli araştırmalar yapılması gerektiğini güçlendirmektedir. Tekrarlanan boy ölçümlerini, üreme değerlendirmelerini ve etiketlemeyi birleştirmek, juvenil habitat kullanımını yerel üremeden ayırmaya ve bireylerin kalıp kalmadığını veya geri dönüp dönmediğini belirlemeye yardımcı olacaktır.
\n
4.5 Mekansal dağılım: BRUV ve LEK sıcak noktaları
\n
BRUV ve LEK verileri, kısmen örtüşen ancak yönteme özgü mekansal örüntüler ortaya koymuştur. BRUV tespitleri videoyla doğrulanmış varlık kanıtı sağlarken, görgü tanığı ve ikinci el raporlar daha geniş bir bildirilen dağılımı tanımlamaktadır. Bu nedenle, yalnızca LEK aracılığıyla tespit edilen alanlar, kanıtlanmış habitat kullanımı yerine hedefli gelecekteki araştırmalar için öncelikli alanlar olarak kabul edilmektedir.
\n
BRUV tespitleri en çok doğu ile kuzeydoğu raf boyunca, genel olarak Esgata–Porto Ferreira/Ervatão sektörü çevresinde yoğunlaşmıştır. LEK tabanlı KDE’ler ise daha geniş bir algılanan dağılım alanı tanımlamıştır: görgü tanığı raporları bu sinyalle kısmen örtüşse de, batı ve kuzeybatı kıyılarını, özellikle Pico de Homem ve Baía de Sal Rei’yi de vurgulamıştır. Bu örüntüler muhtemelen katılımcıların faaliyet alanlarından etkilenmektedir. Pico de Homem çevresindeki yoğunlaşma kısmen hedefli ton balığı avlama faaliyetlerini yansıtabilirken, Baía de Sal Rei sinyali bu limandan çıkan balıkçılık faaliyetlerinin yoğunluğunu gösterebilir. Bu yanlılıklar raporları geçersiz kılmaz, ancak bunların katılımcıların faaliyet alanları içindeki tekrarlanan karşılaşmaların kanıtı olarak yorumlanmasını şekillendirir. Ayrıca Sal Rei Körfezi’nin Önemli Köpekbalığı ve Ray Alanı (ISRA) olarak tanındığını belirtmek de yerindedir; zira burada çok türlü bir köpekbalığı yavrulama alanı bulunmaktadır: süt köpekbalığı (Rhizoprionodon acutus), yelpaze başlı köpekbalığı (Sphyrna lewini), siyah uçlu köpekbalığı (Carcharhinus limbatus), Atlantik tilki köpekbalığı (Paragaleus pectoralis) ve hemşire köpekbalığı (Ginglymostoma cirratum) (Rosa ve diğerleri, 2023).
\n
İkinci el raporlar mekansal olarak daha dağınık bir yapı sergilemiş ve kıyıya yakın BRUV alanının ötesine, Curral Velho, Lacacão ve João Valente Bank çevresindeki raporları da kapsayacak şekilde genişlemiştir. Bu mekansal düzen, hem orijinal gözlemcilerin faaliyetlerini hem de balıkçılar arasındaki bilgi aktarımını yansıtabilir. Gözlem çabası nicelleştirilmediğinden ve bu raporlar aktarım ile tür tanımlama hatalarına açık olduğundan, bunlar daha yüksek bolluk veya daha düşük örnekleme yanlılığı kanıtı olarak değil, doğrulanması gereken öncelikli bulgular olarak ele alınmaktadır. Boa Vista ile Maio arasında yer alan João Valente Shelf, yerel ve sınırlı yayılımlı Cape Verde yelken balığı (Raja herwigi) için belirlenmiş Önemli Köpekbalığı ve Akrep Balığı Alanı (ISRA) olarak tanınmakta olup, G. cuvier de destekleyici bir tür olarak listelenmiştir (IUCN SSC Köpekbalığı Uzman Grubu, 2025). Uyduyla etiketlenmiş yetişkin bir dişi kaplan köpekbalığının da açık denizdeki resifi kullandığı kaydedilmiştir (Seymour ve diğerleri, 2026). Bu bölgeden gelen ikinci el raporlarla birlikte, bu kayıtlar João Valente’yi, G. cuvier’in gelecekteki ISRA yeniden değerlendirmelerinde bir tür olarak kabul edilip edilmeyeceğini belirlemek amacıyla hedefli su altı görüntüleme ve telemetri araştırmaları için bir öncelik haline getirmektedir. Dolayısıyla, BRUV tespitleri kıyı rafının kullanımını doğrularken, LEK kaplan köpekbalıklarının daha geniş bir kıyı ve açık deniz peyzajını da kullanabileceğini öne sürmektedir; bu hipotez hedefli araştırmalarla doğrulanmalıdır.
\n
5 Sonuç notları
\n
Bu çalışmadaki çıkarımın mekansal ve zamansal kapsamı, her yöntemin özellikleriyle tanımlanmaktadır. BRUV tespitleri görünürlüğe, görüş alanına, yem çekim gücüne, yem bulutunun dağılmasına, akıntı yönüne, günün saatine ve türlerin örnekleme cihazına özgü tepkilerine bağlıdır (White ve diğerleri, 2013; Espinoza ve diğerleri, 2014). Büyük köpekbalıkları için sınırlı kamera görüş alanı özellikle önemlidir: bireyler yem bulutuna yaklaşarak kareye girmeyebilir, bu da MaxN’in yakındaki bireyleri eksik sayabileceği ve tespit edilememenin kesin yokluk olarak yorumlanmaması gerektiği anlamına gelir (MacKenzie ve diğerleri, 2002). 60 dakikalık analiz penceresi standart BRUV uygulamasını takip etmektedir (Currey-Randall ve diğerleri, 2020) ve büyük yırtıcı köpekbalıklarının stereo-BRUV’lere ortalama 26 dakika 40 saniye sonra ulaştığı kaydedilmiştir (Lester ve diğerleri, 2022). Ancak daha uzun süreli yerleştirmeler, büyük ve hareketli köpekbalıklarının tespit oranlarını artırabilir. Karayipler’de 60 dakikalık kayıtlar, daha uzun süreli yerleştirmelerde kaydedilen köpekbalığı bireylerinin yalnızca %45–50’sini yakalamıştır (Kohler ve diğerleri, 2025); genç beyaz köpekbalıklarının stereo-BRUV’lere ilk geliş süreleri ise 15 ila 299 dakika arasında değişmiştir (Harasti ve diğerleri, 2017). Dolayısıyla burada bildirilen tespit oranları muhafazakâr olabilir. Tespit oranları, yem, yerleştirme süresi, derinlik, görünürlük ve alan seçimi yaklaşımında farklılıklar gösteren BRUV çalışmaları arasında doğrudan karşılaştırılamaz. Diğer çalışmalarla yapılan karşılaştırmalar tanımlayıcı bir bağlam sunsa da, bolluk veya habitat tercihinin nicel bir karşılaştırması olarak yorumlanmamalıdır. Ayrıca, habitat kullanımındaki günlük döngüler, gündüz yapılan yerleştirmelerin günlük aktivite döngüsünün yalnızca bir kısmını yakalayacağı anlamına gelir (Ebert ve diğerleri, 2021). Küresel olarak BRUV yerleştirmelerinin yaklaşık %63’ünde köpekbalığı tespit edilememektedir (MacNeil ve diğerleri, 2020); bu nedenle büyük, hareketli ve en üst yırtıcı türler için düşük tespit sıklığı beklenir. Dolayısıyla burada bildirilen sonuçlar, Boa Vista rafının gündüz BRUV ile tespit edilebilen kullanımı olarak okunmalıdır.
\n
Tüm veriler tek bir yıllık döngüden (2025) geldiği için, mevsimsel düzen henüz yıllar arası değişkenlikten ayırt edilememekte ve Haziran ayındaki zirvenin tekrarlanıp tekrarlanmadığını doğrulamak için çok yıllı örnekleme gerekmektedir. Çevresel kovaryantlar aylık ürünlerden türetildiği için, değişkenliğin çoğu alanlar arasında değil, araştırma dönemleri arasında ortaya çıkmıştır ve tespitlerle olan çevresel ilişkiler, araştırma dönemi etkilerinden ayrılamaz; bu nedenle bunlar yalnızca korelatif olarak yorumlanmalıdır. Tespitlerin 29’undan 21’inin (%72) Haziran kampanyasından gelmesi nedeniyle, modelin pozitif sınıfı tek bir araştırma döneminin hakimiyetindedir; zirvenin zamanlamasını çevresel veya ekolojik nedenlerinden ayırmak, aynı alanlarda ve aynı araştırma dönemlerinde en az ikinci bir yıllık örnekleme ile birlikte yerleştirme düzeyinde in situ ölçümler gerektirecektir. Tespit sayısının azlığı (modelleme veri setinde 28, yani parametre başına yaklaşık 3,5 olay) güvenilir bir şekilde tahmin edilebilecek öngörücü değişkenlerin sayısını da sınırlamıştır; bu nedenle model katsayıları keşif amaçlı olarak kabul edilmelidir.
\n
LEK, her bir bilgi sahibinin deneyiminin mekansal ve zamansal kapsamını, türleri tanıma yeteneğini ve gözlemlerin nasıl saklanıp aktarıldığını yansıtır. Görgü tanığı ve ikinci el raporlar ayrı ayrı analiz edilmiş, tür tanımlaması bir tanımlama kartı kullanılarak değerlendirilmiş ve LEK’ten türetilen KDE’ler bolluk yüzeyleri olarak değil, göreceli mekansal sinyaller olarak yorumlanmıştır. Ancak, kaplan köpekbalığını doğru tanıyamayan 11 katılımcıdan gelen mekansal ve mevsimsel raporlar da dahil edilmiştir; bu nedenle türlerin yanlış tanımlanması LEK’ten türetilen örüntülerde bir belirsizlik kaynağı olmaya devam etmektedir. Belirsizlik, özellikle João Valente Bank gibi BRUV örnekleminin yapılmadığı açık deniz alanlarına ilişkin ikinci el raporlarda en yüksektir. Dolayısıyla bu tür raporlar, doğrulanmış habitat kullanımı olarak değil, gelecekteki araştırmalar için hipotezler olarak kabul edilmelidir.
\n
Resmi LEK araştırması, BRUV’lerin yerleşimine veya zamanlamasına etki etmemiştir. Ancak, balıkçılarla yapılan ön saha çalışmaları, Baía de Sal Rei, Derrubado ve Curral Velho’nun daha geniş BRUV tasarımına dahil edilmesini sağlamıştır; bu nedenle bu üç genel alan içindeki mekansal uyum kısmen beklenmedik bir durum olabilir. Yine de BRUV örnekleme bu alanların ötesine uzanmış ve adanın dört çeyreğini de kapsamıştır. Haziran ayındaki tespit zirvesi, birden fazla araştırma döneminde örneklenen alanlarda da devam etmiştir.
\n
Görüşmelerin çoğu (40’tan 35’i) Vila de Sal Rei’de gerçekleştirilmiş ve tüm katılımcılar erkektir; bu nedenle LEK’ten türetilen örüntüler, esas olarak orada görüşülen erkeklerin deneyimlerini ve avlanma alanlarını yansıtmakta olup, kadınların ve adanın diğer bölgelerinden gelen balıkçıların deneyimlerini eksik temsil edebilir.
\n
Vücut boyutu analizleri de BRUV görüntülerinden cinsiyet veya yaşın belirlenememesi nedeniyle sınırlı kalmıştır; bu durum, genç beyaz köpekbalıkları üzerine yapılan stereo-BRUV çalışmalarında da bildirilmiştir ve bu çalışmalarda boy tahminleri cinsiyet belirlemeye olanak tanımamıştır (Harasti ve diğerleri, 2017). Ayrıca örneklem boyutunun küçük olması nedeniyle boyut sınıfları tanımlayıcı kategoriler olarak ele alınmıştır.
\n
Bu hususlar, aşağıdaki bulguların yorumlanması gereken kapsamı belirlemektedir. Bu çalışma, kaplan köpekbalıklarının Boa Vista rafını düzenli olarak kullandığını, tespitlerin mekansal olarak yapılandırılmış ve Haziran ayında yoğunlaştığını ve hem genç hem de yetişkin boyutlardaki köpekbalıklarının bu rafı kullandığını göstermektedir. LEK ayrıca João Valente Bank gibi açık deniz alanlarını hedefli araştırmalar için öncelikli bölgeler olarak tanımlamaktadır. Köpekbalıklarına yönelik ekoturizm ilgisinin arttığı ve deniz mekansal koruma tartışmalarının devam ettiği bir takımadada, bu bulgular bu en üst yırtıcının doğu Atlantik’teki kanıta dayalı yönetimi için zamanında ve ampirik bir temel sağlamaktadır.
\n
Beyanlar
\n
Veri erişilebilirliği beyanı
\n
Bu makalenin sonuçlarını destekleyen ham veriler, yazarlar tarafından makul bir talep üzerine ve veri sahiplerinin izniyle temin edilecektir. Talepler ilk yazar (JSG) veya son yazar (RR) tarafından karşılanmalıdır.
\n
Yazar katkıları
\n
JSG: Metodoloji, Araştırma, Yazılım, Yazım – inceleme ve düzenleme, Kaynaklar, Proje yönetimi, Yazım – orijinal taslak, Veri kürasyonu, Formal analiz. MV-P: Yazım – orijinal taslak, Formal analiz, Yazım – inceleme ve düzenleme, Veri kürasyonu. JV: Fon sağlama, Yazım – inceleme ve düzenleme. EN: Yazım – inceleme ve düzenleme. RR: Yazım – inceleme ve düzenleme, Kavramsal tasarım, Denetim, Fon sağlama.
\n
Teşekkür
\n
Alan çalışmaları sırasında verdikleri destek için geminin kaptanı Angelito Monteiro ve Wilker da Silva’ya derin minnettarlığımızı sunuyoruz; bu çalışma onların yardımı olmadan mümkün olamazdı. Yüzlerce farklı mevsim ve deniz koşulu altında gerçekleştirilen BRUV yerleştirmelerindeki yetkinlikleri ve adanmışlıklarının ötesinde Angelito, Boa Vista sularına dair derin bilgisini —akıntıları, denizin değişken ruh halini ve su yüzeyinin altında yaşamın nerede toplandığını gösteren ince ipuçlarını— cömertçe paylaştı. Onun deneyimi ve sabrı yalnızca bu araştırmanın lojistiğini değil, aynı zamanda okyanus hakkındaki kendi anlayışımızı da şekillendirdi ve ondan öğrenme fırsatı bulduğumuz için onur duyuyoruz.
\n
Çıkar çatışması
\n
Yazar(lar), bu çalışmanın potansiyel bir çıkar çatışması olarak yorumlanabilecek herhangi bir ticari veya finansal ilişki olmaksızın yürütüldüğünü beyan etmiştir.
\n
Yazar RR, Frontiers’in yayın kurulu üyesi olduğunu beyan etmektedir; ancak bunun hakem değerlendirme süreci ve nihai karar üzerinde herhangi bir etkisi yoktur.
\n
Üretken yapay zeka beyanı
\n
Yazar(lar), bu makalenin hazırlanmasında üretken yapay zekanın kullanıldığını beyan etmiştir. Yazar(lar), dil düzenlemesi ve ifade netliği konusunda yardımcı olması için yapay zekadan yararlanmıştır.
\n
Bu makaledeki şekillerin yanında yer alan alternatif metinlerin (alt metin) tamamı Frontiers tarafından yapay zeka desteğiyle oluşturulmuştur ve yazarların mümkün olan yerlerdeki incelemesi de dahil olmak üzere doğruluğu sağlamak için makul çabalar gösterilmiştir. Herhangi bir sorun tespit ederseniz lütfen bizimle iletişime geçin.
\n
Yayıncının notu
\n
Bu makalede ifade edilen tüm iddialar yalnızca yazarlara aittir ve yazarların bağlı olduğu kurumların, yayıncının, editörlerin veya hakemlerin görüşlerini yansıtmak zorunda değildir. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisi tarafından yapılabilecek herhangi bir iddia, yayıncı tarafından garanti edilmez veya onaylanmaz.
\n
Ek materyaller
\n
Bu makalenin Ek Materyalleri çevrimiçi olarak şu adreste bulunabilir: https://www.frontiersin.org/articles/10.3389/fmars.2026.1937827/full#supplementary-material
\n
Özet
\n
Anahtar kelimeler
\n
Atlantik Okyanusu, elasmobranchlar, yerel ekolojik bilgi (LEK), stereo-BRUV, kaplan köpekbalıkları
\n
Atıf
\n
Saldanha-da-Gama J, Vizeu-Pinheiro M, Varela J, Nunes E ve Rosa R (2026) Stereo-ödüyle donatılmış uzaktan su altı video sistemi ve yerel ekolojik bilgi aracılığıyla doğu orta Atlantik biyolojik çeşitlilik merkezi olan Boa Vista Adası’nda (Cabo Verde) kaplan köpekbalığının (Galeocerdo cuvier) habitat kullanımının ortaya çıkarılması. Front. Mar. Sci. 13:1937827. doi: 10.3389/fmars.2026.1937827
\n
Alındı
\n
14 Temmuz 2026
\n
Değiştirildi
\n
11 Ekim 2026
\n
Kabul edildi
\n
16 Ekim 2026
\n
Yayınlandı
\n
16 Kasım 2026
\n
13 – 2026
\n
Edgardo Diaz-Ferguson, Estación Científica Coiba AIP, Panama
\n
Hadayet Ullah, Adelaide Üniversitesi, Avustralya
\n
Jennifer Keeping, Glasgow Üniversitesi, Birleşik Krallık
\n
© 2026 Saldanha-da-Gama, Vizeu-Pinheiro, Varela, Nunes ve Rosa.
\n
Bu, Creative Commons Atıf Lisansı (CC BY) şartları altında dağıtılan açık erişimli bir makaledir. Orijinal yazar(lar) ve telif hakkı sahibi(leri)nin belirtilmesi ve bu dergideki orijinal yayına kabul edilen akademik uygulamalara uygun olarak atıfta bulunulması koşuluyla, diğer platformlarda kullanılması, dağıtılması veya çoğaltılmasına izin verilir. Bu şartlara uymayan hiçbir kullanım, dağıtım veya çoğaltmaya izin verilmez.
\n
*İletişim: João Saldanha-da-Gama, [email protected]
\n
Bu makalede ifade edilen tüm iddialar yalnızca yazarlara aittir ve yazarların bağlı olduğu kurumların, yayıncının, editörlerin veya hakemlerin görüşlerini yansıtmak zorunda değildir. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisi tarafından yapılabilecek herhangi bir iddia, yayıncı tarafından garanti edilmez veya onaylanmaz.
\n
\n