Orijinal Araştırma Makalesi
Front. Ecol. Evol., 2 Kasım 2026
Bölüm: Doğal Tarih Görüşleri
Hacim 14 – 2026 | https://doi.org/10.3389/fevo.2026.1952606
- FC
Fernando C. Santiago 1*
- UB
Ulises Balza 2,3
- TI
Tomás I. Marina 1*
-
1. Centro Austral de Investigaciones Científicas (CADIC-CONICET), Ushuaia, Argentina
-
2. Instituto de Ciencias Polares, Ambiente y Recursos Naturales, Universidad Nacional de Tierra del Fuego, Antártida e Islas del Atlántico Sur (UNTDF – ICPA), Ushuaia, Argentina
-
3. Fundación Cóndor Andino Ecuador, Quito-Pichincha, Ecuador
Makale ölçütleri
Özet
Ancak, bu etkileşimlerin trofik yapısı ve öncü bir yırtıcı olarak insanların getirilmesinin topluluk düzeyindeki özellikleri nasıl etkilediği iyi anlaşılmamıştır. Bulgularımız, ağ mimarisinde ve diyet bileşiminde anlamlı bir kronolojik dönüşümü ortaya koymaktadır. Geç Pleistosen döneminde topluluklar, daha düşük etkileşim çeşitliliği ve megaotçullar ile birden fazla büyük yırtıcı etrafında yoğunlaşmış yüksek özelleşme göstermiştir. Megaafaünün yok oluşu ve orta Holosen dönemindeki ada izolasyonunun ardından, guanaco kalıcı bir temel otçul ve diyet çivisi olarak öne çıkmış; deniz kaynaklı leş ve kıyı kaynakları (mollusklar ve deniz aslanları) kritik enerji destekleri sağlamıştır. İnsanlar, çok çeşitli habitatlarda ağ mimarisini etkileyen son derece esnek genelci tüketiciler olarak hareket etmiştir. Steppe için, avcı-toplayıcılar geniş yelpazeli stratejiler benimserken, orman birikintileri kıyı kaynaklarına yönelik özelleşmiş bir bağımlılığı yansıtmıştır. Sonuç olarak, bu topluluk düzeyindeki çerçeve, yoğun çevresel değişimler ve ada izolasyonu rağmen, guanaco ve deniz necromass’ının binlerce yıl boyunca ekosistem ve geçim dayanıklılığını koruyan temel trofik kararlılaştırıcılar olarak hizmet ettiğini göstermektedir.
Giriş
Ancak bu varsayımın değerlendirilmesi, uzun süreli ve alan-zamanlı faunal birikim kayıtlarına ilişkin sistematik analizlerin azlığı nedeniyle zorunlu olarak zorlaşmaktadır.
Güney Amerika’da, Tierra del Fuego kara avcı-toplayıcılarının geçim stratejileri kapsamlı çalışmaların konusu olagelmiştir; burada özellikle develerin (kamgiller) avlanmasına yönelik özelleşmeleri (Borrero, 1990; Muñoz, 2004, 2005; Calás, 2009; Santiago, 2013; Sierpe, 2020) ve kıyı kaynaklarının, kuşların (Vázquez, 2024) ve kemiricilerin (Santiago ve ark., 2016) fırsatçı kullanımı öne çıkmaktadır. Geleneksel olarak bu birikimler, beslenme ve kaynak toplama stratejilerini çıkarsamak için taksonomik çeşitlilik ve göreceli bolluk indeksleriyle analiz edilmiş; bunun yanında guanaco’ların avlanmasına, daha az ölçekteyse kıyı kaynaklarına ve kuşlara güçlü biçimde odaklanılmıştır. Ancak bu geleneksel ölçütler, taksonomik kategorileri yalıtılmış varlıklar olarak ele aldığından etkileşimlerin sistematik yapısını ortaya koymaya yeterli değildir.
Çeşitlilik ve bolluk indeksleri tür temsilini gösterse de, insanlarla ortak kaynaklar için rekabet eden insan dışı tüketiciyi ya da belirli alan ya da zaman çerçevelerinde birden fazla tüketiciden en yüksek baskıyla karşı karşıya kalan av türünü ortaya koyamazlar. Beslenme stratejileri, türlerarası enerji akışlarından oluşan karmaşık bir ağ içinde işler (Pires, 2024). İnsanların topluluk düzeyindeki trofik rolünü anlamak, ancak yalnızca ne tükettiklerini değil, aynı zamanda diğer avcılarla ve birinc tüketiciyle nasıl rekabet ettiklerini ya da etkileşimde bulunduklarını analiz etmeyi gerektirir.
Antik ekolojik etkileşimlerin doğrudan ampirik gözlemleri, arkeolojik ve paleontolojik kayıta kaydedilmesi doğası gereği imkânsız olsa da, olasılığa dayalı özellik temelli ağ modelleri sağlam bir metodolojik çözüm sunar (Rohr ve ark., 2010; Pires ve ark., 2020). Kütle oranları ve yaşam alanı örtüşmesi gibi temel ekolojik kısıtlamalara dayanarak, rastlantısal ikili (bipartite) ağ yaklaşımları, koruma, geri kazanım, örnekleme veya taksonomik tanımdan kaynaklanan yanlıkları ortadan kaldırmaz; bunun yerine, birikimin kalitesi ve temsil yeteneği ışığında yorumlandığı sürece, az temsil edilen etkileşimleri tahmin etmek ve geçmiş toplulukların gizli topolojik yapısını yeniden inşa etmek için nicel bir çerçeve sunar; bu çerçeve, niş örtüşmesi, trofik rekabet ve kaynak merkeziliği gibi unsurları içerir (Yeakel ve ark., 2014; Dunne ve ark., 2016; Crabtree ve ark., 2021). Böyle ağ yaklaşımlarının ve nicel trofik çerçevelerin çeşitli veri türlerine uygulanması son on yılda giderek artan bir ivme kazandı (Pires, 2024 ve orada belirtilen kaynaklar). Ancak mevcut modellerin çoğu ya geniş ölçekte kıta düzeyindeki kalıplara odaklanmış (ör. Pires ve ark., 2015; Pires, 2024) ya da modern ekolojik topluluklarla sınırlı kalmıştır (ör. Rodriguez ve ark., 2022; Andrade ve ark., 2026); bu durum, çok millenye (bin yıla yakın) süren arkeolojik kayıtları dinamik, yaşam alanına özgü ikili ağlara açıkça entegre etmekte kritik bir boşluk bırakmaktadır (Pires ve ark., 2020; Moscardi, 2025 istisnaları dışında).
Kuzey Tierra del Fuego, bu boşluğu doldurmak için üstün bir ortam sunar; çünkü belirgin stratigrafik ve faunistik diziler, trofik mimarinin (insan kaynaklı ya da çevresel) değişimlerini ayrıntılı biçimde izlemeye olanak tanır. Tierra del Fuego’nun kuzeyindeki arkeolojik kayıtlar, bu açığı kapatmak için üstün bir fırsat sunar ve geç Pleistosen’den tarihsel çağlara kadar süreklilik gösteren insan varlığını belgeleyir (Santiago, 2024). Otaklarla ve orman-otak ekotonuyla baskın olan bu bölgede, kara avcı-toplayıcı topluluklar, guanaco (Lama guanicoe) merkezinde yer alan bir avcı-av etkileşimi ağına gömülüydü (Calás, 2009; Muñoz, 2004, 2005; Santiago 2013, 2024; Sierpe, 2020). Ancak, bu karmaşık etkileşim ağının uzaysal-zamansal değişimi ve avcı olarak insanın girişinin, benzeri görülmemiş bir davranışla topluluk düzeyi özelliklerini nasıl etkilediği Güney Amerika’da tam olarak anlaşılmamıştır (Pires et al., 2020; Moscardi, 2025).
Bu çalışmada, amacımız, geç Pleistosen’den geç Holosen’e (12.500-200 yıl önce) uzanan step ve orman habitatlarını kapsayan Tierra del Fuego’nun kuzeyindeki arkeolojik avcı-av etkileşimi ağını, bir özelliğe dayalı iki yönlü (bipartite) model aracılığıyla yeniden inşa etmektir. Özellikle: a) uzaysal-zamansal değişimleri değerlendiriyor; ve b) insanın ekolojik nişinin esnekliğini ve ağ yapısının, Güney Amerika’nın en güney noktasında yiyecek kaynağı erişilebilirliğine yanıt olarak ekonomik kararları nasıl biçimlendirdiğini analiz ediyoruz.
Yöntem
Çalışma alanı
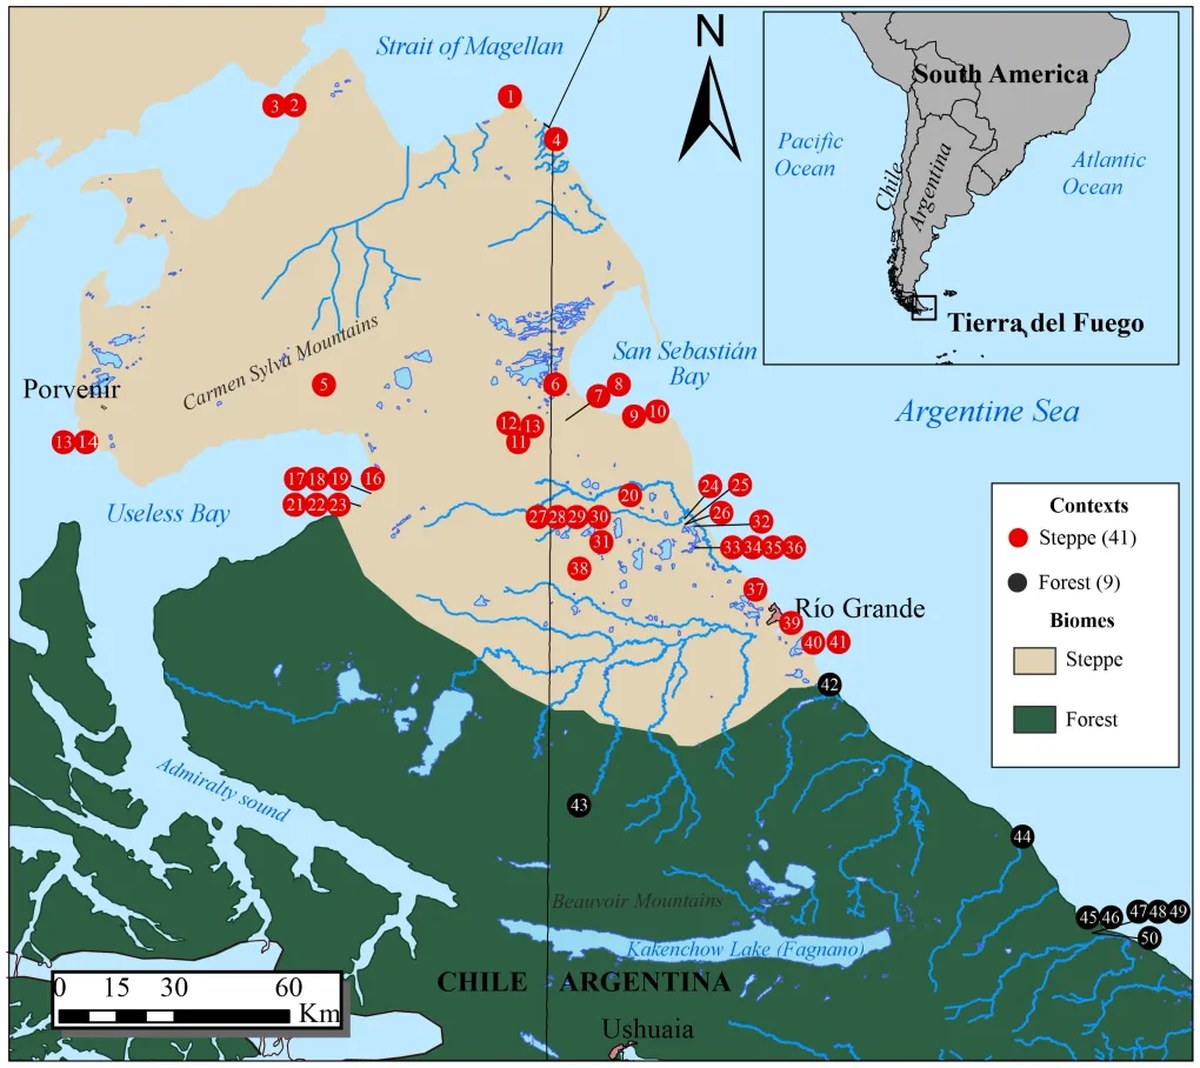
Fuejian takımadaları, Güney Amerika’nın en güney kesiminde 52° ile 56° güney enlemi arasında, doğu, batı ve güneyden okyanus sularıyla çevrili olarak yer alır. Kuzeyde ise Magellan Boğazı’nın suları onu kıtanın geri kalanından ayırır (Şekil 1).
Şekil 1
Bu sub-antarktik takımadalar, kıtasal Isla Grande ile güney ve batıya doğru dağılmış, çeşitli boyutlarda çok sayıda adadan oluşur. Toplam yüzölçümü yaklaşık 66.000 km² olup, bunun %70’ini Tierra del Fuego Adası (IGTDF) kaplar. Üçgen biçiminde olan ada, batı-doğu yönünde yaklaşık 400 km, kuzey-güney yönünde ise yaklaşık 300 km uzanır (Tuhkanen, 1992).
Politik olarak IGTDF, Arjantin’de Tierra del Fuego, Antártida e Islas del Atlántico Sur eyaletine ve Şili’de Tierra del Fuego eyaletine karşılık gelir. Çalışma alanı, Kakenchow (veya Fagnano) Gölü ve Fuegian Andleri tarafından temsil edilen biyocoğrafik engelin kuzeyinde kalan adayı içerir. Bu sınır, aynı zamanda Selk’nam’ın (Gusinde, 1990; Gerrard, 2015) yaklaşık tarihsel bölgesini ve zooarkeolojik kaydın benzersiz özelliklerini (Santiago ve Vázquez, 2012) de temsil eder.
Topografik açıdan, IGTDF’de Almirantazgo Sesi (batı yamacı) ve Kakenchow Gölü havzasını (doğu) içeren büyük bir çöküntüyle ikiye bölünen, iki belirgin ve iyi tanımlanmış bölü ayrılabilir. Çöküntünün kuzeyinde yer alan bölüde ovalar ve otlaklar baskındır, ancak Beauvoir Sırtları olarak bilinen dağ zinciri ve daha düşük rakımlı Carmen Sylva Sırtları tespit edilebilir. Diğer bölü doğası gereği dağlıktır ve adanın güney kısmını ile takımadadaki diğer tüm adaları kapsar. IGTDF, üç belirgin ve zıt biyom içerir: kuzeyde steppe, güneyde sub-antarktik karışık orman ve bunların arasındaki ekoton (Coronato et al., 2017). Seçilen bölge, çevresel açıdan farklı sektörlerin karşılaştırılabilmesi için iki alana ayrıldı: steppe ve orman.
Veri seti: zooarkeolojik kayıt ve tür özellikleri
Tierra del Fuego adasının (Argentina ve Chile) zooarkeolojik buluntularından, mekân-zaman kaynak-kullanıcı ağlarını yeniden inşa etmek amacıyla kapsamlı bir veri seti derledik. Farklı ekolojik ve tarihsel bağlamlardaki yapısal değişkenliği yakalamak için kayıtlar ayrık mekân-zaman bloklarına toplandı. Tarihler CALIB 8.2 programı ile kalibre edildi (Stuiver ve Reimer, 1993). Karasal memeli kemikleri ve kömür tarihleri için SHcal20.14c kalibrasyon veri seti (Hogg ve ark., 2020), deniz kabuğu kalıntıları veya deniz memeli kemikleri için ise MixedMarineSH kalibrasyon veri seti (Hogg ve ark., 2020) kullanıldı. Bu geniş dönemler içindeki her bireysel bağlamın kronolojik yerleşimi için olay tarihinin oluşumunu temsil ederken minimum, maksimum veya ortanca değerler yerine açıkça medyan kalibre edilmiş radyokarbon yaşı kullanıldı. Zamansal olarak veriler üç döneme ayrıldı: geç Pleistosen (12.500-11.700 yıl BP), orta Holosen (8326-4250 yıl BP) ve geç Holosen (4250-200 yıl BP). Elde mevcut zooarkeolojik veri seti daha geniş bir dönemi kapsasa da (örneğin 200-200 BP tarihli kayıtları da içerir), bu çalışma, karmaşık iki yönlü kaynak-kullanıcı ağlarını yeniden inşa etmek için yeterli veri içeren dönemlerle sınırlandırıldı. Mekânsal olarak çalışma alanı iki ana fitocoğrafik bölgeden oluşur: kuzaydaki yarı-kurak ot stepi ovaları ve güneydeki nemli karışık/her yeşil Nothofagus ormanları. Bunların arasındaki ekoton, stepi topluluklarıyla karışık yaprak döken Nothofagus ormanlarından oluşur. Hem stepi (Tuhkanen, 1992; Collantes ve ark., 1999) hem de orman (Allue ve ark., 2010; Coronato ve ark., 2022), bu çalışmada ayrıntılı olarak ele alınmayan iç farklara ve zamansal değişimlere sahiptir. Bu çalışmada göz önüne alınan 50 bağlamın her biri için mekân-zaman verileri ve destekleyici kaynaklar Ek Malzeme (Ek Tablo S1) içinde bulunabilir.
Verilen mekansal-zamansal ağdaki her taksonun göreli önemi, literatürde mevcut olan Belirtilmiş Örnek Sayısı (NISP) kullanılarak nicelendirildi (Ekleme Tablosu S1). Bir tür, aynı zamansal dönemde ve habitatte birden fazla yerde kaydedildiğinde, birleştirilmiş bir sayı üretmek için NISP değerleri toplandı. Sadece denizel taksonlar dışarıda bırakıldı; etkileşimli havuzlar kara türleri ile çapraz-habitat beslenme davranışları sergileyen türlerle (örneğin, denizel-kara alt yardımları) sınırlandı. Ortamların toplulukları ile ilgili türlerin NISP değerleri Ekleme Materyali‘nde (Ekleme Tablosu S2) bulunabilir.
İşlevsel ve morfolojik özellikler her taksona atandı; bunlar arasında maksimum vücut kütlesi (kg), beslenme stratejisi, beslenme habitati ve belirli trofik davranışlar (örneğin, seçici çürükçül, zorunlu leşçül veya bilinen insan kaynağı) yer alıyordu; bu sayede topluluk potansiyel tüketiciler ve kaynaklar olarak ikili yapıya kavuşturulabildi. Her taksona ait tüm bu özellikler Ekleme Materyali‘nde (Ekleme Tablosu S3) bulunabilir.
Kaynak-tüketici etkileşim olasılığının tahmini
Yırtıcı-tüketici ağlarının temel topolojik yapısını, kavramsal olarak (Rohr ve ark., 2010) ile Pires ve ark. (2020) uyarlaması olan olasılıksal, özelliğe dayalı boyutsal bir model kullanarak çıkardık. Modelin temel varsayımı, bir tüketici (c) ile bir kaynak (r) arasında gerçekleşecek bir kaynak-tüketici etkileşiminin olasılığının, log-dönüşümlü vücut kütlelerindeki farktan kaynaklandığıdır:
Yarımcı ya da son derece yaygın küçük bodurlu kaynakların toplam biyokütlesini hesaplamak için, yumuşakçaların etkili vücut kütlesi, tanımlanmış örnek sayısından (NISP) türetilen bireylerin minimum sayısı (MNI) temel alınarak etkileşim tahmininden önce ölçeklendirildi. MNI metriği, parçalanma örüntülerine karşı artmış dayanıklılık avantajı sunarak NISP’ye göre daha muhafazakâr bir tahmin sağlıyor (Grayson, 1984). Bu nedenle, Gastropoda’nın maksimum kütlesi toplam NISP’siyle (bir NISP’nin tek bir bireyi temsil ettiği varsayımıyla), Bivalvia’nın kütlesi ise NISP’sinin yarısıyla (bir NISP’nin tek bir kapağı temsil ettiği, yani bir bireyin yarısı olduğu varsayımıyla) çarpıldı.
Etkileşimin logiti (z) hesaplamak için kare fonksiyonuyla tanımlanan bir lojistik regresyon modeli kullanıldı: z = α + βx + γx². Son etkileşim olasılığı P şu şekilde hesaplandı:
Yok olmuş ekosistemlerin tamometrik kısıtlamaları doğası gereği belirsizlik içerdiğinden, tek ve deterministik bir ağ yapısına güvenmek yerine olasılıksal bir çerçeve kullandık. Model parametreleri (α, β, γ), Patagonya’nın güneyinde avcı-av ağları yeniden inşası yapan modellerden alınan 1.000 yinelemede düzgün dağılımlardan rastlantısal olarak çekildi (α~N(1.5, 0.25) β~N(-1.5, 0.25), γ~N(-0.75, 0.125) (Pires ve ark., 2020; Moscardi, 2025). 1.000 potansiyel ağdan oluşan bir küme simüle etmek, yeterli ölçüde geniş bir istatistiksel dağılım sağlayarak parametre varyansını etkili biçimde yakalamamızı ve her kaynak-tüketici çifti için kararlı bir medyan etkileşim olasılığını hesaplamamızı sağladı. Olasılıkları üretmeden önce etkileşimler ekolojik kısıtlamalarla kesin biçikte filtrelendi. Taksonlar ortak bir beslenme habitatını paylaşmıyorsa (çift-habitat beslenmesi yapabilme dışında) ya da kaynak, karada yaşayan tüketicilerin erişemeyeceği bir deniz etcili/pisivoruyrsa (bu çalışmanın kapsamı dışında) bağlantılar yasaklandı (P = 0).
İnsan beslenme etkileşimleri ve kaynakların oransal katkıları
Homo sapiens, Patagonya ekosistemlerinde yüksek ölçüde esnek, genelci bir tüketici işlevi gördü (Pires ve ark., 2020). İnsan tropik etkileşimlerinin yalnızca allometrik ölçeklendirme kullanılarak modellenmesi, yüksek davranışsal özerklikleri ve işbirlikçi dinamikleri yansıtması için özel kurallar gerektirir. Bu nedenle etkileşimler, beş bireyden oluşan koordineli bir birim varsayılarak (Gusinde, 1990) işbirlikçi avlanma senaryosu altında değerlendirildi; bu da birleşik etkili bir kütlenin 325 kg olduğu anlamına gelir. İnsan etkileşimleri, iki mekanizma aracılığıyla standart allometrik sınırlamaları geride bıraktı. İlk olarak, açıkça zorunlu deniz leşleri (yani deniz necromass) olarak sınıflandırılan kaynaklarla yapılan leşçilik etkileşimlerine mutlak 1.0 etkileşim olasılığı (olağan maksimum değer) atandı. İkinci olarak, insan kaynakları olarak bilinen veya potansiyel kaynaklar olarak tanımlanan taksonlar için (Ek Tablo S3) avlanma olasılığı, standart olasılıksız boyut-oranı modeli kullanılarak hesaplandı ve yalnızca insan işbirlikçi kütlesinin kaynak kütlesini aştığı durumlarla koşullu olarak sınırlandı.
Farklı kaynakların insan diyetine göreli katkısını tahmin etmek için, her bir taksonun toplam insan in-strength’e (giriş gücü) göreli katkı hesaplanarak bir insan ego-ağı analizi yürütüldü. Bu toplam insan in-strength, insanların tükettiği tüm kaynakların medyan etkileşim olasılıklarının toplanmasıyla elde edildi (yani aşağıdaki bölüm medyan hesaplamasını açıklamaktadır). Deniz leşlerine atanan mutlak 1.0 olasılığının toplam insan in-strength hesaplamasını yoğun biçimde etkilemesi nedeniyle, oranlı diyet bileşimi iki ayrı analiz senaryosu altında değerlendirildi: biri deniz necromass’ı içeren, diğeri ise onu içermeyen.
Kaynak-tüketici ikili ağlarının yeniden inşası
Son yapı, tüm 1.000 simülasyon boyunca her kaynak-tüketici çifti için ortanca etkileşim olasılığı hesaplanarak oluşturuldu. Ekolojik gerçekçiliği güvence altına almak için bir bipartit konsansüs filtresi uygulandı: etkileşimler yalnızca, olasılığın ≥ 0,01 olduğu stochastik simülasyonların oranının %50’sini aştığı durumlarda korundu. Elde edilen olasılıksal ağlar, ardından ampirik olarak geçersiz kaynak-tüketici etkileşimlerini (örneğin Anas georgica – Anas flavirostris, Chillina patagonica – Abrothrix hirta, Brachiodontes purpuratus – Falconidae) etkili biçimde elemek üzere uzman değerlendirmesine tabi tutuldu.
Şunu belirtmek gerekir ki, yeniden inşa edilen ağlar, belirli etkileşimlerin zamansal/uzaysal açıdan kesin bir kaydından ziyade bir yaklaşımdır; özellikle böyle ilişkilerin bağlama bağlı doğası ve trofik insan etkileşimlerinin eklenmesi göz önüne alındığında. Aynı zamanda zooarkeolojik kaydın, ağdaki temel biyolojik türlerin yeterince kapsamlı olduğunu ya da en azından onların temsilci bir örneğini oluşturduğunu varsayıyoruz (Dunne et al., 2016; Crabtree et al., 2021). Sonuç olarak, bu çalışma olasılıksal bir çerçeve kullanarak, topluluğun beklenen trofik mimarisini, onu oluşturan türlere dayanarak tanımlamayı amaçlamaktadır.
Ağ karmaşıklığı ve yapısının analizi
Yeniden inşa edilen kaynak-tüketici bipartit ağlarının karmaşıklığını ve yapısını değerlendirmek için, her stochastik tekrar için küresel ağ metriklerinin bir kümesini hesapladık. Farklı matris boyutları boyunca yapısal tahminleri stabilize etmek amacıyla, incidence matrisleri mutlak bir etkileşim faktörü (E) ile ölçeklendirildi; bu faktör, her iki trofik düzeydeki tür zenginliğinin çarpımı ile bir sabitin çarpımı olarak tanımlanmıştır (E = S_tüketici × S_kaynak × 3) (Pires et al., 2020).
Bağlantısallık ya da gerçekleşen etkileşimlerin oranı; etkileşim çeşitliliği (etkileşim olasılıklarının Shannon çeşitliliği); uzman tüketicilerin beslenmesinin genelci tüketicilerin beslenmesinin alt kümesi olma derecesini ölçen ağırlıklı iç içe geçme (Moscardi, 2025); tüketici-kaynak oranı; tüketici başına ortalama kaynak sayısı anlamına gelen genelcilik; kaynak başına ortalama tüketici sayısı anlamına gelen savunulabilirlik; ve tüketiciler ile kaynaklar için ayrı ayrı hesaplanarak genişletilmiş işlevsel alandaki niş ayrışması ve paylaşılan etkileşim ortaklarının örtüşmesi tahmin edilen işlevsel tamamlayıcılık nicelendirildi. Ağ özellikleri üç dönem ve iki yaşam alanında incelendi: geç Pleistosen – Ova, orta Holosen – Ova, geç Holosen – Ova ve geç Holosen – Orman.
Tüm analizler R 4.5.3 kullanılarak (R Core Team, 2026) gerçekleştirildi; çoğunlukla bipartite (v2.23; (Dormann et al., 2008) paketi kullanıldı. R koduna şu adresten erişilebilir: https://github.com/TomasMarina/ArqueoRedesTDF.
Sonuçlar
Zooarkeolojik birikimdeki zamansal ve mekânsal değişimler
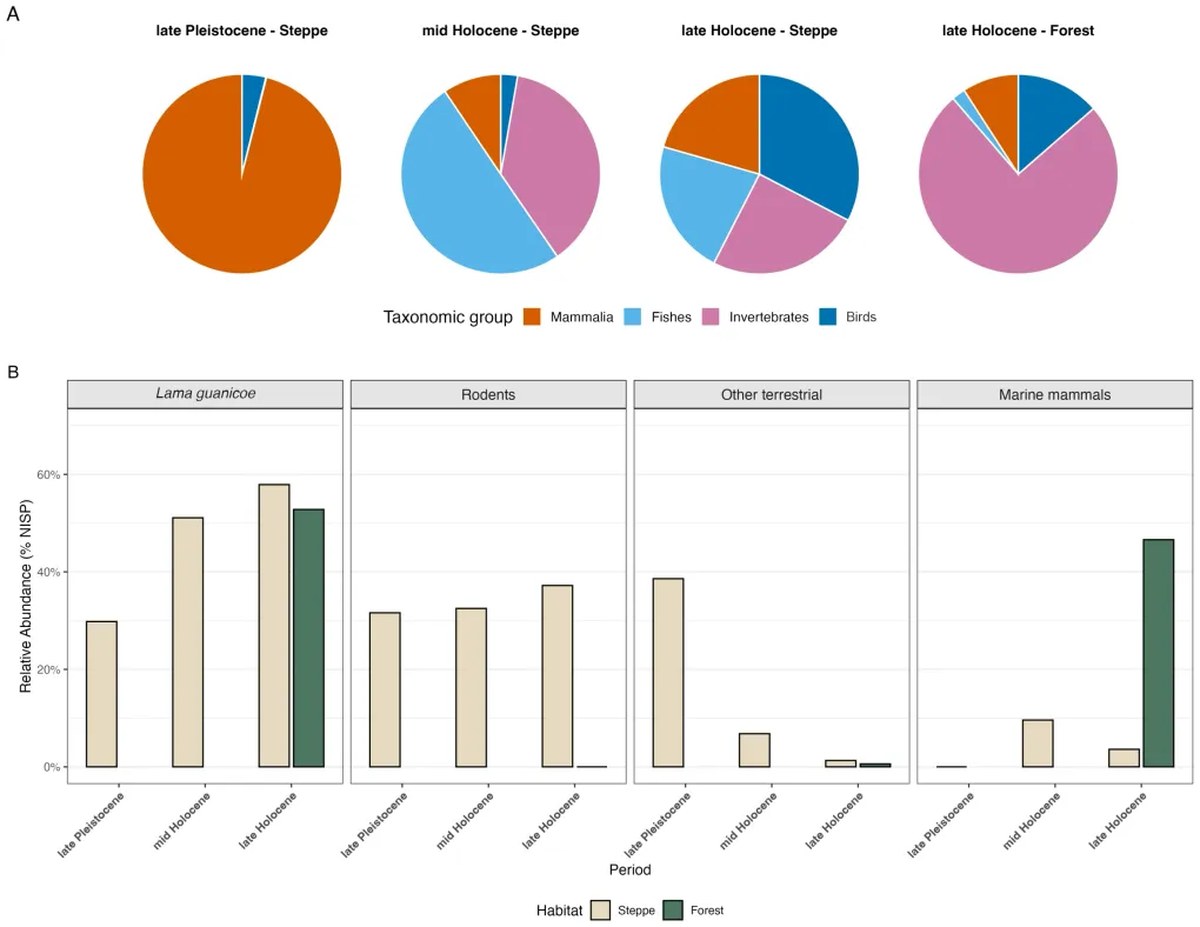
Arkeozoolojik kayıt ile karakterize edilen hayvan birikimi, ova alanından 41 bağlamdan, ormandan ise dokuz bağlamdan olmak üzere toplam 147.509 örnekten oluşuyordu. Bu toplamın 2.070 örneği belirsiz olarak sınıflandırıldı ve sonraki hesaplamalar ile modellerden çıkarıldı. Taksonomik olarak belirlenen örnekler arasında (n=145.439) omurgasızlar en yaygın taksonu oluşturdu ve %40,38’ini (n=58.725) oluşturdu; onu %31,06’lık oranla (n=45.168) memeliler izledi. İhtiyofaunal kalıntılar (balıklar) %17,14’lük oranla (n=24.921) üçüncü büyük grubu oluştururken, kuş kalıntıları (kuşlar) en az yaygın olanı temsil etti ve %11,43’ünü (n=16.625) oluşturdu. Bu dağılım, bu ekolojik açıdan farklı ortamlarda hem karasal hem de deniz kaynaklarının çeşitli biçimlerde yararlanılarak kullanıldığını ortaya koyuyor (Şekil 2A).
Şekil 2
Zooarkeolojik birikim, örneklem boyutunun zamanla belirgin biçimde arttığını gösteriyor; toplam NISP değeri Geç Pleistosen’de (3 bağlam) 2.623’ten Orta Holosen’de (8 bağlam) 19.332’ye, Geç Holosen’de ise (39 bağlam) 123.484’e ulaşarak zirveye ulaşıyor. Göreli bolluk (% NISP) açısından Geç Pleistosen memelilerle (%85,5) öne çıkarken, balıklar tamamen yoktu. Orta Holosen’de balıklar kaydın %52,8’ini oluşturacak biçimde en baskın grup haline gelerek büyük bir değişim yaşandı ve omurgasızlarda (%33,3) artış görüldü. Geç Holosen’de tüm kategoriler en yüksek mutlak NISP değerlerine ulaşmasına rağmen, göreli oranlar daha dengeli hale geldi; omurgasızlar ve memeliler birikimin sırasıyla toplam NISP’nin %42,3’ü ve %33,1’ini oluşturdu (Şekil 2B).
Faunal sömürü örüntüleri habitatlara göre belirgin biçimde farklıydı. Ova birikimi, çoğu omurgalı taksonda daha yüksek mutlak bollukla karakterize ediliyordu; memeliler (NISP = 38.869) ve balıklar (NISP = 22.620) bölgenin toplam kaydının %64’ünden fazlasını oluştururken, ardından omurgasızlar (NISP = 21.222) ve kuşlar (NISP = 12.538) geliyordu. Tersine, orman, omurgasızlara açık bir bağımlılıkla karakterize ediliyordu; bunlar kaydın baskın kategorisi olup toplamın %74,7’sini (NISP = 37.503) oluştururken, memeliler (NISP = 6.299), kuşlar (4.087) ve balıklar (NISP = 2.301) bu habitat içinde en düşük mutlak ve göreli değerlerini kaydediyordu.
Orbagasızların sömürüsüne gelince, faunal birikim analizi, H. sapiens‘nin öncelikle iki ana türü hedeflediğini ve çevredeki manzayaya göre belirgin bağımlılık örüntüleri gösterdiğini ortaya koyuyor. Mytilus chilensis, Ova ortamında en temsili takson olup (%59,9) onu Nacella türleri (%30,3) izliyor. Tersine, Orman ortamında Nacella türleri birikimi baskın biçimde yönlendirirken (%85,4), M. chilensis %13,1 oranında katkı sağlıyor. Kalan taksonlar her iki ortamda da küçük oranları temsil ediyor; çoğu ise ihmal edilebilir ya da hiç var olmayan bir mevcudiyet gösteriyor (Ekleme Tablosu S2).
Memeli kaydı yalnızca memelilerle sınırlandığında, geç Pleistosen birikiminin (NISP = 2.235) başlıca guanaco (Lama guanicoe) (29,8%) ve diğer karasal memelilerden (38,2%) oluştuğu, deniz memelilerinde ise tamamen yok olduğu görüldü. Orta Holosen’de (NISP = 1.411) guanaco kaydı %51,1’e çıkarken, ikinci dereceli karasal taksonlar %6,9’a geriledi; deniz memelileri ise en yüksek kronolojik sıklığına (9,6%) ulaştı. Geç Holosen’de (NISP = 23.890) guanaco en yüksek bolluğuna %63,6 ile ulaştırken, deniz memelileri ve diğer karasal fauna sırasıyla %2,4 ve %1,9’a düştü. Bu arada, kemirgen oranları tüm dizide süreklilik gösterdi: geç Pleistosen’de %31,6, orta Holosen’de %32,5 ve Geç Holosen’de %32,1 (Şekil 2B).
Belirsiz memel kalıntılarının dışlanmasıyla elde edilen memeli veri seti, yaşam alanına göre ayrıştırıldığında zıt faunal dağılımlar ortaya koydu. Bozkırda (Toplam NISP = 23.809) guanaco baskın taksondu (54,9%), onu kemirgenler (36,4%), diğer karasel memeliler (5,2%) ve düşük sıklıkta deniz memelileri (3,6%) izledi. Buna karşılık, ormanda (Toplam NISP = 5.393) guanacolar (52,8%) ve deniz memelileri (46,6%) neredeyse tüm kaydı kapsayan ortak baskınlık gösterdi (Şekil 2B).
Genel olarak, bozkırın zooarkeolojik kaydı daha süreklidir; veriler geç Pleistosen’den Geç Holosen’e kadar uzanır ve bu da farklı dönemlerde üç iki yönlü besin ağıının yeniden inşasına olanak tanımışken, orman yaşam alanında yalnızca Geç Holosen için bir ağ yeniden inşa edilmiştir (Şekil 3).
Şekil 3
Yeniden inşa edilen kaynak-tüketici ağlarının karmaşıklığı
Dört yeniden inşa edilen kaynak-tüketici çift yönlü ağının (Şekil 3), her biri 1.000 simülasyon ile karakterize edilmesi, 10 uzaysal-zamansal blok için benzer sayıda tüketici anlamına gelmektedir; yalnızca geç Holosen – Otlak ağı 16 tüketici göstermiştir. Öte yandan, kaynakların toplam sayısı için ortanca, geç Pleyistosen – Otlak ağında 13’ten geç Holosen – Otlak’taki 45 trofik türe kadar değişkenlik göstermiştir. Otlak habitatlarını temsil eden ağlar arasındaki etkileşimlerin toplam sayısı için ortanca, sırasıyla geç Pleyistosen, orta Holosen ve geç Holosen’de 42, 60 ve 138 etkileşimlik kronolojik bir artış sergilemiştir.
Tüm trofik etkileşimlerin (yani ortanca olasılığın) dönem-habitat başına (geç Pleyistosen – Otlak, orta Holosen – Otlak ve geç Holosen – Otlak ile geç Holosen – Orman) kapsamlı listesi Ek Materyal‘de (Ek Tablo S4) bulunabilir.
Kaynak-tüketici ağlarının bağlantı düzeyi ve yapısı
Otlak habitatlarını karakterize eden çift yönlü ağlar arasında, analizimiz geç Pleyistosen’den orta ve geç Holosen’e kadar belirgin bir yapısal seyir ortaya koymuştur (Şekil 4). Geç Pleyistosen ağı, en yüksek bağlantı düzeyi ve tüketici-kaynak oranıyla eşleşmiş, ancak en düşük etkileşim çeşitliliği, iç içe geçme, genelilik ve savunmasızlık göstermiştir. Ayrıca hem tüketiciler hem de kaynaklar için en düşük işlevsel tamamlayıcılık sergilemiştir. Geç Holosen’e gelindiğinde ağ, analiz edilen neredeyse tüm metrikler için ters bir desen sergilemiştir: bağlantı düzeyi ve tüketici-kaynak oranları en düşük seviyelere ulaşırken, etkileşim çeşitliliği, genelilik, savunmasızlık ve işlevsel tamamlayıcılık en yüksek seviyelere ulaşmıştır. Dikkat çeken bir diğer nokta ise iç içe genmenin geç Pleyistosen’den orta Holosen’e kadar artması ve geç Holosen’e benzer şekilde yüksek düzeylerde kalmasıdır.
Şekil 4
Son Holosen döneminde yaşam alanları arasındaki karşılaştırma, ova ve orman ağları arasında karmaşıklık ve yapı açısından önemli farklar ortaya koydu (Figure 4). Ova ağı, tüketici ve kaynak açısından daha yüksek işlevsel uyumlulukla birlikte belirgin ölçüde yüksek etkileşim çeşitliliği, genellik ve duyarlılıkla karakterize ediliyordu. Buna karşılık orman ağı daha yüksek bağlantılılık ve iç içe geçme düzeyi gösterdi. Bu farklara rağmen, tüketici-kaynak oranı iki yaşam alanında da karşılaştırılabilir düzeydeydi.
Kaynak-insan besin zinciri ilişkileri
Kaynakların toplam insan beslenmesine göre göreli katkısı (Homo sapiens etkileşim gücünün toplamı) olarak tahmin edilen kaynak-insan etkileşim olasılılarına dayanarak nicelendirildi (Figure 5; Supplementary Table S5). Erken Pleistosen – Ova döneminde deniz kökenli necromass bulunmuyordu ve bu nedenle iki senaryo arasında özdeş profiller oluştu. Toplam oransal katkı neredeyse tamamen dört taksondan oluşuyordu: Lama guanicoe (%33,23), Camelidae (%33,23), Vicugna vicugna (%21,97) ve Dusicyon avus (%7,24). Orta Holosen – Ova döneminde deniz kökenli necromass dahil edildiğinde bu kaynak toplam oransal katkıyı %33,75 oranında oluşturuyordu; geri kalan tanımlanmış bileşim ise Lama guanicoe (%21,09), Mytilus chilensis (%18,82) ve Genypterus blacodes (%6,58)’den oluşuyordu. Deniz kökenli necromass hariç tutulduğunda Lama guanicoe (%31,83) ve Mytilus chilensis (%28,41) en büyük bireysel oranları temsil ediyordu. Son Holosen – Ova döneminde deniz kökenli necromass göz önüne alındığında, böyle bir kaynak toplam beslenme oranının %17,74’ünü oluşturuyordu; tanımlanmış diğer tür öğeleri büyük ölçüde Arctocephalus australis (%12,83), Lama guanicoe (%11,08), Mytilus chilensis (%10,58) ve Nacella (%7,75)’den oluşuyordu. Deniz kökenli necromass hariç tutulduğunda Ovis aries (%15,60), Arctocephalus australis (%15,60), Lama guanicoe (%13,48) ve Mytilus chilensis (%12,86) tanımlanmış özel öğeler arasında en yüksek bireysel değerleri gösterdi.
Figure 5
Geç Holosen döneminde kaynak katkı profili, deniz kökenli ölülerin dahil edilmesine bağlı olarak yaşam alanlarına göre farklılıklar göstermiştir. Deniz kökenli ölüler ormanda (%22,72) steppe göre (%17,74) daha yüksek bir oran temsil etmiştir. Ormanda, geri kalan tanımlanan kaynaklar dört taksonla sınırlıdır: Nacella (%17,89), Arctocephalus australis (%16,42), Lama guanicoe (%14,19) ve Mytilus chilensis (%11,55). Öte yandan, steppe’deki dört en önemli belirli öğe şunlardır: Ovis aries ve Arctocephalus australis (ikisi de %12,83), Lama guanicoe (%11,08) ve Mytilus chilensis (%10,58). Deniz kökenli ölüler göz ardı edildiğinde, ormanda dört birincil tanımlanan kaynak daha dengesiz bir dağılım göstermiştir: Nacella (%23,15) ve Arctocephalus australis (%21,25), diğer iki kaynağa (Lama guanicoe -%18,36- ve Mytilus chilensis -%14,95-) göre daha yüksek değerler sergilemiştir. Tersine, steppe nispeten dengeli ve eşit dağılan oranlar göstermiştir: Ovis aries ve Arctocephalus australis (ikisi de %15,60), Lama guanicoe (%13,47) ve Mytilus chilensis (%12,86), kolektif olarak insan kaynaklarına toplam katkının yaklaşık %60’ını oluşturmıştır.
Tartışma
Guanaco ve deniz kökenli ölüler besin ağlarında kronolojik ve yaşam alanı kaymalarını yönlendiriyor
Bu çalışmada yeniden inşa edilen kaynak-tüketici ağları, Magellan Bölgesi ekosistemlerinin besin mimarisini zaman içinde incelemek için ilk nicel çerçeveyi sağlamaktadır. Tierra del Fuego’nun kara ana karasından izole olması (Ponce ve ark., 2011), karasal kaynak-tüketici ağını, pumalar (Puma concolor) veya gri tilkiler (Lycalopex gymnocercus) gibi çeşitli avcı gruplarının yerleşimini sınırlayan çevresel kısıtlamalar biçimlendirmiştir (Mac Allister ve ark., 2024).
Geç Pleistosen döneminde Tierra del Fuego, Güney Amerika kıtasının hâlâ bir yarımadasıydı ve bölgede birçok büyük tür yaşardı. Megaherbivorlar, Güney Amerika’nın güneyinde beslenme kaynağı açısından en önemli öğeydi (Prates ve ark., 2025; Labarca ve ark., 2026; Potter ve ark., 2026). Bulgularımız, Tierra del Fuego’da birkaç özel avcı türü ve daha yüksek bir çift parmaklı tür çeşitliliğinin, nispeten daha benzersiz av-cı interaksyonları ürettiğini gösteriyor; burada guanaco, mevcut olan megaherbivörlerden yalnızca biri durumundaydı. Guanaco için tahmini üç avcı türü belirlendi: insanlar ile 200-360 kg ağırlığında iki kedi türü olan Panthera ve Smilodon. Buna karşılık insanlar, Vicugna (başka bir devegiller familyası üyesi, 45 kg), Hippidion (300 kg’dan fazla ağırlığında) atı ve diğer devegiller familyası üyelerini avlardı. Bu kritik av-cı interaksyonları, trofik iki katmanlı ağaçta gözlemlenen düşük interakson çeşitliliğini, düşük iç içe geçmeyi ve kaynağın ve tüketicinin (yani benzersiz av-cı interaksyonlarının yüksek oranı) düşük işlevsel tamamlayıcılığını açıklamaya yardımcı olabilir.
Orta Holosen döneminde Tierra del Fuego, Magellan Boğazının açıldığı 10.200 yıl öncesine (Ponce ve ark., 2011) ait, kökleşmiş bir adal sistemiydi. Megafaunanın yok oluşundan sonra (Barnosky ve Lindsey, 2010; Villavicencio, 2016) guanaco, bölgedeki tek megaotçul hayvan olarak kaldı ve yalnızca insanlar bu hayvanların avcısıydı. Geç Pleistosen’den itibaren zooarkeolojik kayıtlarda guanaco kalıntılarının artması ile modellerimizdeki kalıcı besin zinciri rolü, bu türün bölge dinamiklerini yönlendiren bir anahtar tür olarak önemini vurguluyor. Bu durum, bu popülasyonlarda belirgin bir adalı iz bıraktığını düşündüren guanacoların azalmış genetik çeşitliliğiyle de uyumludur (León ve ark., 2024). Bu örüntü, yalnızca Avrupa sömürgeleştirilmesinden sonra belirginleşen Patagonya-Patagonien basurası ve ekotonuna yönelik uzun süreli uyumları yansıtıyor olabilir. Orta Holosen döneminde adallaşma, deniz seviyesinin günümüzden yaklaşık 2 metre daha yüksek olduğu 7000 yıl kadar öncesinde (Candel ve ark., 2020; Coronato ve ark., 2022) daha yüksek düzeydeydi. Bu daha küçük ve daha izole edilmiş adal sistemi, yeniden oluşturulan besin zinciri ağlarında deniz memelilerinin (yani karaya vurmuş balinaların tüketimi ve aslan balıklarının üreme alanlarında avlanması), balıklar ve yumuşakçaların ortaya çıkmasıyla uyumludur. Hem guanaco’nun kalan ve artan önemi hem de deniz kökenli besin öğelerinin ortaya çıkması, ağ etkileşim çeşitliliği, genelcilik, savunmasızlık ve kaynak ile tüketici arasındaki işlevsel tamamlayıcılıkta artışa yol açan topluluk düzeyinde değişimlere neden olmuş olabilir.
Geç Holosen döneminde güncül ekolojik koşulların yerleşme eğilimi görüldü. Guanako önemini sürdürerek arttı ve türetilmiş deniz kemik etiyle birlikte en önemli besin öğesi haline geldi. Aslıında, kıyıya yakın ormanlarda bol miktarda deniz kaynaklı besin öğesi kayıtları mevcuttur. Bugün bu bölgede hâlâ oldukça fazla deniz aslanı ve deniz kürkü (fur) foklarının toplandığı sahiller bulunmaktadır (Milano ve ark., 2020a, 2020b). Bulgularımız, deniz kaynaklı kemik etinin Holosen boyunca ekosistemin kaynak-tüketici dinamikleri açısından çok önemli olduğunu (yani, megafaunanın yok oluşundan sonra) ve insan beslenmesinin katkısının tahmini olarak %18-33’ünü oluşturduğunu göstermektedir. Bu rakamlar bir alt tahmin olabileceğinden, yalnızca başka türlü elde edilmesi mümkün olmayan çok büyük hayvanlar üzerinden tahmin edilmişlerdir. Bununla birlikte, fur fokları (Arctocephalus australis) ve guanako kendisi de aynı zamanda çürütücü beslenme yoluyla elde edilebilirdi. Ayrıca, omurgasızlardan balinalara kadar çeşitli sürüklenmiş hayvanlardan gelen deniz kemik eti Patagonya’nın güneyinde yaygındır (Alvarado-Rybak ve ark., 2020).
Kemirgenler, incelenen üç dönemde de önemli ve kalıcı bir kaynak olmuştur. Önemli kuşların (yani, Bubo magellanicus, Geranoaetus sp.) tutarlı varlığı ve çeşitliliğine katkıda bulunmuş olabilirler. Abrothrix olivacea, A. hirta, Reithrodon auritus ve Euneomys chinchilloides, adada günümüzde bulunan ve yeniden oluşturulan ikili besin zinciri ağlarında tutarlı biçimde ilgili olan dört kemirgendir. A. hirta ve A. olivacea muhtemelen Son Buzul Maksimumundan sonra popülasyonlarını güneye doğru genişletmişlerdir (Giorello ve ark., 2021; Valdez ve D’Elía, 2021) ve ardından, Pleistosen’in sonunda besin zinciri ağında iyi yerleşmiş olan Fuejiyen çorba ovalarında bol, yeni bir kaynak haline gelmiş olabilirler.
İnsanların son derece esnek bir avcı olarak dahil edilmesi, muhtemelen basitleştirilmiş bir ortamla ilişkili riskleri azaltan bir karmaşıklık düzeyi getiriyor. Bulgularımız, insan ekolojik nişinin deniz ve karasal kaynakların dahil edilmesiyle, özellikle de deniz necromass’ının (ölü organizma artıklarının) sömürülmesiyle genişlediğini gösteriyor. Deniz leşinin modellerimize dahil edilmesi, Orta ve Erken Holosen’de Pleistosen’e kıyasla kaynakların etkileşim çeşitliliğini, kırılganlığını ve işlevsel tamamlayıcılığını artırarak ağılın mimarisini önemli ölçüde değiştirdi. Bu, ayak tabanlı avcı-toplayıcı teknolojileriyle karasal avcılığın değişkenliğini dengeleyen yüksek enerjili, düşük riskli bir kaynak sağladı (Briz I Godino ve ark., 2018).
Tarı ve orman trofik ağıları arasındaki gözlemlenen farklar, insan gruplarının çevresel kısıtlamalara yalnızca tepki veren aktörler değil, aynı zamanda nişlerini aktif olarak bölüşen aktörler olduğunu öne sürüyor. Tarada daha yüksek etkileşim çeşitliliği ve genellik, geniş yelpazeli beslenme stratejisini işaret ediyor olabilirken, orman birikintileri deniz omurgasızları, memeliler ve kuşlara yönelik daha özelleşmiş bir bağımlılığı yansıtıyor. Bu, avcı-toplayıcıların, kıta Patagonya’sında önerildiği gibi (Pires ve ark., 2020) ağılın yapısını düzenleyebildiğini ve çevresel değişkene yanıt olarak habitatlar ve kaynaklar arasında geçiş yaparak sistemin istikrarını teşvik edebildiğini gösteriyor. Her iki habitatın da tamamlayıcı bir biçimde, belki de mevsimsel olarak kullanılmış olması muhtemeldir (Lanata, 1995; Vázquez, 2024).
Bölgenin yaya avcı-toplayıcılarının trofik dinamiği
Çalışma döneminin başında, geç Pleistosen’de, insan besin kaynağı büyük ölçüde Vicugna vicugna, Lama guanicoe ve Camelidae gibi develere ait türlerin (kamelid) hâkimiyetindeydi. Sıkça Camelidae olarak geniş kategoride sınıflandırılan birkaç kamelid kalıntısının taksonomik durumu, yalnızca kemik tanımlamada bir metodolojik sınırlamayı yansıtmıyor. Eski DNA kanıtları, genetik açıdan belirgin dönüşümler ve ayrı geç Pleistosen kamelid soylarının yok oluşu ortaya koydu; bu soylar sonunda günümüz Lama guanicoe popülasyonları tarafından yerini aldı (Metcalf ve ark., 2016). Dolayısıyla, bu evredeki trofik ağ tamamen karasal bir nitelik taşıyor ve kıyısal ya da çürük beslenen deniz kaynaklarına dair bir kayıt içermiyordu. Bu tutum, modern kıyı hatlarının henüz kararlılığa ulaşmadığı bir paleocoğrafya (Ponce ve ark., 2011) ya da insan gruplarının yalnızca iç kesim steppe bölgeleri içinde faaliyet gösterdiği bir ortam (Labarca ve ark., 2026) ile örtüşüyor. Bu dönemde toplam katkı, neredeyse yalnızca yukarıda adı geçen büyük karasal makrofauna kaynakları arasında paylaşıldı ve modelleme sonuçlarımıza göre insan gelirinin %95’inden fazlasını oluşturdu. Bu güçlü kasabi odaklanma, Patagonya ve Güney Konisi’ndeki çeşitli iyi belgilenmiş avlanma alanlarında (örneğin Piedra Museo, Cueva Lago Sofía 1, Cueva Fell ve Cueva del Medio) erken avcı-toplayıcıların mega fauna türleriyle etkileşime girdiği ve bunları avladığı, Güney Amerika genelinde gözlemlenmiş daha geniş kalıplarla uyumlu bir tutumdur (Bampe ve ark., 2022, 2023; Labarca ve ark., 2026).
Orta Holosen dönemi, insanların kıyı ve deniz ekosistemlerine kesin entegrasyonunu işaretleyen uyumsal bir geçiş döneminin öne çıktığı bir zaman dilimini ortaya koyar (Morello ve ark., 2009; Salemme ve ark., 2014; Borrazzo ve ark., 2025). Bu süreç, pembe kuyruksuz balık (Genypterus blacodes) gibi balıkları ve deniz kuşlarını da kapsar; bu da sistematik alçak derecede avcılığın veya toplanmanın başlangıcının ve kuşların düzenli biçimde yararlanılan bir kaynak haline gelmesinin işaretiidir. Dikkat çekici olan, çalışmalarımızın, koanın (guanaco) toplam tüketim içindeki oransal katkısında Pleistosen’in sonuna göre keskin bir azalma göstermesidir. Neredeyse tek başına baskın bir kaynak işlevini kaybeden koan, insanların toplam tüketiminin yaklaşık %20 ile %25’ini temsil eden dengeli bir bileşene dönüşür. Bu açıdan, deniz çürümesi (necromass) baskın bir kaynak haline gelmiş ve toplam katkının yaklaşık %30 ile %35’ini absorb etmiştir. Bu durum, alternatif kaynaklara yönelik tahmini baskıyı belirgin biçimde azaltan, yüksek kârlı ve fırsatçı bir stratejiyi betimler. Öte yandan, deniz necromass’ı trofik modele dahil edilmediğinde, enerji yeniden dağılımı gerçekleşmiştir: Şili midesinin (Mytilus chilensis) aktif toplanması ve koanın avlanması, besin kaynağı olarak oransal katkılarını ikiye katlamıştır. Bu bağlamda, koan bölgedeki tek büyük otçul hayvan haline gelmiş ve tüm yerel yırtıcılar ve olası çürükçüller için trofik rolünü güçlendirmiştir. Bu ekolojik baskınlık, genelci tüketiciler için dar bir kaynak kanalı yaratmıştır: İnsan grupları, geçim stratejilerini koan popülasyonlarının mekân-zaman dinamikleri ve öngörülebilir davranışları etrafında ayarlamak zorunda kalmıştır. Bulgularımız, Moscardi ve ark. (2020) tarafından belirtilen Holosen döneminde koan popülasyonlarındaki artışla uyumlu olmakla birlikte, aynı zamanda Patagonya genelinde insanlarla koanın eş-evrimiyle (L’Heureux, 2006) da örtüşmektedir.
Erken Holosen’in sonlarına doğru, beslenme çeşitliliğinin en yoğun biçimde ortaya çıktığı görülür; özellikle Güney Amerika deniz fokesi (Arctocephalus australis) ve penguenler (birçok takson) ile çok sayıda başka kuş ve balık türü bu beslenmeye dahildir. Benzer şekilde, ormanlık alanlarda deniz fokesi ve yumuşakçalar (hem midyeler hem de limpetler) özellikle dikkat çekicidir; bu durum, özellikle deniz kökenli organik kütlenin analizden çıkarıldığı durumlarda, ormanlık ortamlarda kıyı kaynaklarının yoğun biçimde sömürüldüğünü yansıtır.
Sadece memeli kayılarına odaklanıldığında, avcı-toplayıcıların geçim stratejilerinin zaman içindeki değişimi açıkça görüldür. Geç Pleistosen, nispeten dengeli ve geniş yelpazeli bir karasal bağımlılığı işaret eder; bu durum Orta Holosen’de deniz kökenli organik kütleyi de içeren karma bir beslenme modeline dönüşür. Orta Holosen’den beri “izole” edilmiş gibi görülen, trofik ağlarda daha yüksek etkileşim çeşitliliği ve işlevsel tamamlayıcılık sergileyen bir sistemde bile guanaco, insanlar için güvenilir bir kaynak olarak işlev görmüştür. Küresel adalı modeller, adaların insan tarafından yerleşmeye açılmasının genellikle memeli ve kuşların hızlı nesli tükenme dalgalarını tetiklediğini gösterse de (Steadman, 1995; Alcover et al., 1998; Martin and Steadman, 1999; Wood et al., 2017), elde edilen veriler, guanaconun Holosen boyunca bir trofik dengeleyici olarak işlev görmüş olabileceğini gösteren özgün bir yapısal örüntü ortaya koyar. Bu yüksek kaliteli kaynak, diğer bazı araştırmacıların öne sürdüğü gibi (Franklin, 2022) nesli tükenmedi; bunun yerine Western koyunların (Ovis aries) tanıtımına kadar (Gerrard, 2015) temel kaynak olarak kalmıştır.
Ayrıca, kemirgenlerin frekanslarındaki değişmezlik, doğal aşırılaşma birikiminin veya kazınma girişiminin sabit bir tabanı olduğunu göstermekte ve bunları gerçek besin desteği yerine potansiyel taphonomik yağmur (Borrero, 1988) olarak nitelendirmektedir. Örnekteki küçük cricetidler büyük ölçüde taphonomik gürültüyü temsil etsede, Magellan tuco-tuco’sunun (Ctenomys magellanicus) iyi belgilenmiş sömürüsü göz önüne alındığında, kemirgenlerin bu yüksek frekansının dikkatlice değerlendirilmesi gerekmektedir. Bölgeden gelen zooarkeolojik kanıtlar (Calás, 2009; Santiago ve ark., 2016) ile etnografik kayıtların (Gusinde, 1990) bir araya gelmesi, bu orta boy kemirgenlerin sistematik olarak tüketildiğini göstermektedir. Dolayısıyla, geç Holosen döneminde Ctenomys‘nin belirgin varlığı, yalnızca doğal aşırılaşma birikimini yansıtmaktan öte, düşük sıralı, yüksek öngörülebilir küçük avları dahil edecek şekilde beslenmede bilinçli bir genişlemeyi ve guanaco merkezli ekonominin kalıcı bir tamamlayıcısını işlevini görmüştür.
Sınırlamalar ve gelecek perspektifleri
İlk olarak, çok geç Holosen’e (özellikle son 200 yıla) ait kayıtlar son derece azdır ve bu da güvenilir iki yönlü ağların oluşturulmasını engellemektedir. Bu açığın kapatılması, bu zaman ölçeğinde yoğunlaştırılmış arkeolojik saha çalışmalarını veya bu kısa dönemde meydana gelen hızlı ekolojik değişimleri yakalamak için etnografik (Dunne ve ark., 2016) ve/veya biyolojik ve ekolojik kayıtların (Rodriguez ve ark., 2022; Andrade ve ark., 2026) dahil edilmesini gerektirmektedir; özellikle egzotik türlerin yaygın şekilde insan kaynaklı tanıtımından sonra (Valenzuela ve ark., 2014). Modelimiz, geç Holosen Bozkırında insan besin kaynağı olarak koyunu (Ovis aries) dahil etmekle birlikte, katkı oranı, ek tanıtılan türler göz önüne alındığında değişebilir. Son yüzyıllar için daha yüksek zaman çözünürlüğüne sahip gelecek araştırmalar, egzotik taksonların Tierra del Fuego’nun birleşik kara-deniz ekosistemlerinin yapısını ve işlevselliğini nasıl değiştirdiğini tam olarak açıklamak için kritik önem taşımaktadır.
İkinci olarak, modelimiz deniz necromass’ının insan tüketimi için maksimum etkileşim olasılığını atarken, orta boy karacaralar ve And kondorları gibi doğal çürükçüller için deniz ve karaya ait çürük etleri besin kaynağı olarak göz ardı etmiştir (Balza ve ark., 2024). Bu basitleştirme, toplam necromass akışını düşük tahmin etmiş olabilir; örneğin, Tierra del Fuego’da iklim kaynaklı kitlesel ölüm olayları adadaki 30.000’i geçen guanaco popülasyonunun yıllık %24’üne kadarını alabilir ve belirli bir yılda tahmini 1.500 ile 7.200 arasında ceset üretmiştir (Montes ve ark., 2000). Çürük et temizlenmesi küresel ekolojik ağlarda hâlâ az çalışılmış bir süreç olsa da (Sebastián‐González ve ark., 2023), modelleme çerçevemiz, bu yeniden inşa edilen ağlarda necromass’ın temel önemini ve insan beslenmesine göreli katkısını başarıyla yakalamıştır. Gelecek çalışmalar, deniz memelilerinin sığma olayları (Goodall ve ark., 2008; Otley, 2012) ve guanacoların aşırı hava koşullarına bağlı ölümleri (Montes ve ark., 2000; Belardi ve Rindel, 2008) gibi pulse olayları entegre ederek çürükçül olasılıklarını açıkça parametreleyecek ve böylece yüksek enlemlerdeki ekosistemlerde çürükçül dinamiklerini anlama konusunda ilerleyecektir. Son olarak, medyan kalibre edilmiş yaşların kullanımı bağlamları geniş, ayrık zamanlı bloklar halinde birleştirmek için sağlam bir çerçeve sunduysa da, bu yaklaşım radyometrik tarihlerin doğuştan gelen belirsizliğini sıkıştırır. Süreklilik gösteren ekolojik izleri inceleyen veya daha geniş zaman penceresinde çalışan gelecek çalışmalar, bu kronolojik belirsizliği açıkça modelleyerek büyük ölçüde yararlanacaktır. Bu bağlamda, her olay tarihinin arka dağılımını tahmin etmek (örneğin, Noukpoape ve ark. (2025) tarafından önerilen olay tarihi modelini kullanmak) ve ortaya çıkan eğril belirsizliğini duyarlılık analizlerine dahil etmek, antik trofik ağların zamanlı dinamiklerini iyileştirmek için kritik bir metodolojik yol temsil etmektedir.
Sonuç
Birleşik bipartite ağ analizi, Tierra del Fuego’da (Güney Amerika’nın güneyinde) ilk kez hem omurgalı hem de omurgasız zooarkeolojik veri setlerini bir araya getirerek, insan-çevre etkileşimlerini değerlendirmek için yüksek çözünürlüklü bir çerçeve sunmaktadır. Bu ağ tabanlı yaklaşım, geleneksel zooarkeolojik ölçümler olan NISP ve MNI’nin ötesine geçerek insanları, kaynak-tüketici etkileşimlerinden oluşan karmaşık bir ağın bütünleşik bir düğümü olarak açıkça konumlandırmaktadır (Pires ve ark., 2020; Moscardi, 2025). İnsanları kaynak-tüketici etkileşimlerinden oluşan karmaşık bir ağın bütünleşik bir düğümü olarak konumlandıran bu yaklaşım, yalnızca ne tükettiklerini değil, aynı zamanda diğer yırtıcılarla ve birincil tüketiciyle nasıl rekabet ettiklerini veya etkileşime girdiklerini analiz etmeyi olanaklımaktadır. Burada, koanın ve deniz kemiklerinin, Geç Pleistosen’den Geç Holosen’e kadar olan dönemde Güney Amerika’nın güneyindeki bozkır ve orman habitatlarında topluluk düzeyindeki değişimlerin ana sürücileri olarak işlev görmüş ve insan beslenmesinin temel kaynaklarını oluşturmuş olduğunu göstermekteyiz.
Açıklamalar
Veri erişilebilirliği açıklaması
Çalışmada sunulan özgün katkılar, makalenin Ek Materyali‘nde yer almaktadır. Daha ayrıntılı bilgiler için ilgili yazarlara başvurulabilir.
Ahlak açıklaması
Yerel mevzuat ve kurumsal gerekliliklere uygun olarak, insanları içeren çalışmada etik onay gerekmemiştir. Ulusal mevzuat ve kurumsal gerekliliklere uygun olarak, katılımcılardan veya katılımcıların yasal velileri/akrabelerinden bu çalışmaya katılmaları için yazılı bilinçli onay gerekmemiştir. Etik onay gerekmemiştir çünkü çalışma yalnızca arkeolojik ve paleontolojik fauna kalıntılarına (kemik örnekleri) dayanmakta ve yaşayan insan katılımcıları veya canlı hayvanları içermemektedir.
Yazar katkıları
FS: Doğrulama, Metodoloji, Kavramsal Tasarım, Veri Düzenleme, Orijinal Metin Yazımı, İnceleme & Düzenleme, Araştırma. UB: Orijinal Metin Yazımı, Kavramsal Tasarım, İnceleme & Düzenleme, Araştırma. TM: Biçimsel Analiz, Orijinal Metin Yazımı, Veri Düzenleme, Kavramsal Tasarım, Metodoloji, Araştırma, İnceleme & Düzenleme.
Finansman
Yazar(lar), bu çalışma ve/veya yayını için herhangi bir finansal destek alınmadığını bildirmiştir.
Çıkar çatışması
Yazar(lar), bu çalışmanın ticari veya olası bir çıkar çatışması olarak değerlendirilebilecek herhangi bir ilişkiden uzak gerçekleştirildiğini bildirmiştir.
Üretken yapay zeka beyanı
Yazar(lar), bu metnin hazırlanmasında üretken yapay zekanın kullanıldığını bildirmiştir. Metnin anlaşılırlığının artırılması ve R script verimliliğinin optimize edilmesi için üretken yapay zeka kullanılmıştır.
Bu makaledeki figürlerle birlikte sağlanan alternatif metinler (alt text) Frontiers tarafından yapay zekanın desteğiyle oluşturulmuş olup, mümkün olduğunca yazarların incelemesini de içeren doğruluğu sağlamak için makul çabalar gösterilmiştir. Herhangi bir sorun tespit ederseniz, lütfen bizimle iletişime geçin.
Yayıncı notu
Bu makalede ifade edilen tüm iddialar yalnızca yazarların görüşlerini yansıtır ve bağlı oldukları kuruluşların, yayıncının, editörlerin veya hakemlerin görüşlerini mutlaka yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
Ekleme materiali
Bu makalenin Ekleme Materiali çevrimiçi olarak şu adreste bulunabilir: https://www.frontiersin.org/articles/10.3389/fevo.2026.1952606/full#supplementary-material
Ekleme Tablosu 1
Bu çalışmada değerlendirilen 50 bağlamın her biri için mekân-zaman verileri ve destekleyici kaynaklar. Tarihler CALIB 8.2 programı (Stuiver ve Reimer, 1993) kullanılarak kalibre edilmiştir. Karasal memeli kemikleri ve kömür tarihleri için SHcal20.14c kalibrasyon veri seti (Hogg ve ark., 2020) kullanılmıştır. Deniz kabuğu kalıntıları veya deniz memeli kemikleri için ise MixedMarineSH kalibrasyon veri seti (Hogg ve ark., 2020) kullanılmıştır.
Ek Tablo 2
Bağlamların toplulukları ile ilgili türlerin NISP değerleri.
Ek Tablo 3
Tür özellikleri: vücut kütlesi, beslenme habitatı, beslenme stratejisi ve insan kaynağı olarak önemi.
Ek Tablo 4
Dönem-habitata göre tahmini besin zinciri etkileşimleri: geç Pleistosen – bozkır, orta Holosen – bozkır ve geç Holosen – bozkır ile geç Holosen – orman.
Ek Tablo 5
Dönem-habitata göre insan beslenmesine özgü oransal katkılar: geç Pleistosen – bozkır, orta Holosen – bozkır ve geç Holosen – bozkır ile geç Holosen – orman.
-
Alcover J. A. Sans A. Palmer M. (1988).
The extent of extinctions of mammals on islands. J. Biogeography25, 913–918. doi: 10.1046/j.1365-2699.1998.00246.x
-
Allue C. Arranz J. A. Bava J. O. Beneitez J. M. Collado L. Garcia-Lopez J. M. (2010).
Caracterización y cartografía fitoclimáticas del bosque nativo subantártico en la Isla Grande de Tierra del Fuego (Patagonia, Argentina). Forest Systems19 (2), 189–207.- Google Scholar
-
Alvarado-Rybak M. Toro F. Escobar-Dodero J. Kinsley A. C. Sepúlveda M. A. Capella J. et al. (2020).
50 Years of Cetacean Strandings Reveal a Concerning Rise in Chilean Patagonia. Sci. Rep.10, 9511. doi: 10.1038/s41598-020-66484-x
-
Andrade C. D., Sepúlveda T., Rivera C., Aldea C., Marina T. I. (2026).
Deniz beslenme mimarisi ve Magellan Boğazında gizli ekolojik bağlantılar: temel türler ve ekosistem dayanıklılığı. Oikos2026, e11711. doi: 10.1002/oik.11711
-
Balza U., Dodino S., Lambertucci S. A., Kusch A., Raya-Rey A. (2024).
İzole ve uzak bölgelerde bir çürükçülün eski beslenme ağının korunması. Perspect. Ecol. Conserv.22, 367–373. doi: 10.1016/j.pecon.2024.10.001
-
Bampi H., Barberi M., Lima-Ribeiro M. S. (2022).
Güney Amerika’da megaфаuna av sahaları: kritik bir değerlendirme. Quat. Sci. Rev.298, 107851. doi: 10.1016/j.quascirev.2022.107851
-
Bampi H., Barberi M., Lima-Ribeiro M. S. (2023).
Av sahası veri tabanı: Zaman ve mekân boyunca insan-mega fauna etkileşimlerini birleştiren bir veri kümesi. Data in Brief47, 108998. doi: 10.1016/j.dib.2023.108998
-
Barnosky A. D., Lindsey E. L. (2010).
Güney Amerika’da Kvaterner mega fauna yok oluşunun insanların gelişi ve iklim değişikliği ile ilişkisi. Quat. Int.217, 10–29. doi: 10.1016/j.quaint.2009.11.017
-
Belardi J. B., Rindel D. (2008).
Güney Patagonya’da kış stresi nedeniyle guanaco (Lama guanicoe) popülasyonlarında kitlesel ölüm süreçlerinin tawonomik ve arkeolojik yönleri. Quaternary Int.180, 38–51. doi: 10.1016/j.quaint.2007.08.021
-
Borrazzo K., Borrero L. A., Ozán L. I., Parise M. V., L’Heureux G. L. (2025).
Kabuk lenslerinin tawonomisi ve kökeni: Cerro Bandurrias lokalitesi (Tierra del Fuego, Arjantin). PEAPA25 (2), 84–106. doi: 10.5710/PEAPA.15.07.2025.545
-
Borrero L. (1990). “Fuego Patagonia kemik birikimi ve guanaco avcılığının topluluk özelliği problemi” Hunter Recent past (Unwin Hyman) içinde, 373–407.
- Google Scholar
-
Borrero L. A. (1988). “Tafonomía regional,” De Procesos, Contextos Y Otros Huesos (Buenos Aires: ICA) içinde. Sección Prehistoria. FFyL. UBA, 9–15.
- Google Scholar
-
Briz I, Godino I, Ahedo V, Álvarez M, Pal N, Turnes L, Santos J. I. ve ark. (2018). Güney Amerika’nın en güneyindeki avcı-toplayıcı hareketlilik ve teknolojik peyzajlar: istatistiksel öğrenme yaklaşımı. R. Soc Open Sci. 5, 180906. doi: 10.1098/rsos.180906
-
Calás E. (2009). La Subsistencia De Los Cazadores-Recolectores Terrestres Del Holoceno Medio Y Tardío En El Norte De Tierra Del Fuego (Santiago de Chile: Universidad de Chile).
- Google Scholar
-
Candel M. S, Díaz P. E, Borromei A. M, Fernández M, Montes A, Santiago F. C. (2020). Fuejiyen çölündeki bir Lateglacial-Holocene çökelti kesitinin çoklu analizleri (Arjantin’in kuzeyindeki Tierra del Fuego): iklim değişkenliği ve deniz seviyesi dalgalanmalarıyla ilişkili kıyı peyzajı evrimi açısından sonuçlar. Palaeogeogr. Palaeoclimatol. Palaeoecol. 557, 109941. doi: 10.1016/j.palaeo.2020.109941
-
Collantes M. B, Anchorena J, Cingolani A. M. (1999). Tierra del Fuego’nun çölleri: toprak verimliliği ve neme tarafından kontrol edilen bitki türü bileşimi ve büyüme biçimi kalıpları. Plant Ecolog. 140, 61–75. doi: 10.1023/a:1009727629777
-
Coronato, A., Borromei, A. M., Ponce, J. F., Candel, S., Musotto, L., Fernández, M. et al. (2022). Holosen dönemi çevresel değişimler Arjantin’in Füanya ormanları ve çayırları. Güney Amerika Jeoloji Bilimleri Dergisi, 119, 103952. doi: 10.1016/j.jsames.2022.103952
-
Coronato, A., Mazzoni, E., Vázquez, M., Coronato, F. (2017). Patagonya: Fiziki Coğrafyasına Bir Özet (Río Gallegos: Patagonia Güney Ulusal Üniversitesi).
- Google Scholar
-
Crabtree, S. A., Dunne, J. A., Wood, S. A. (2021). Ekolojik ağlar ve arkeoloji. Antik Dünya, 95, 812–825. doi: 10.15184/aqy.2021.38
-
Dormann, C. F., Gruber, B., Freund, J. (2008). Bipartite paketinin tanıtımı: Ekolojik ağların analizi. R News. Viyan, 8 (2), 8–11. Çevrimiçi erişim: https://journal.r-project.org/articles/RN-2008-010/RN-2008-010.pdf (Erişim tarihi: 22 Nisan 2026).
- Google Scholar
-
Dunne, J. A., Maschner, H., Betts, M. W., Huntly, N., Russell, R., Williams, R. J. et al. (2016). Kuzey Pasifik deniz besin ağılarında insan avcı-toplayıcıların rolleri ve etkileri. Bilimsel Raporlar, 6, 21179. doi: 10.1038/srep21179
-
Franklin, W. L. (2022). Guanacoların Ana Karadan Patagonya üzerinden Tierra del Fuego Adına yerleşimi: Yürüyerek, yüzererek mi, yoksa kano ile mi? Geo: Coğrafya ve Çevre, 9, e00110. doi: 10.1002/geo2.110
-
Gerrard, C. (2015). Zaten Bizi Nasıl Öldüreceklerini Bilmiyorlar: Tierra del Fuego Selk’nam’lılar: Tarih, Toprak ve Kimlik (Posadas: Misiones Ulusal Üniversitesi).
- Google Scholar
-
Giorello F. M., D’Elía G., Lessa E. P. (2021). Quaternary yerleşim ve nüfus patlamasının genomik izleri: Patagonya-Füeya bölgesinde Tierra del Fuego’da ayrı bir güney sığınağı yok. J. Biogeogr. 48, 2656–2670. doi: 10.1111/jbi.14231
-
Goodall N., Della Bianca N., Boy C., Benegas L. G., Pimper L., Riccialdelli L. (2008). Argentina’da Tierra del Fuego kıyısında 33 yıl içinde kıyıya vuran veya tesadüfen yakalanan küçük balinaların gözden geçirilmesi. Int. Whaling Commission’s 60th Annu. meeting Santiago Chile.
- Google Scholar
-
Grayson D. K. (1984). Quantitative Zooarchaeology: Topics in the Analysis of Archaeological Faunas (Orlando San Diego New York [etc.]: Academic press).
- Google Scholar
-
Gusinde M. (1990). Los Indios De Tierra Del Fuego. Los Selk’Nam (Buenos Aires: Centro Argentino de Etnología Americana).
- Google Scholar
-
Hogg A. G., Heaton T. J., Hua Q., Palmer J. G., Turney C. S., Southon J. et al. (2020). SHCal20 güney yarımküre kalibrasyonu, 0–55.000 yıl cal BP. Radiocarbon 62, 759–778. doi: 10.1017/RDC.2020.59
-
L’Heureux G. L. (2006). El estudio arqueológico del proceso coevolutivo entre las poblaciones humanas y las poblaciones de guanaco en Patagonia meridional y norte de Tierra del Fuego. La Plata: Universidad Nacional de La Plata. doi: 10.35537/10915/4449
-
Labarca R., Prieto A., Massone M. (2026). Geç Pleistosen’de güney Güney Amerika’nın ilk insan yerleşiminin geçimi ve yerleşimi: Güney Patagonya’daki Cueva Lago Sofía 1 ve Tres Arroyos 1’in hayvan kalıntıları kanıtları. J. Quaternary Sci. 41, 237–259. doi: 10.1002/jqs.70039
-
Lanata, J. L. (1995). Paisajes Arqueológicos Y Propiedades Del Registro En El Sudeste Fueguino (Buenos Aires: UBA).
- Google Scholar
-
León, F., Pizarro, E. J., Noll, D., Pertierra, L. R., Gonzalez, B. A., Johnson, W. E. et al. (2024). History of Diversification and Adaptation from North to South Revealed by Genomic Data: Guanacos from the Desert to Sub-Antarctica. Genome Biol. Evol. 16. doi: 10.1093/gbe/evae085
-
Mac Allister, M. E., Figueroa, C. E., Mazzei, R., Tintorelli, R. G., Acosta, D. B., Gallo, O. et al. (2024). Genetic diversity and diversification patterns of puma (Puma concolor) populations in the southern end of the species distribution. Front. Ecol. Evol. 12, 1436320. doi: 10.3389/fevo.2024.1436320
-
Martin, P., Steadman, D. W. (1999). Prehistoric Extinctions on Islands and Continents. Extinctions near time: causes contexts consequences (Boston, MA: Springer), 17–55.
- Google Scholar
-
Metcalf, J. L., Turney, C., Barnett, R., Martin, F., Bray, S. C., Vilstrup, J. T. et al. (2016). Synergistic roles of climate warming and human occupation in Patagonian megafaunal extinctions during the Last Deglaciation. Sci. Adv. 2, e1501682. doi: 10.1126/sciadv.1501682
-
Milano, V. N., Grandi, M. F., Schiavini, A. C. M., Crespo, E. A. (2020a). Recovery of South American fur seals from Fuegian Archipelago (Argentina). Mar. Mam Sci. 36, 1022–1032. doi: 10.1111/mms.12686
-
Milano, V. N., Grandi, M. F., Schiavini, A. C. M., Crespo, E. A. (2020b). Sea lions (Otaria flavescens) from the end of the world: insights of a recovery. Polar Biol. 43, 695–706. doi: 10.1007/s00300-020-02672-9
-
Montes, C., De Lamo, D. ve Zavatti, J. (2000). Argentina, Tierra del Fuego’nun farklı çevrelerinde guanaco (Lama guanicoe) bolluk dağılımı. Mastozoología Neotropical 7, 23–31.
- Google Scholar
-
Morello, F., Borrero, L. A., Torres, J., Massone, M., Arroyo, M., McCulloch, R. ve ark. (2009). “Holoceno’nun erken ve orta döneminde Tierra del Fuego’nun arkeolojik kaydının değerlendirilmesi,” Salemme, M., Santiago, F., Álvarez, M., Piana, E., Vázquez, M. ve Mansur, E. (eds), Arqueología De La Patagonia Una Mirada Desde El Último Confín. (Ushuaia: Editorial Utopías), 1031–1047.
- Google Scholar
-
Moscardi, B. F. (2025). Dinámica Poblacional De Guanacos, Cambios En La Red Trófica Y Subsistencia Humana En El Noroeste De Patagonia Durante El Pleistoceno Final – Holoceno (La Plata: Universidad Nacional de La Plata).
- Google Scholar
-
Moscardi, B., Rindel, D. D. ve Perez, S. I. (2020). Patagonia’da insan beslenmesinin evrimi, megafaunanın yok oluşundan sonra Lama guanicoe’nun yayılmasıyla şekillendi. J. Archaeol. Sci. 115, 105098. doi: 10.1016/j.jas.2020.105098
-
Muñoz, S. A. (2004). Güney Amerika’nın adalı çevrelerinde memeli sömürüsü. Zooarchaeology South America. BAR Int. Ser. 1298. (Archaeopress), 123–138.
- Google Scholar
-
Muñoz, A. S. (2005). Güney Patagonia’da Isla Grande de Tierra del Fuego’da insan-hayvan ilişkisine ilişkin güncel bakış açıları. Before Farming 2, 1–14.
- Google Scholar
-
Noukpoape, K. M., Lanos, P. ve Dufresne, P. (2025). Kronoloji kurulumunda olay tarihi modeli için yeni muhafazakar ve sağlam bir Bayesian yaklaşımı. Archaeometry 67, 84–109. doi: 10.1111/arcm.13063
-
Otley H. (2012).
Falkland (Malvinas) Adaları’ndaki deniz memelileri topluluğunun bileşimi, Güney Atlantik’in güneybatısı. Rev. biología marina y oceanografía47, 537–551. doi: 10.4067/s0718-19572012000300015
-
Pianka E. R. (1966).
Tür çeşitliliğinde enlem gradyanları: Kavramlara bir bakış. Am. Nat.100, 33–46. doi: 10.1086/282398
-
Pires M. M. (2024).
Ekolojik ağların Pleistosen yok oluşu tarafından yeniden yapılandırılması. Annu. Rev. Earth Planet. Sci.52, 133–158. doi: 10.1146/annurev-earth-040722-104845
-
Pires M. M., Koch P. L., Fariña R. A., De Aguiar M. A. M., Dos Reis S. F., Guimarães P. R. ve ark. (2015).
Pleistosen megafauna etkileşim ağları insanların gelişinden sonra daha savunmasız hale geldi. Proc. R. Soc B.282, 20151367. doi: 10.1098/rspb.2015.1367
-
Pires M. M., Rindel D., Moscardi B., Cruz L. R., Guimarães P. R., dos Reis S. F. ve ark. (2020).
Megafauna yok oluşlarından önce, sırasında ve sonra: Patagonya’nın güneyinde Pleistosen-Holocen besin ağları üzerinde insan etkisi. Quat. Sci. Rev.250, 106696. doi: 10.1016/j.quascirev.2020.106696
-
Ponce J. F., Rabassa J., Coronato A., Borromei A. M. (2011).
Pampa ve Patagonya’nın Atlantik kıyısının son buzul maksimumundan Orta Holosen’e kadar paleojeografik evrimi: LGM’den beri Patagonya’nın paleojeografisi. Biol. J. Linn. Soc103, 363–379. doi: 10.1111/j.1095-8312.2011.01653.x
-
Potter B., Chatters J. C., Prates L., Perez S. I., Surovell T., Politis G. ve diğerleri (2026). Hemisfer Genişinde Erken Paleointernö Dönem Megaherbivor Uzmanlaşmasına Dair Kanıtlar. Sci. Adv. 12, eaef9628. doi: 10.1126/sciadv.aef9628
-
Prates L., Medina M. E., Perez S. I. (2025). 11.600 Yıl Öncesi Güney Amerika’da İnsan Beslenmesini Yok Olan Megafauna Belirliyordu. Sci. Adv. 11, eadx2615. doi: 10.1126/sciadv.adx2615
-
R Core Team (2026). R: İstatistiksel Hesaplama için Bir Dil ve Ortam (Vienna: R Foundation for Statistical Computing). Çevrimiçi erişim: https://www.R-project.org/.
- Google Scholar
-
Rodriguez I. D., Marina T. I., Schloss I. R., Saravia L. A. (2022). Deniz Beslenme Ağları Antarktik (Potter Cove, Antarktik Yarımadası) Bölgelerine Göre Antarktik-altı (Beagle Kanalı, Arjantin) Bölgelerde Daha Karmaşık Ancak Daha Kararsızdır. Mar. Environ. Res. 174, 105561. doi: 10.1016/j.marenvres.2022.105561
-
Rohr R. P., Scherer H., Kehrli P., Mazza C., Bersier L. (2010). Beslenme Ağları Modelleme: Açıklanamayan Yapıyı Gizli Özellikler Kullanarak Araştırma. Am. Nat. 176, 170–177. doi: 10.1086/653667
-
Salemme M., Santiago F., Oría J. (2014). La Arcillosa 2: Tierra del Fuego, Arjantin’de Orta Holosen Dönemi İnsan Yerleşiminin Zooarkeolojik Kaydı. Rev. Chil. Antropología 29, 19–25. doi: 10.5354/0719-1472.2015.36201
-
Santiago F., Vázquez M. (2012). Ortalama Diyetler: Tierra del Fuego’da Süper-Bölgesel Zooarkeolojik Kaydı Araştırma. Rev. del Museo Antropología 5, 225–238.
- Google Scholar
-
Santiago F. (2013). La ocupación humana en el norte de Tierra del Fuego durante el Holoceno medio y tardío. Su vinculación con el paisaje (Ushuaia: Aguafuerte).
- Google Scholar
-
Santiago F. (2024). Caza mayor en la isla. Análisis regional del registro zooarqueológico Lama guanicoe en la vertiente norte los andes fueguinos. Revista del Museo de Antropología 17, 29–46. doi: 10.31048/1852.4826.v17.n2.43308
-
Santiago F., Salemme M., Pardiñas U. F. J. (2016). Análisis de restos de roedores del sitio arqueológico Las Vueltas 1, Tierra del Fuego, Argentina. Arqueología 22 Dossier, 211–230. doi: 10.34096/arqueologia.t22.n0.3284
-
Sebastián-González E., Morant J., Moleón M., Redondo-Gómez D., Morales-Reyes Z., Pascual-Rico R. et al. (2023). The underestimated role of carrion in vertebrates’ diet studies. Global Ecol. Biogeography 32, 1302–1310.
- Google Scholar
-
Sierpe V. (2020). Los artiodáctilos de Fuego-Patagonia (Chile) Explotación alimenticia y su importancia en la tecnología ósea de los cazadores-recolectores del Holoceno medio y tardío (Oxford).
- Google Scholar
-
Steadman D. W. (1995). Prehistoric Extinctions of Pacific Island Birds: Biodiversity Meets Zooarchaeology. SCIENCE 267, 1123–1131. doi: 10.1126/science.267.5201.1123
-
Stuiver M., Reimer P. J. (1993). Extended 14 C data base and revised CALIB 3.0 14 C age calibration program. Radiocarbon 35, 215–230. doi: 10.1017/S0033822200013904
-
Tuhkanen S. (1992). The climate of Tierra del Fuego from a vegetation geographical point of view and its ecoclimatic counterparts elsewhere. Acta Botanica Fennica 145, 1–64.
- Google Scholar
-
Valdez L., D’Elía G. (2021).
Genetik çeşitlilik ve demografik tarih: tüylü yumuşak saçlı fare (Abrothrix hirta) (Cricetidae; Abrotrichini). Front. Genet.12, 642504. doi: 10.3389/fgene.2021.642504
-
Valenzuela A. E., Anderson C. B., Fasola L., Cabello J. L. (2014).
İstilacı egzotik omurcuklular ile Tierra del Fuego’daki ekosistem etkilerini birbirine bağlayarak teoriyi sınamak ve eylem belirlemek. Acta Oecologica54, 110–118. doi: 10.1016/j.actao.2013.01.010
-
Vázquez M. (2024). Mobilité ve Geçim İçin Avcı-Toplayıcıların Hareketi: Mitre Yarımadası, Tierra del Fuego’nun Güneydoğu Ucu (Buenos Aires:
UBA).- Google Scholar
-
Villavicencio N. A. (2016).
Patagonya’nın güneyindeki geç Kuarterner megafauna yok oluşları ve bunların çevresel değişimler ile insan etkileriyle ilişkisi. PAGES Mag.24, 58–59. doi: 10.22498/pages.24.2.58
-
Wood J. R., Alcover J. A., Blackburn T. M., Bover P., Duncan R. P., Hume J. P. ve ark. (2017).
Adalarda yok oluşlar: süreçler, örüntüler ve ekosistem restorasyonu için potansiyel. Environ. Conserv.44, 348–358. doi: 10.1017/S037689291700039X
-
Yeakel J. D., Pires M. M., Rudolf L., Dominy N. J., Koch P. L., Guimarães P. R. ve ark. (2014).
Kantik Mısır’da bir ekolojik ağıın çöküşü. Proc. Natl. Acad. Sci. U.S.A.111, 14472–14477. doi: 10.1073/pnas.1408471111
Özet
Anhtar kelimeler
çift yönlü ağ, guanaco (Lama guanicoe), deniz kaynakları, Tierra del Fuego takımadaları, trofik ekoloji
Atıf
Santiago FC, Balza U ve Marina TI (2026) Reconstructing ancient ecosystems: guanaco and marine carrion as drivers of predator-prey networks in Southern South America. Front. Ecol. Evol. 14:1952606. doi: 10.3389/fevo.2026.1952606
Alındı
29 Temmuz 2026
Düzeltildi
29 Temmuz 2026
Kabul edildi
06 Ekim 2026
Yayınlandı
02 Kasım 2026
14 – 2026
Fernando Barri, CONICET Cordoba, Argentina
Hugo Bampi, Universidade Federal de Goiás, Brazil
Maria A. Hurtado-Materon, Texas A and M University, United States
© 2026 Santiago, Balza ve Marina.
Bu, Creative Commons Atıf Lisansı (CC BY) koşulları altında erişime açık bir makaledir. Orijinal yazar(lar)ın ve telif hakkı sahibinin(lerin) atıf yapılması ve bu dergideki orijinal yayının, kabul görmüş akademik uygulama doğrultusunda atıf edilmesi şartıyla, diğer platformlarda kullanım, dağıtım veya çoğaltma izinlidir. Bu koşullara uymayan herhangi bir kullanım, dağıtım veya çoğaltma izinlidir.
*İletişim: Fernando C. Santiago, ersant2@gmail.com; Tomás I. Marina, tomasimarina@gmail.com
Bu makalede ifade edilen tüm iddialar yalnızca yazarların görüşlerini yansıtır ve bağlı oldukları kuruluşların, ya da yayıncının, editörlerin veya değerlendirenlerin görüşlerini kesin olarak yansıtmaz. Bu makalede değerlendirilen veya üreticisi tarafından ileri sürülebilecek herhangi bir ürün ya da iddia, yayıncı tarafından garanti edilmez veya desteklenmez.