Orijinal Araştırma Makalesi
Front. Ecol. Evol., 13 Kasım 2026
Bölüm: Koruma ve Restorasyon Ekolojisi
Cilt 14 – 2026 | https://doi.org/10.3389/fevo.2026.1949514
- XC
Xing Chen 1
- XT
Xinying Tong 1,2
- ZW
Zerui Wang 1,3
- YZ
Yuehua Zhou 1,2
- CP
Chuyue Pan 1,4
- CM
Chengxue Ma 5
- YW
Yingying Wang 5*
-
1. Çin Bilimler Akademisi, Kuzeydoğu Coğrafya ve Agroekoloji Enstitüsü, Orman ve Çayır İdaresi, Tuzlu-Tuzlu Sazlık Ekosistemi Koruma ve Restorasyon Laboratuvarı, Changchun, Çin
-
2. Jilin Normal Üniversitesi, Coğrafya Bilimleri ve Turizm Fakültesi, Siping, Çin
-
3. Çin Bilimler Akademisi Üniversitesi, Kaynaklar ve Çevre Fakültesi, Pekin, Çin
-
4. Harbin Normal Üniversitesi, Coğrafya Bilimleri Fakültesi, Harbin, Çin
-
5. Kuzeydoğu Orman Üniversitesi, Yaban Hayatı ve Korunan Alanlar Fakültesi, Harbin, Çin
Makale metrikleri
Özet
Tatlı su tuzlanması ve iştikileşmesi, özellikle kurak ve yarı-kurak bölgelerde küresel biyoçeşitlilik için ortaya çıkan tehditlerdir. Tatlı su tuzlanması ve iştikileşmesinin yerel biyoçeşitlilik üzerindeki ekolojik etkileri giderek artan bir ilgi görmesine rağmen, farklı beslenme seviyelerindeki organizmaların çeşitlilik örüntülerinin bölgesel ölçekte nasıl tepki verdiği henüz net değildir. Bu çalışmada, Kuzeydoğu Çin’deki Songnen Ovası’nda geniş bir tuzlu-iştikileşmiş gradyanı kapsayan 61 sulak alanda rotifer ve fitoplankton topluluklarını inceledik. Yerel (alfa) çeşitliliği nicelendirdik, beta çeşitliliğini dönüşüm ve iç içe geçme bileşenlerine ayırdık ve tuzlu-iştikileşmiş koşulların topluluk ve çeşitlilikle nasıl ilişkili olduğunu değerlendirdik. Bulgularımız, sulak alanlardaki tuzlanmanın genellikle yüksek pH, besin zenginleşmesi, daha sığ yüzey suyu ve daha düşük makrofit örtüsü ile ilişkili olduğunu, ancak yerel fitoplankton çeşitliliğinde anlamlı bir azalma, rotifer çeşitliliğinde ise anlamlı bir etkisi olmadığını gösterdi. Rotifer toplulukları esas olarak su derinliği ve makrofit örtüsü tarafından şekillendirilirken, fitoplankton toplulukları daha çok TOC, NH4+-N, su sıcaklığı ve makrofit örtüsü tarafından etkilenmiştir. Yerel sulak alanlardaki fitoplankton çeşitliliği pH ve inorganik azot konsantrasyonlarıyla negatif ilişkilidirken, rotifer çeşitliliği su sıcaklığı, su derinliği ve besin konsantrasyonlarıyla ilişkilidir. Bu zıt yerel tepkilere rağmen, her iki grup da incelenen sulak alanlar arasında yüksek mekânsal bileşimsel benzerlik göstermiştir. Toplam beta çeşitliliği rotifler için 0.89, fitoplankton için 0.91’e ulaşırken, dönüşüm topluluk benzerliklerinin sırasıyla %74.16’sını ve %67.03’ünü açıklamıştır. Bu bulgular, tatlı su tuzlanması ve iştikileşmesinin sulak alan organizmaları üzerindeki derin etkilerini ortaya koymaktadır. Bu emerging tehditlere karşı tatlı su ekosistemlerindeki biyoçeşitlilik yanıtını izlerken hem alfa hem de beta çeşitliliği boyutlarını birleştirmenin önemini vurgulamaktayız.
1 Giriş
Tatlı su ekosistemleri, göller, nehirler ve sulak alanları içermekle birlikte, Dünya yüzeyinin yalnızca yaklaşık %3’ünü kaplarken, omurgalilerin üçte biri ve balıkların yarısını da içeren bilinen tüm hayvan türlerinin yüzde 10’unu daha fazla desteklemektedir (Balian et al., 2008; Carrete Vega and Wiens, 2012). Bu dengesiz biyoçeşitlilik, besin döngüsü, sel kontrolü ve iklim değişikliğiyle mücadele gibi kritik ekosistem hizmetleri sağlamakta, aynı zamanda tatlı su sağlığının önemli biyoişaretçileri olarak küresel ölçekte milyarlarca insanın ekonomilerini ve geçim kaynaklarını desteklemektedir (Lynch et al., 2023; Schmutz and Sendzimir, 2018; Vári et al., 2022). Tatlı su ekosistemleri yüksek biyoçeşitliliği desteklemekte ve insan refahına hayati katkılar sağlamasına rağmen, aşırı avlanma, habitat parçalanması ve kimyasal kirlenme gibi birbiriyle birleşen tehditlerin etkisiyle hızlanan biyoçeşitlilik kayıpları yaşamaktadır (He et al., 2019; Reid et al., 2019).
Bu hızlanan tehditler arasında tuzlanma ve bazlaşma nispeten az ilgi görmüş olsa da, hızla ciddi küresel krizlere dönüşüyor; özellikle kurak ve yarı kurak bölgelerde (Cunillera-Montcusí et al., 2022; Kaushal et al., 2023). İklim değişikliği ve yoğun arazi kullanımındaki değişimler tarafından yönlendirilen, çözünmüş tuzların giderek artan konsantrasyonu ve yükselen pH değeri güçlü çevresel süzgeçler işlevi görebilir (Dugan et al., 2017; Jeppesen et al., 2020) ve tatlı su ekosistemlerindeki diğer stres etkenleriyle etkileşime girebilir (He et al., 2023; Kelly et al., 2024). Bu aşırı fizikokimyasal koşulların topluluk bileşimini ya doğrudan toksisite nedeniyle tür kayıpları yoluyla ya da dolaylı olarak tür etkileşimlerindeki değişim yoluyla etkilemesi bekleniyor (Berger et al., 2019). Sonuç olarak, artan tuzluluk tatlı su türlerinin geniş bir yelpazesinin hayatta kalmasını ciddi biçimde etkiliyor (Perera et al., 2024). Bu fizyolojik stres, birincil üreticiler olan fitoplankton (Moffett et al., 2023), birincil tüketiciler olan zooplankton (Ersoy et al., 2022) ve böcekler (Kaczmarek et al., 2024) ve yüksek trofik düzeydeki omurcuklular包括 amfibiler (Brady et al., 2025) ve balıklar (Chung et al., 2025) dahil olmak üzere birden fazla trofik düzeyi etkiliyor.
Bununla birlikte, biyoçeşitliğin tuzlulaşma ve alkleşmeye verdiği yanıtlar yalnızca yerel çeşitlilikteki değişimlerle yeterince karakterizlenemez. Benzer düzeyde alfa çeşitliliğine sahip birikimler taksonomik bileşimde farklılık gösterebilir; yerel zenginlikteki düşüşler aynı zamanda artan biyotik homojenleşme ya da alanlar arasındaki farklılıklar eşliğinde ortaya çıkabilir (Diniz ve ark., 2021b; Teittinen ve ark., 2025). Bu nedenle beta çeşitliliği, birikimler arasındaki bileşimsel varyasyonu nicelendirerek ve bu varyasyonun ardındaki süreçleri belirleyerek tamamlayıcı bir bakış açısı sunar (Baselga, 2010). Yanıtlar, ekolojik işlevleri, yaşam tarihleri ve fizyolojik dayanıklılıkları eşit olmadığı için besin zinciri grupları arasında (örneğin fitoplankton, zooplankton ve balıklar) oldukça farklılık gösterebilir (Irigoien ve ark., 2004; Diniz ve ark., 2023). Fitoplanktonlar besin kullanılabilirliği, ışık koşulları, iyonik bileşim ve su sütunu kararlılığındaki değişimlere hızlı yanıt verir (Padisák ve ark., 2009); rotiferler ise buna ek olarak besin kullanılabilirliği, avlanma ve tür özgü osmoregülatör kısıtlamalarından etkilenir (Walsh ve ark., 2008). Bu nedenle tuzlu-alkali koşullar birden fazla besin zinciri grubunu farklı yollarla yeniden düzenleyebilir (Shi ve ark., 2026). Yine de fitoplankton ve rotiferler çoğunlukla ayrı ayrı incelenmekte; alfa çeşitliliği, birikim bileşimi ve beta çeşitliliği bileşenlerinin taksonlar arası grupların aynı çevresel gradyanlara tutarlı biçimde yanııt verip vermediğine dair karşılaştırmalı olarak oldukça az şey bilinmektedir (Westgate ve ark., 2014; Teittinen ve ark., 2025; Fugère ve ark., 2026).
Bu çalışmada, Songnen Ovası’nda yer alan 61 noktada fitoplankton ve rotifer topluluklarının bileşimi ve çeşitliliği incelenmiştir. Bu bölge, son derece heterojen, doğal bir tuzlu-alkali gradiente sahip olup ideal bir doğal laboratuvar sunmaktadır. Özellikle iki araştırma sorusunu yanıtlamayı hedefledik: 1) Fitoplankton ve rotifer toplulukları tuzlanma ve alkalileşmeye yerel ve bölgesel ölçeklerde nasıl tepki vermektedir? 2) Fitoplankton ve rotifer çeşitliliği benzer çevresel sürücüler tarafından şekillenmekte midir? Tuzlu-alkali koşullar hassas taksonları elemeye eğilimli olurken, çevresel heterojenlik farklı toleranslara sahip taksonların yer değiştirmesini teşvik edebileceğinden, tuzlu-alkali koşulların her iki grupta da yerel çeşitliliği azaltması ve bölgesel beta çeşitliliğinin yer değiştirme ile baskın olması beklenmektedir. Ayrıca rotiferler ve fitoplankton, kaynak gereksinimleri ve yaşam tarihleri özellikleri bakımından farklılık gösterir. Ayrıca, topluluk yapısının ve çeşitliliğinin başlıca çevresel ilişkilerini rotiferler ve fitoplankton arasında farklı olduğunu varsaydık.
2 Materyaller ve yöntemler
2.1 Çalışma alanı
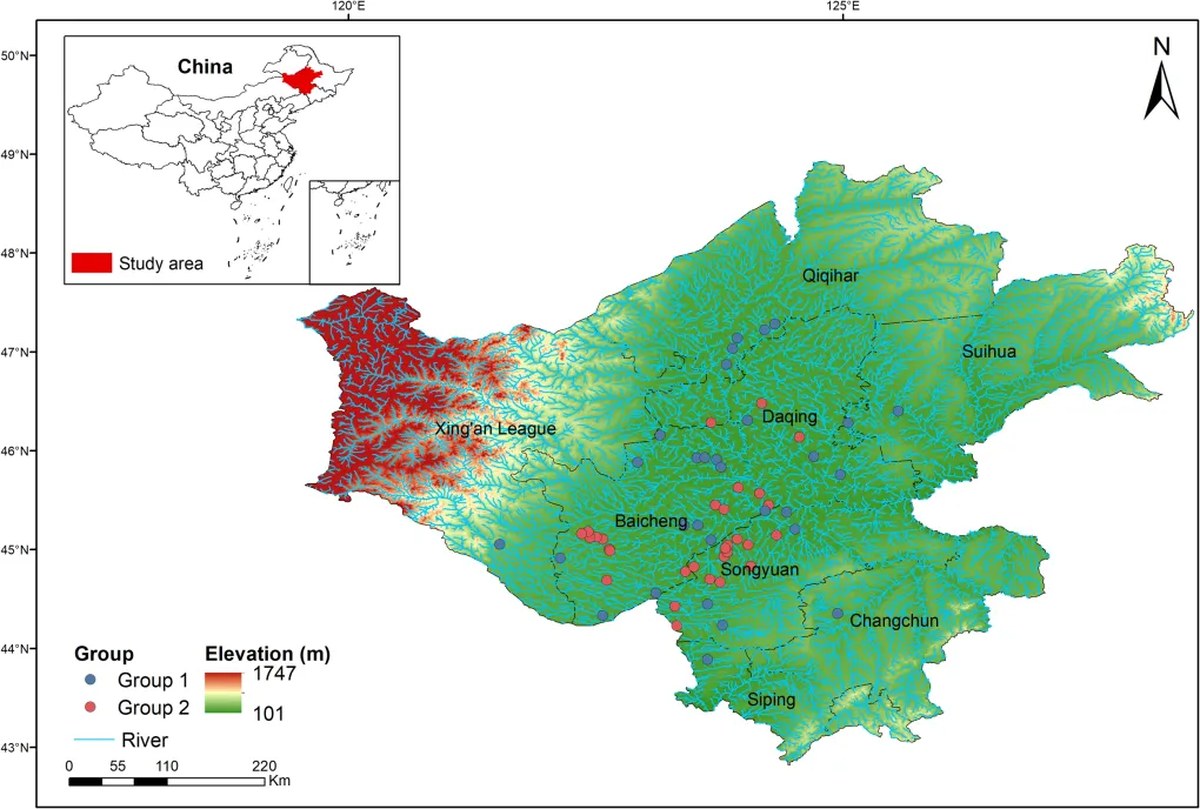
Songnen Ovası, Northeast China’da yer almakta ve Jilin Eyaleti’nin batısındaki alanları ile Heilongjiang Eyaleti’nin komşu bölgelerini ve İç Moğolistan Özerk Bölgesini kapsamaktadır (Şekil 1). Çalışma alanı yaklaşık olarak 43°59′ ile 46°18′ K enlemleri ve 121°38′ ile 126°30′ D boylamları arasında uzanmakta ve yaklaşık 46,9 × 10³ km2’lik bir alanı kapsamaktadır (Wang ve ark., 2022, 2025b). Songhua Nehri, Nen Nehri ve kolları, ovayı saran yoğun bir nehir-göl ağı oluşturmakta; geniş bataklıkları, sığ gölleri ve taşkın ovaları sulak alanlarını desteklemektedir (Zuo ve ark., 2026). Bu manzara sayesinde Songnen Ovası, Çin’deki temsili bataklık-sulak alan bölgelerinden biri olup tatlı suyu organizmaları için önemli yaşam alanları sağlamaktadır (Luo ve ark., 2025; Zuo ve ark., 2026). Bu bölgedeki birkaç sulak alan, Zhalong, Momoge ve Xianghai dahil olmak üzere Ramsar alanları listesine alınmış olup, Chagan Gölü ve Dabusu gibi göl ve sulak alanların çevresinde ayrıca ulusal veya eyalet korumalı alanlar bulunmaktadır (Luo ve ark., 2025; Zuo ve ark., 2026).
Şekil 1
Songnen Ovası, su erişiminde güçlü mevsimsel değişkenlik gösteren ılıman karasal muson iklimine sahiptir. Yıllık ortalama sıcaklık genellikle yaklaşık 3–7 °C, yıllık yağış miktarı ise yaklaşık 300–700 mm olup, yağışın büyük kısmı Haziran–Ağustos arasında yoğunlaşmakta ve doğudan batıya doğru azalmaktadır (Wang ve ark., 2020; Luo ve ark., 2025; Zuo ve ark., 2026). Buna karşılık potansiyel buharlaşma yüksektir; örneğin Momoge sulak alanında yapılan çalışmalar yıllık yaklaşık 392 mm yağış ve yaklaşık 1553 mm buharlaşma bildirmiştir (Wang ve ark., 2025b). Bu yağış-bharlaşma dengesizliği, düz arazi, zayıf drenaj ve sığ yeraltı suyu ile birlikte Songnen Ovasını kuraklık stresi ve tuzlanmaya karşı hassas kılmaktadır (Perri ve ark., 2022; Wang ve ark., 2025a). Bölge, aynı zamanda dünyanın büyük tuzlu-alkali toprak bölgelerinden birinin parçasıdır ve Çin’de tuzlanmadan en fazla etkilenen alanlardan biridir (Wang ve ark., 2025a). Uzun süreli tuzluluk izlemeleri, Songnen Ovasında tuzlu toprak alanlarının 1954 ile 2016 arasında üç kez genişlediğini göstermektedir (Perri ve ark., 2022; Yu ve ark., 2023; Wang ve ark., 2025a). Bu koşullar altında, sığ sulak alanlar ve göller, eşzamanlı su seviyesi düşüşü, tuz birikmesi ve besin ile alkalenlik rejimindeki değişimler yaşayabilir. Bu çevresel gradyanlar, Songnen Ovasını tuzluluk, alkalenlik ve besin koşullarının tuzlu-alkali sulak alanlardaki tür çeşitliliği ve birikim bileşimiyle nasıl ilişkili olduğunu incelemek için uygun bir doğal sistem haline getirmektedir.
2.2 Rotifer ve fitoplankton örneklemesi ve analizi
Rotifer ve fitoplankton, 3 ile 28 Haziran 2025 tarihleri arasında 61 bataklıkta örneklenmiştir. Bataklıklar arası karşılaştırılabilirliği artırmak için her bataklıkta bitkili bir alanda bir örneklem alanı belirlenmiştir. Örneklem alanları, çevresel kullanım, bataklık alanı ve doğrudan insan kaynaklı bozulma düzeyleri açısından geniş çaplı karşılaştırılabilir olacak şekilde seçilmiş, açıkça bozulmuş alanlardan kaçınılmıştır. Tüm örneklem alanlarında su derinliği 1,5 m’nin altında olmuştur. 0,5 m’den derin alanlarda, su sütunu boyunca toplanan su iyice karıştırılmış ve 1 L’lik alt örnek alınmıştır. 0,5 m’den sığ alanlarda ise 1 L’lik yüzey suyu örneği toplanmıştır. Örneklem süreci ve hacmi, Bakanlığı tarafından yayımlanan Göller ve Baraj Göllerinde Su Ekolojik İzlenmesi—Su Organizmaları İzlenmesi ve Değerlendirmesi (Deneme) Teknik Rehberi’ne (HJ 1296—2023) uygun olarak gerçekleştirilmiştir.
Ekoloji ve Çevre, Halk Cumhuriyeti Çin. Su örnekleri derhal %2 Lugol iyot çözeltisi ile muhafaza edildi. Örnekler çökelme yoluyla son hacim olarak 50 mL’ye yoğunlaştırıldı. Laboratuvarda, yoğunlaştırılmış örnekler %4 sakaroz-formalin çözeltisi içinde sabitlendi. Rotifer ve fitoplankton, optik mikroskop (Motic, Xiamen, Çin) kullanılarak 100× büyütme (rotifer) ve 400× büyütme (fitoplankton) altında sayıldı. Taksonomik tanımlama mümkün olduğunca tür düzeyinde yapıldı ve biyokütle, rotiferler için Koste (1978) ve fitoplankton için Hu ve Wei (2006) esas alınarak hesaplandı. Her taksonun temsilci bireylerinin boyutları ölçüldü ve biyokütle, en benzer geometrik katıya yaklaştırarak tahmin edildi.
2.3 Çevresel değişkenlerin örneklenmesi ve analizi
Çevresel değişkenler, 2018 ve 2019 yıllarında, sırasıyla 12 Mayıs-13 Ekim ve 11 Mayıs-14 Ekim tarihleri arasında, her iki gölde de aylık olarak ölçüldü. Toprak örnekleri ise 2019 yılında, 13 Mayıs, 15 Haziran, 15 Temmuz, 15 Ağustos, 15 Eylül ve 15 Ekim tarihlerinde alındı. Her iki gölde de, her bir örneklem döneminde, her bir bitki topluluğu tipinde en az iki tekrarlı üç örneklem alındı. Örneklem noktalarının konumları GPS ile belirlendi ve her iki göl için de sabit örneklem noktaları kullanıldı.
Su örnekleri, 0-20 cm derinlikten, her bir bitki topluluğu tipinde en az üç noktadan alınarak temiz plastik şişelere dolduruldu ve soğutucu ile laboratuvara taşındı. Laboratuvara varıştan sonra, su örnekleri 4 °C’de 48 saat boyunca bekletildi; ardından üstteki 10 cm’lik su sütunu sifon ile alındı ve 0.45 µm çapında selüloz asetat membran filtresi ile süzüldü. Süzülen su, pH, elektrik iletkenliği (EC), çözünmüş oksijen (DO), sıcaklık, çözünmüş organik karbon (DOC), amonyum azotu (NH4+-N), nitrat azotu (NO2–N), nitrit azotu (NO3–N), total azot (TN) ve total fosfor (TP) gibi parametrelerin analizinde kullanıldı.
Toprak örnekleri, temiz plastik şişelere alınarak laboratuvara taşındı ve 25 °C’de 48 saat boyunca kurutuldu; ardından 2 mm çapında elekten geçirildi. Toprak örnekleri, pH, EC, çözünmüş organik karbon (DOC), amonyum azotu (NH4+-N), nitrat azotu (NO2–N), nitrit azotu (NO3–N), total azot (TN) ve total fosfor (TP) gibi parametrelerin analizinde kullanıldı.
Rotifer ve phytoplankton örneklemesiyle eş zamanlı olarak, her alanında bir dizi çevresel değişken ölçüldü. In situ parametreleri arasında su sıcaklığı (°C), pH, tuzluluk (ppt), çözünmüş oksijen (DO, mg L⁻¹), elektriksel iletkenlik (Cond, μS cm⁻¹), oksidasyon-redüksiyon potansiyeli (ORP, mV) ve toplam çözünmüş katı maddeler (TDS, g L⁻¹) taşınabilir çok parametreli bir prob (YSI Inc., Yellow Springs, OH, USA) kullanılarak kaydedildi. Su yüzeyi derinliği (bundan sonra su derinliği, cm) kadranlı bir ses hattı kullanılarak ölçüldü. Makrofit örtüsü (%) her alanında, örneklem sitesinden 30 m yarıçap içindeki su yüzeyinin ve gözlemlenebilir yüzen ile batık bitkilerin oranı olarak görsel olarak tahmin edildi. Besin ve kimyasal analizler için, yüzey altı su örnekleri alındı, 4 °C’da karanlıkta saklandı ve laboratuvara taşındı. Water and Wastewater Examination için Standart Yöntemlerin dördüncü baskısına uygun olarak, toplam azot (TN, mg L⁻¹), toplam fosfor (TP, mg L⁻¹), nitrat (NO₃⁻-N, mg L⁻¹), amonyum (NH₄⁺-N, mg L⁻¹), ortofosfat (PO₄³⁻-P, mg L⁻¹), toplam organik karbon (TOC, g L⁻¹) ve çözünmüş organik karbon (DOC, mg L⁻¹) ölçülmüştür (Shimadzu, Japonya ve Skalar, Hollanda) (EPBC, 2002).
2.4 İstatistiksel analiz
İstatistiksel analizden önce, çoklu bağlantılılığı ortadan kaldırmak için çevresel değişkenler elenmiştir. TDS ve Cond, tuzlulukla güçlü bağlantılıkları nedeniyle a priori olarak çıkarılmıştır. Ardından, kalan parametreler için varyans enflasyon faktörü (VIF) hesaplanmış ve yalnızca VIF < 3 olan öngörücüler korunmuştur (Zuur ve ark., 2010). Aşağıdaki tüm analizler için on bir ayrı çevresel değişken korunmuştur: tuzluluk, NH4+-N, NO3–N, PO43–P, TOC, su sıcaklığı, pH, DO, ORP, su derinliği ve makrofit örtüsü. Rotifer birikiminde, açıklayıcı değişkenler olarak fitoplankton bolluğu ve biyokütlesi de eklenmiştir. Sabit tuzluluk ve pH eşikleriyle tuzlu-alkali sulak alanları tanımlayan yaygın olarak kabul gören bir kriter olmadığından, alanlar önceden tuzlu-alkali ve tatlı su kategorilerine atanmamıştır. Peyzaj genelinde belirgin çok değişkenli çevresel rejimleri nesnel olarak belirlemek için, bu on bir korunan değişkenin ölçeklendirilmiş matrisi üzerinde K-means kümelemesi yapılmıştır. k = 2’den k = 6’ya kadar aday çözümler değerlendirilmiştir. Her aday k için kümelemesi, 500 rastgele başlangıç, maksimum 100 yineleme ve sabit rastgele tohum ile Hartigan–Wong algoritması kullanılarak gerçekleştirilmiştir. En iyi küme sayısı (k = 2), aday k değerleri ortalaması siluet genişlikleri karşılaştırılarak belirlenmiştir (Rousseeuw, 1987). İki veri kaynaklı kümenin çevresel açıdan nasıl farklılaştığını karakterize etmek için, bileşen parametreleri parametrik olmayan Wilcoxon rank-sum testi ile karşılaştırılmıştır. Standartlandırılmış çevresel matristen hesaplanan Öklid uzaklıklarına dayanan koordinat analizi (PCoA), iki küme arasındaki çok değişkenli çevresel farkları görselleştirmek için kullanılmıştır.
Çevresel değişkenler ile plankton birikimlerinin bileşimi, mesafe temelli indirgenmiş analiz (dbRDA) kullanılarak incelendi. Aşırı baskın taksonların aşırı etkisini azaltmak için tür bollukları karekök dönüştürüldü, ardından Bray–Curtis benzerşizliği hesaplandı. Zenginlik temelli bir benzerşizliği ölçüsünün indirgenmiş analizinize olanak tanıması nedeniyle dbRDA’yı seçtik (Legendre ve Legendre, 2012). Analiz, vegan paketindeki “dbrda” fonksiyonu ile uygulandı. Çevresel öngörücüler sıfır ortalamalı ve birim varyanslı olacak şekilde standartlaştırıldı (Z-puanı standartlaştırması). Açıklayıcı modeli sadeleştirmek ve aşırı uyumlamayı azaltmak için çevresel matrise ileri seçim uygulandı. Ardından global dbRDA modelinin önemi, indirgenmiş eksenler ve her seçilen çevresel öngörücünün marjinal etkileri, vegan paketi kullanılarak permütasyon temelli varyans analizi (ANOVA; 999 permütasyon) ile test edildi (Oksanen et al., 2026).
Topluluklar arası uyumlashmayı değerlendirmek için, Hellinger-dönüştürülmüş rotifer ve fitoplankton birikim matrislerinin ayrı ayrı indirgenmiş analizlerinden elde edilen saha bileşimleri karşılaştırmak üzere Procrustes analizi kullanıldı. İstatistiksel önem, 9.999 sınırsız permütasyon ile PROTEST kullanılarak değerlendirildi.
Rotifer ve fitoplanktonun alfa çeşitliliğini değerlendirmek için iNEXT paketi (Hsieh ve ark., 2016) kullanılarak kapsama dayalı nadirleştirme ve dışarıdan tahmin kullanıldı. Aşırı tuzluluk veya kuraklık gibi aşırı çevresel koşulların bolluğu azaltıp örneklemeyi eksik bırakma yanlıklarına yol açabileceği göz önüne alındığında, geleneksel boyut bazlı nadirleştirme gerçek çeşitliliği alttan tahmin edebilir. Bu sorunu aşmak için iNEXT, örnekleri toplam bolluk yerine örneklem tamamlanıklığı (kapsama) açısından standartlaştırarak farklı kapsama düzeyine sahip alanlar arasında daha karşılaştırılabilir çeşitlilik tahminlerinin yapılmasını sağlar. Alfa çeşitliliği, Hill sayılarının birleştirilmiş matematiksel çerçevesi kullanılarak nicelendirildi; asimptotik nokta tahmini ile tür zenginliği (q = 0), Shannon etkin çeşitliliği (bundan sonra Shannon çeşitliliği, q = 1) ve Simpson etkin çeşitliliği (bundan sonra Simpson çeşitliliği, q = 2) hesaplandı. Her alan için asimptotik çeşitlilik tahminleri ve ilgili %95 güvenirlik aralıkları, gözleml bolluk verilerine dayanan 1.000 bootstrap tekrarı ile üretildi (Chao ve Jost, 2012). Ardından, bu çeşitlilik ölçütleri arasındaki istatistiksel olarak anlamlı farklar, parametrik olmayan Wilcoxon sıraları-toplam testi ile iki çevresel küme arasında test edildi. Son olarak, alfa çeşitliliğinin temel çevresel belirleyicilerini belirlemek için Gauss hataları ve kimlik bağlantısı içeren genelleştirilmiş modeller (GLM’ler) kuruldu. Öncelikle rotifer ve fitoplankton için, tüm non-korelatif çevresel değişkenler öngörücü olarak dahil edilerek, üç çeşitlilik indeksi (q = 0, 1, 2) için ayrı global modeller oluşturuldu. Sürekli öngörücüler ve çeşitlilik indeksleri analizden önce sıfır ortalamaya ve birim varyansa standartlaştırıldı. Modellerin uygunluğu, artıkların normalliği, homojen varyans ve etkili gözlemler incelenerek değerlendirildi. Aşırı uyumlanmayı önlemek ve uygun GLM modelini belirlemek için her global modele ileri yönlü kademeli seçim prosedürü uygulandı. Optimal son modeller, model uyumu ve karmaşıklığı arasında en iyi matematiksel dengeyi sağlayarak Akaike bilgi kriterini (AIC) minimize etmeyle belirlendi.
Rotifer ve fitoplankton taksonomilerinin örneklenen alanlardaki mekânsal değişimlerini değerlendirmek için, türlerin bolluk verilerine dayanan Bray-Curtis benzerliliği indeksi ile çiftli beta çeşitliliği hesapladık. Toplam beta çeşitliliğini, bolluğun dengeli değişimi ve bolluk-gradyanı bileşenleri olmak üzere iki bileşene ayırdık. Bolluğun dengeli değişimi, bazı türlerin bireylerinin başka türlerin bireyleriyle yer değiştirmesini yansıtır ve temelde ortaya çıkışa dayalı beta çeşitliliğinin bileşen değişimi bileşeniyle benzerdir; buna karşılık bolluk-gradyanı bileşeni, taksonomiler arasındaki toplam bolluk farklarını yansıtır ve iç içe geçiş-resultant bileşenıyla benzerdir. Bundan sonra, sadelik adına bu bileşenlere sırasıyla “bolluğa dayalı bileşen değişimi” ve “bolluğa dayalı iç içe geçiş” olarak atıf yapacağız. Bu ayırma, Baselga (2010, 2012)’nin izlediği şekilde betapart paketi (Baselga ve Orme, 2012) kullanılarak gerçekleştirildi.
Rotifer ve fitoplankton beta çeşitliliğindeki değişimi açıklayan değişkenleri ve bu bileşenleri incelemek amacıyla, uzaklık matrisleri kullanılarak permütasyonel çok değişkenli varyans analizi (PERMANOVA) gerçekleştirildi (Anderson, 2001). Üç benzerlilik matrisi yanıt değişkeni olarak kullanıldı. Çevresel prediktör verileri, her satırında bir alan bulunan ve topluluk matrisleriyle birebir aynı alan sırasına göre dizilmişti. Sürekli prediktörler, analizden önce sıfır ortalamalı ve birim varyanslı olacak şekilde standartlaştırıldı. Her beta-çeşitliliği matrisi ile çevresel prediktörler arasındaki ilişkiler, vegan paketi içindeki “adonis2” fonksiyonu kullanılarak test edildi. Kenar testleri, kalan prediktörler sabit tutularak her prediktörün koşullu ilişkisini değerlendirmek için kullanıldı. İstatistiksel anlamlılık, wetland kimliklerinin 9.999 sınırsız permütasyonu kullanılarak değerlendirildi.
3 Bulgular
3.1 Çevresel karakterizasyon
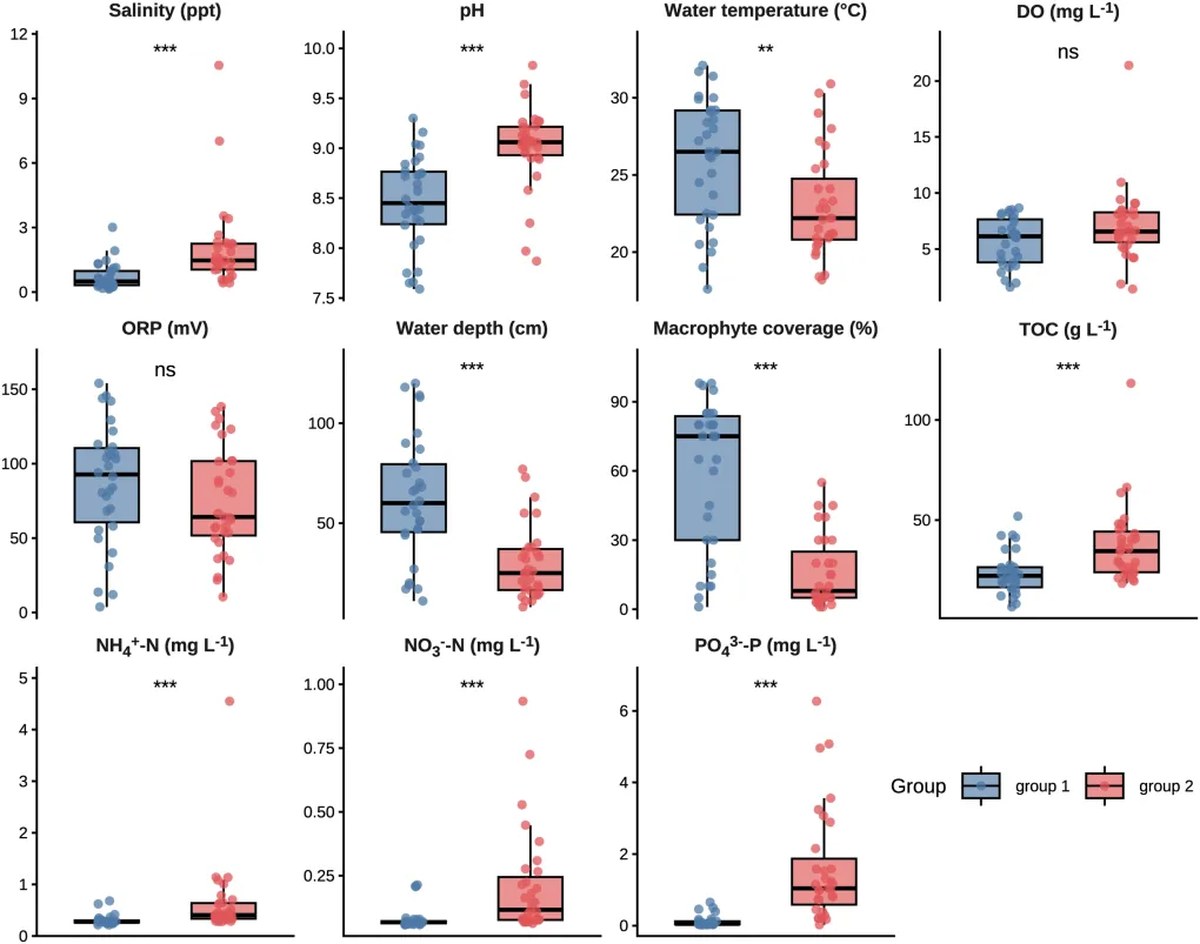
K-means kümelemesi, on bir tanesi korunmuş olan çevresel değişkenlere dayanarak 61 örneklem alanını iki farklı gruba ayırdı (Ek Figure S1). İlk iki PCoA ekseni, toplam çevresel varyansın sırasıyla 27.6% ve 16.7’sini açıkladı. Wilcoxon rank-sum testleri, bu iki grubun neredeyse tüm ölçülen fizikokimyasal parametrelerde anlamlı biçimde farklılaştığını doğruladı. 2. Grup, tuzlu-alkalin, besin açısından zenginleşmiş sığ yüzey suyu ekosistemini temsil etti (Figure 2). Spesifik olarak, bu alanlar anlamlı derecede yüksek tuzluluk (10.54 ppt’ye kadar) ve yüksek alkalinite (pH 9.83’e kadar) ile karakterize edildi (p < 0.001). Buna ek olarak, 2. Grup aynı zamanda yüksek besin zenginleşmesi gösterdi; TOC, NH4+-N, NO3–N ve PO43–P açısından daha yüksek konsantrasyonlar (p < 0.001). Fiziksel değişkenler için, 2. Grup yaşam alanları daha sığdı (23.02 ± 3.42 cm) ve daha düşük makrofit örtüsü korudu (p < 0.01). Buna karşılık, 1. Grup daha derin sulu, yüksek makroft örtülü ve daha düşük besin yüküne sahip tatlı su ortamları ile karakterize edildi.
Figure 2
3.2 Topluluk bileşimi
Songnen Ovası’ndaki 61 örneklem alanında toplam 18 rotifer taksonu belirlendi (Ek Tablo S1). Rotifer birikimi Polyarthra minor (toplam bolluğun %24,86) baskınlığını taşırken, Filinia brachiata (%17,94), Anuraeopsis fissa (%15,25) ve Trichocerca tenuior (%11,58) da önemli katkılar sağladı. Çevresel değişkenler bu belirli birikim yapısını anlamlı biçimde sınırladı (Şekil 3A). Genel model, toplam bileşim varyansının %9,8’ini açıkladı (düzeltilmiş R² = 0,098; F = 1,73, p < 0,01), ilk iki kısıtlı eksen (CAP1 ve CAP2) bu varyansın sırasıyla %5,5’ini ve %4,3’ünü yakaladı. Ayrıca, marjinal etkilerin permütasyon testleri su derinliği (F = 1,89, p < 0,01) ve makrofit örtüsü (F = 1,52, p = 0,04)’nün rotifer bileşimiyle anlamlı ilişkiler gösterdiğini ortaya koydu (Ek Tablo S2). Procrustes analizi fitoplankton ve rotifer birikimi arasında anlamlı bir uyum tespit etmedi (Procrustes korelasyonu = 0,311, m² = 0,903, P = 0,311; 9.999 permütasyon).
Şekil 3
81 fitoplankton taksonu belirlendi (Ek Tablo S3). En yaygın takson Dictyosphaerium pulchellum (%26,92) oldu, bunu Pseudanabaena sp. (%21,53), Anabaena variabilis (%6,66) ve Ulothrix variabilis (%6,23) izledi. Çevresel değişkenler fitoplankton birikimiyle anlamlı biçimde ilişkiliydi (F = 1,65, p < 0,01, düzeltilmiş R² = 0,056, Şekil 3B). Marjinal testler, TOC (F = 1,91, p < 0,001), NH4+-N (F = 1,44, p < 0,001), su sıcaklığı (F = 1,63, p < 0,01) ve makroft örtüsü (F = 1,60, p < 0,01)’nün fitoplankton birikimi üzerindeki başlıca çevresel sınırlamalar olduğunu ortaya koydu (Ek Tablo S4).
3.3 Alfa çeşitliliği ve çevresel sürücüler
Rotifere ait tür zenginliği 1. Grupta ortalama 4,07 ± 2,87 olarak ölçüldü ve bu değer, 2. Grubun tuzlu-alkali koşullarında kaydedilen 3,23 ± 3,22 değerinden istatistiksel olarak anlamlı biçimde farklı değildi. Bu anlamlı varyasyon eksikliği, Shannon çeşitliliği (p > 0,05) ve Simpson çeşitliliği (p > 0,05) dahil olmak üzere ağırlıklı bolluk ölçümleri boyunca tutarlıydı (Şekil 4).
Şekil 4
Buna karşılık, fitoplankton alfa çeşitliliği 2. Grupta istatistiksel olarak anlamlı biçimde azaldı. Fitoplankton tür zenginliği, 1. Gruptaki 19,11 ± 10,86 değerine kıyasla 2. Grupta 8,78 ± 7,53 olarak daha yüksekti (p < 0,001). Shannon çeşitliliği (p < 0,01) ve Simpson çeşitliliği (p < 0,05) de 2. Grupta daha düşüktü.
Rotifer birikiminde, fiziksel ve kimyasal değişkenler alfa çeşitliliğinin baskın belirleyicileri oldu (Şekil 5). Özellikle su derinliği (tahmin = 1,26, p < 0,05) rotifer tür zenginliği için anlamlı bir pozitif öngörücü olarak öne çıktı. Shannon çeşitliliği su sıcaklığıyla pozitif, ancak NO3–N ile negatif ilişkilendirildi (tahmin = -0,49, p < 0,05); buna karşılık Simpson çeşitliliği su sıcaklığıyla pozitif (tahmin = 0,85, p < 0,05) ve su derinliğiyle negatif ilişkilendirildi (tahmin = -1,0, p < 0,05). Hem tuzluluk hem de pH, nihai rotifer modellerinde yer almadı (Ekleme Tablosu S5).
Şekil 5
Fitoplankton alfa çeşitliliği, kimyasal koşullarla daha tutarlı negatif ilişkiler gösterdi. Tür zenginliği pH ile negatif (tahmin = -4,55, p < 0,05) ve DO ile pozitif (tahmin = 2,92, p < 0,05) ilişkilendirildi. Shannon ve Simpson çeşitliliği pH, NH4+-N ve su sıcaklığıyla negatif ilişkilendirildi.
3.4 Beta çeşitliliği ve çevresel belirleyiciler
Songnen Ovası’nda her iki taksonomik grup için bileşimsel benzeşmezlik yüksekti (Şekil 6). Rotifer birikiminde toplam beta çeşitliliği 0.89 ± 0.17 olarak bulundu. Alan değişkenliği dönüşümle baskındı (0.66 ± 0.38) ve toplam beta çeşitliliğinin %74.16’sını açıkladı. Buna karşılık iç içe geçme birikim farklarına küçük katkıda bulundu (0.22 ± 0.31). Fitoplankton birikimi benzer bir desen gösterdi (Şekil 6B). Yüksek alfa çeşitliliğini korumasına rağmen, birikimdeki alan kaymaları yine iç içe geçme yerine dönüşüm tarafından belirleniyordu. Toplam fitoplankton beta çeşitliliği ortalaması 0.91 ± 0.11’di ve dönüşüm alan değişkenliğinin %67.03’ünü açıkladı.
Şekil 6
Rotifer toplam beta çeşitliliği NH4+-N (F = 1.89, p = 0.016) ve su derinliği (F = 1.70, p = 0.049) ile ilişkilendi ve sırasıyla toplam bileşimsel varyansın %5.2’sini ve %4.7’sini açıkladı (Ekleme Tablosu S6). Küresel modelle tutarlı olarak, rotifer dönüşümü NH4+-N (F = 2.73, p = 0.041) ve su derinliği (F = 2.74, p = 0.041) ile anlamlı şekilde ilişkilendi ve varyansın %6.4’ünü ve %6.5’ini açıkladı (Ekleme Tablosu S7). Buna rağmen, iç içe geçme ölçülen herhangi bir çevresel değişken tarafından sınırlanmadı (tüm p > 0.05) (Ekleme Tablosu S8). Biyolojik etkileşimler, özellikle fitoplankton bolluğu ve biyokütle, rotiferin alan değişkenliğini bağımsız olarak anlamlı şekilde sınırlamadı (p > 0.05). Toplam fitoplankton beta çeşitliliği TOC (varyansın %2.5’i, F = 1.58, p = 0.018) ve su sıcaklığı (varyansın %2.8’i, F = 1.79, p = 0.006) ile ilişkilendi (Ekleme Tablosu S9). Su sıcaklığı aynı zamanda fitoplankton dönüşümündeki varyansı da açıkladı (Ekleme Tablosu S10). Rotifer birikimiyle tutarlı olarak, iç içe geçme ile anlamlı marjinal ilişki gösteren hiçbir ölçülen çevresel değişken yoktu (tüm p > 0.05) (Ekleme Tablosu S11).
4 Tartışma
Tuzlanma ve bazlaşma, tatlı su ve tuzlu-sulak ekosistemler için öne çıkan büyük tehditleri temsil etmektedir (Reid ve ark., 2019; Tackley ve ark., 2025). Bulgularımız, tuzlu-salı sularak alanlarda fitoplankton ve rotiferlerin yanıtlarında ölçeğe bağlı bir karşıtlık ortaya koymaktadır. Fitoplankton alfa çeşitliliği, daha yüksek tuzluluk, pH ve besin konsantrasyonlarıyla karakterize edilen alanlarda anlamlı derecede daha düşüktü; rotifer alfa çeşitliliğinde ise anlamlı bir fark tespit edilmedi. Peyzaz ölçeğinde her iki topluluk da taksonomik dönüşümle baskınlanan yüksek bileşimsel benzeşmezlik göstermiş; bu da türlerin su gövdesi arasında kapsamlı biçimde yeniden dağılmasını, homojen zenginlik kaybından çok, işaret etmektedir. Topuluk bileşiminin çevresel eşlik edenleri kısmen gruplara özgüydü. Rotifer topluluğu daha güçlü biçimde su derinliği ve makrofit örtüsüyle; fitoplankton topluluğu ise başlıca besin koşulları, organik karbon, su sıcaklığı ve makrofit örtüsüyle ilişkilendirilmiştir. Bu bulgular, yerel çeşitlilikteki değişimlerin mekânsal ölçekli topluluk yeniden örgütlenmesiyle zorunlu olarak paralel gitmediğini ve besin basamakları arasında kısmen ayrışmış yanıtları işaret ettiğini göstermektedir.
4.1 Songnen Ovası’nın tuzlu-salı sularak alanlarının çevresel heterojenliği
İncelenen sulak alanlar, Songnen Ovası’nda belirgin çevresel heterojenite sergiliyordu. Tuzlu-alkali sahalar yalnızca yükselmiş tuzluluk ve pH ile ayırt edilmiyordu; aynı zamanda daha yüksek besin ve organik karbon konsantrasyonları, suların daha az derin olması ve makrofit örtüsünün azalmasıyla da öne çıkıyorlardı. Bu kovaryans, tuzluluğun izole bir kimyasal bozulma olarak değil, hidrolojik daralma, besin zenginleşmesi ve yaşam alanı basitleşmesi biçiminde daha kapsamlı bir sürecin parçası olarak ortaya çıktığını gösteriyor (Herbert ve ark., 2015). Yüksek buharlaşma, kısıtlı drenaj ve sığ yeraltı suyu, tuz birikimini teşvik edebilir; havzadan gelen besin girdileri ve düşen su seviyeleri ise Songnen Ovası’nda çözünmüş maddelerin daha da konsantre olmasına yol açabilir (Zuo ve ark., 2026). Buna ek olarak, makroft örtüsünün azalması, yaşam alanı karmaşıklığını, besin tutulumunu ve su altı ışık koşullarını değiştirerek hem bu değişiklikleri yansıtır hem de onları pekiştirebilir (Bolpagni, 2026). Sonuç olarak, bu çalışmada belirlenen iki küme grubu, basit ve izole tuzluluk uygulamaları olarak değil, karşıtlık gösteren, bileşik ekolojik rejimler olarak yorumlanmalıdır.
4.2 Rotifer ve fitoplankton birikintilerinin karşıtlık gösteren çevresel ilişkileri
Örümcekayaları ve fitoplanktonun çevresel ilişkilerindeki farklar, birincil üreticiler ile tüketicilerin yaşam alanlarıyla etkileşime girme biçimlerindeki farklılıkları yansıtabilir. dbRDA modellerimiz, örümcekayaları bileşiminin öncelikle su derinliği ve makrofit örtüsüyle ilişkili olduğunu gösterdi. Su derinliği ve makrofit örtüsü birlikte yaşam alanı yapısını ve hidrokolojik kararlılığı karakterize eder; bu da sığınak erişilebilirliğini, yerel tutulumu ve besin kaynaklarına erişimi değiştirerek örümcekayalarını etkileyebilir (Duggan ve ark., 2001; Dias ve ark., 2014; Celewicz-Gołdyn ve Kuczyńska-Kippen, 2017). Buna karşılık, fitoplankton bileşimi TOC, NH4+-N, su sıcaklığı ve makrofit örtüsüyle ilişkiliydi. Bu değişkenler besin erişilebilirliği, metabolik koşullar ve su altı ışık ortamıyla daha doğrudan bağlantılıdır. Besin erişilebilirliği ve sıcaklık, fitoplankton büyümesini etkileyebilir; organik karbon ve makrofitler ise ışık nüfuzunu, besin döngüsünü ve rekabet etkileşimlerini değiştirebilir (Fernández-González ve ark., 2022; Dory ve ark., 2024). Dolayısıyla, bu zıt öngörücü kümeler, örümcekayası birleşiminin yaşam alanı yapısı ve besin ağı tarafından daha güçlü biçimde yönlendirilirken, fitoplankton birleşiminin fizikokimyasal ve termodinamik koşullara daha doğrudan tepki verdiğini öne sürüyor.
Bu yorumlar yine de tedbirli tutulmalıdır. dbRDA modellerimiz, toplam topluluk varyasyonunun nispeten mütevazı bir oranını yakalamıştır; uyarlanmış R² değerleri rotiferler için %9,8, fitoplankton için %5,6’dır. Dolayısıyla bileşimsel varyasyonun büyük bir kısmı ölçülen değişkenlerle açıklanamamıştır. Bu arta kalan varyasyon, ölçülememiş faktörleri yansıtabilir; bunlara hidrolojik bağlantılılık, iyonik bileşim, otlatma ve avlanma, yayılma geçmişi, dinlenme yumurtası havuzları ve zamansal değişkenlik dahildir (Brendonck ve De Meester, 2003; Soininen ve ark., 2011). Buna ek olarak, tuzluluk, besin konsantrasyonları, su derinliği ve makrofit örtüsü, taranan sahalar boyunca kovarye etmiş, böylece her birinin etkisini izole etmek zorlaşmıştır. Herhangi bir tek açıklayıcı değişkene atfedilen ilişki, kısmen daha geniş bileşik çevresel rejimi ya da diğer ölçülen ve ölçülememiş değişkenlerle ortak varyasyonu yansıtabilir. Seçilen açıklayıcı değişkenler, izole edilmiş ekolojik sürücülerden çok, topluluk bileşimi ve çeşitliliğinin çevresel eşlikçileri olarak değerlendirilmelidir.
4.3 Fitoplankton ve rotiferler arasındaki potansiyel besin zinciri bağlantıları
İlk üreticiler ve tüketiciler olarak fitoplankton ve rotiferler tabandan yukarıya kontrol yoluyla birbirine bağlanmış olabilir; ancak analizlerimiz, incelenen mekânsal ölçekte güçlü bir topluluk düzeyinde eşleşmeye dair kanıt sağlamadı. Fitoplanktonun rotiferler için kullanılabilirliği yalnızca toplam bolluk veya biyokütle ile değil, hücre boyutu, morfoloji, yenilebilirlik ve besin kalitesi ile de belirlenir. Rotifer taksonları çeşitli beslenme nişlerini işgal eder ve farklı boyut aralıklarında parçacıkları tüketirken, büyük koloniler, iplikçikler, savunmacı morolojiler ya da bir tüketicinin en uygun boyut aralığının dışında hücreler otlatmaya karşı nispeten dirençli olabilir (Arndt, 1993; Gilbert, 2022). Besin kalitesi, rotifer popülasyon performansını besin miktarından bağımsız biçimde de düzenleyebilir. Örneğin, Štrojsová ve ark. (2009), Brachionus plicatilis’in popülasyon büyüme hızının, besin açısından zengin alglerle beslendiğinde kıyaslanabilir besin konsantrasyonlarında, azot ya da fosfor açısından fakir alglerle beslendiğinde daha düşük olduğunu buldu. Benzer şekilde, fosfor kısıtlaması alg besininin elementel ve biyokimyasal kalitesindeki değişimler aracılığıyla rotifer büyümesini azaltabilir ve yaşam özniteliklerini değiştirebilir (Zhou ve ark., 2018). Bu nedenle, toplam fitoplankton bolluğu ve biyokütle, kullanılabilir, yenilebilir ve besin açısından uygun besini tam olarak yansıtmayabilir. Tuzlu-alkali koşullar, fitoplankton bileşimini, fizyolojisini ve besin kalitesini değiştirerek bu yolları daha da etkileyebilir; aynı zamanda zooplankton üzerinde doğrudan fizyolojik etkiler de uygulayabilir (Moffett ve ark., 2023).
Mevcut çalışmada, iki birikinti arasında anlamlı bir tüm topluluk uyumu bulunamadı. Ancak bu, besin zinciri bağlantılarını dışlamaz. Rotifer beslenmesi tür özelliği gösterir ve seçicidir; yenebilir veya besin değeri yüksek fitoplankton taksonlarının sınırlı bir bölümündeki değişimler bolluk veya biyokütle ile yansıtılmayabilir. Rotifler aynı zamanda bakteri, protozoon ve çürük parçacıkları gibi alternatif kaynakları da kullanabilir (Arndt, 1993; Gilbert, 2022). Bu olası besin zinciri yollarının çözümlenmesi için zamansal örneklemenin tekrarlanması, yenebilir fitoplankton boyut fraksiyonlarının ve besin değerinin değerlendirilmesi ve doğrudan beslenme ya da otlatma ölçümlerinin yapılması gerekmektedir.
4.4 Tuzlu-alkali gradanı boyunca karşıt alpha çeşitlilik yanıtları
Fitoplankton ve rotifler tuzlu-alkali nemli alanlarda karşıt alpha-çeşitlilik yanıtları gösterdi. Fitoplankton alpha-çeşitliliği pH ve inorganik azot konsantrasyonlarıyla olumsuz ilişkilendi. Benzer düşüşler veya olumsuz ilişkiler, Songnen Ovası’ndaki (Sui ve ark., 2016) ve kuzeydoğu Mongolya’daki (Afonina ve Tashlykova, 2020) tuzlu-alkali nemli alanlardan bildirilmiştir. Bu örüntü, alkali ve besin açısından zenginleşmiş nemli alanlarda birinci üreticilere yönelik daha güçlü çevresel filtreleme ile tutarlıdır (Padisák ve Naselli-Flores, 2021). Yükselen pH, inorganik karbon türleşmesini değiştirebilir ve çözünmüş CO₂ sınırlandığında fitoplankton taksonları bikarbonatı edinme ve kullanma kapasitelerinde farklılık gösterir (Raven ve ark., 2020). Yüksek pH, ayrıca amonyuma göre iyonlaşmamış amonyak oranını artırabilir; ancak bu çalışmada NH₃-N doğrudan ölçülmemiştir (Collos ve Harrison, 2014). Oksijene yönelik olumlu ilişki, hassas taksonlar için daha uygun koşullar işaret ediyor olabilir; ancak kısmen fitoplanktonun oksijen üretimini de yansıtıyor olabilir. Kümeleme grubu 2 yüksek pH ve tuzluluğu besin açısından zenginleşme, sığ yüzey suyu ve azalmış makrofit örtüsüyle birleştirdiğinden, gözlemlenen çeşitlilik düşüşü büyük olasılıkla birden fazla etkileşen kısıtlamanın sonucudur, tek bir çevresel faktörün değil.
Öte yandan, rotifer alfa çeşitliliği iki kümeleme grubu arasında anlamlı biçimde farklılık göstermedi ve GLM’lerde tuzluluk ile pH ile ilişkisiz kaldı. Buna rağmen, İspanya’nın doğu kıyısından ve mesocosm deneylerinden, tür zenginliğinin artan tuzlulukla azaldığı bildirilmiştir (Anton-Pardo ve Armengol, 2012; Gutierrez ve ark., 2018; Hébert ve ark., 2023). Hızlı üreme, dinleme yumurtası üretimi, dikey göç ve beslenme esnekliği rotifer tür zenginliğini çevresel değişim karşısında koruyabilir (Bandara ve ark., 2021; Badesab ve ark., 2026; Solano‐Udina ve ark., 2026). Çalışmamızda Polyarthra minor, Filinia brachiata, Anuraeopsis fissa ve Trichocerca tenuior birlikte toplam rotifer bolluğunun %69,63’ünü oluşturdu. Polyarthra türlerinin algler, protozoonlar ve diğer mikrobiyal beslenme ağı bileşenlerini içerebilen çeşitli ve seçici beslenmeleri, olası olarak tek bir besin kaynağı türüne olan bağımlılıklarını azaltabilir (Gilbert, 2022). Anuraeopsis‘nin dinleme yumurtası üretimi yoluyla koşulsuz ortamda bile nispeten yüksek bir popülasyon artış hızına sahip küçük bodumlu bir tür olarak rapor edildiği; Filinia‘nin ayrıca sıcak ve tuzlu iç sulardan kaydedildiği bildirilmiştir (Shao ve ark., 2001). Rotifer tür zenginliği GLM’lerde su derinliği ile pozitif ilişkilidir. Sığ sulak alanlarda, su sütununun daha derin olması mevcut yaşam alanı hacmini artırabilir ve sıcaklık ile kimyasal koşullardaki kısa süreli değişimi yumuşatabilir, bu da rotifler için olası olarak daha geniş bir mikrouygunluk yelpazesi sağlayabilir (Bandara ve ark., 2021; Zhou ve ark., 2022). Bu koruyucu etki, tuzlulaşma ve besin aşırılığının zooplankton birikimlerine yönelik birikici etkilerini su derinliğinin hafiflettiğini gösteren Siber göllerinden gelen güncel saha kanıtlarıyla desteklenmektedir (Zadereev ve ark., 2022).
4.5 Farklı tuzlu-alkalin sulak alanlar boyunca devri baskın beta çeşitliliği
Birbirinden farklı yerel çeşitlilik yanıtlarına rağmen, fitoplankton ve rotiferlar ortak bir bölgesel örüntü paylaştı. Her iki grup da yüksek beta çeşitliliği gösterdi ve tür değişimi, içe kapanma bileşeninden daha fazla katkı sağladı. Bu nedenle, topluluk farklılaşması, zengin topluluklardan türlerin kademeli kaybından çok, taksonomik özdeşliğin değişimine daha güçlü şekilde yansındı. Benzer bir gözlem Qinghai Gölü’nde fitoplankton için bildirildi; burada tür değişimi beta çeşitliliğinin %56,65 – %69,17’sini oluşturdu (Zhou ve ark., 2026). Bu gözlemler, taksonomik gruplar yerel zenginlikte farklı yanıtlar gösterse bile yüksek bölgesel farklılaşmanın sürebileceğini gösteriyor (Witman ve ark., 2004). Daha derin sulak alanlarda, sınırlı tuzluluk ve daha yüksek makrofit örtüsüyle desteklenenler, düşük tuzlu-alkali strese uyum sağlamış özelleşmiş rotifer türlerini (örneğin Polyarthra) sürdürebilir. Buna karşılık Brachionus urceus, daha sığ, tuzlu-alkali ve besince zenginleşmiş sulak alanlarda göreceli bolluğu veya görülme sıklığı arttı. Fitoplankton bileşimi benzer şekilde Dictyosphaerium pulchellum‘den Phormidium lismorense‘ye kaydı. Bu değişimler, tür değişiminin farklı çevresel ve işlevsel gruplara sahip baskın türler arasındaki değişimi içerdiğini gösteriyor.
Songnen Ovası’nda gözlemlenen yüksek beta çeşitliliği, biyo toplulukların heterojen bir çevresel manzara boyunca farklılaşmasıyla uyumludur. Manzara; tuzluluk, pH, besin konsantrasyonları, su derinliği ve makrofit örtüsü açısından belirgin alansal değişimler içermekte ve su kütleleri arasında kimyasal ve fiziksel koşulların ayrı kombinasyonlarını oluşturmaktadır. Örneğin, Amerika Birleşik Devletleri’nin dokuz ekobölgesinde dağılan göllerde fitoplankton beta çeşitliliği çevresel heterojenlikle artarken, zooplankton beta çeşitliliğinin alansal yayılımla daha yakın ilişkili olduğu görülmüştür (Liborio, 2025). Hint Okyanusu’ndaki Beibu Körfezi’nde çevresel ve hidrokolojik mesafeler, fitoplankton toplam beta çeşitliliği ve tür değişimiyle birlikte ilişkilendirilmiştir (Ge ve ark., 2023). Brezilya’daki tropikal sığ göl ve sulak alanlara ilişkin çalışmalar, yüksek zooplankton beta çeşitliliğini çevresel filtreleme ve makrofitlerle ilişkili mikrotikmet farklılıklarına bağlamıştır (Diniz ve ark., 2021a; Sousa ve ark., 2025). Songnen Ovası’nda yüksek bileşimsel farklılaşma, izole bir tuzluluk gradyanı yerine bileşik bir çevresel gradyan boyunca gerçekleşmiştir. Kümeleme grubu 2, daha yüksek tuzluluk, pH ve besin konsantrasyonlarını daha sığ yüzey suyu ve daha düşük makrofit örtüsüyle birleştirmektedir. Bu eşzamanlı değişen koşullardaki değişimler, siteler arasında farklı biyo topluluklarını desteklemiş olabilir; bu durum tatlı su türlerinde değişimin baskınlığıyla uyumludur (Heino ve ark., 2015; Agra ve ark., 2024). Bölgesel bileşimsel farklılaşma, yalnızca çevresel stresin büyüklüğüne değil, aynı zamanda bu stresin manzara boyunca ne kadar dengesiz dağıldığına da bağlıdır. Örneğin, besin açısından zengin alçak arazi derelerinde yüksek fosfor konsantrasyonları, kirliliğe dayanıklı fitoplanktonun yaygınlığı ve düşük beta çeşitliliğiyle ilişkilendirilmiştir (Frau ve ark., 2023); Danimarka göllerinde ise besinlerde ve su sütunu kararlılığında azalan alansal değişimler, fitoplankton homojenleşmesiyle birlikte görülmüştür (Fu ve ark., 2020).
Songnen Ovası’nda gözlemlenen yüksek beta çeşitliliği, aynı zamanda uzamsal uzaklığın, yayılma kısıtlamasının ve çevresel süzülmenin birlikte etkisini de yansıtıyor olabilir. Araştırılan sulak alanlar geniş bir coğrafi alana yayılmıştı ve sulak alanlar arasındaki uzaklığın artması, yüzey suyu bağlantıları, seller, rüzgar, su kuşları ve diğer yayılma vektörleri yoluyla üreme birimlerinin değişimini azaltabilir (Soons, 2006). Buna ek olarak, tuzluluk, pH, besin konsantrasyonları, su derinliği veya makrofit örtüsü gibi koşullar da uzamsal olarak yapılandırılmış olabilir ve bu nedenle coğrafi açıdan uzak sulak alanlar bu yönlerden daha güçlü biçimde farklılık gösterebilir (Zhou et al., 2026). Songnen Ovası hem güçlü çevresel gradyanları hem de coğrafi açıdan ayrılmış sulak alanları içerdiğinden, çevresel süzülme ile yayılma kısıtlaması eşzamanlı biçimde işleyebilir. Bu nedenle, fiziksel bariyerler ve karmaşık uzamsal yapı mevcut olsa bile dik biyotik gradyanlar çevresel süzülmeyi güçlendirebilir (Soininen et al., 2011).
4.6 Sınırlamalar
Yağış, buharlaşma, su seviyesi ve hidrolojik bağlantıdaki mevsimsel değişimler tuz birikimini, besin konsantrasyonlarını, yaşam koşullarını ve plankton birikimlerini değiştirebilir. Tüm tuzlu-alkali sulak alanlar zaman karşılaştırılabilirliğini artırmak için nispeten kısa bir dönemde taranmış olsa da, örneklem döneminde bazı değişimler de gerçekleşmiş olabilir. Yerel düzeydeki zıt tepkilerin ve bölgesel düzeyde baskın olan tür değişiminin zaman içinde tutarlı kalmayıp kalmadığını belirlemek için hidrolojik mevsimler ve birden fazla yıl boyunca tekrarlanan taramalara ihtiyaç vardır.
5 Sonuç
Çalışmamız, rotiferlerin ve fitoplanktonun yerel ölçekte farklı tepkiler verdiğini ancak Songnen Ovası’nın tuzlu-alkalin sulak alanlarında bölgesel çeşitlilik değişimini ortaklaştırdığını ortaya koyuyor. Fitoplankton alfa çeşitliliği, 2. Grup tarafından temsil edilen bileşik çevresel koşullar altında azaldı ve pH ile inorganik azotla tutarlı negatif ilişkiler gösterdi. Rotifer alfa çeşitliliği ise buna karşılık bir grup düzeyindeki azalmayı göstermedi; bunun yerine su sıcaklığı, su derinliği ve besin koşulları ile ilişkilendirildi. Bu iki taksonomik grubun birleşim bileşimleri kısmen farklı çevresel değişkenlerle ilişkilendirildi; bu da kimyasal koşullar, besin kullanılabilirliği ve yaşam alanı yapısının trofik gruplar arasında farklı derecede önem taşıyabileceğini işaret ediyor. Yerel tepkilerin aksine, her iki grup da dönüşümle baskınlanmış yüksek beta çeşitliliği sergiledi; bu da su gövdesi arasında belirgin taksonomik değişimi, çoğunlukla düzenli tür kaybından çok daha öne çıkaracak şekilde gösteriyor. Yerel zenginlik ve bölgesel bileşimsel farklılaşma dolayısıyla biyoçeşitlilik tepkisinin birbirinin yerini almayan, birbirinin yerine geçmeyen tamamlayıcı boyutları temsil ediyor. Yüksek dönüşüm ayrıca bireysel su gövdeslerinin bölgesel tür havuzunun tamamlayıcı kısımlarını desteklediğini gösteriyor. Dolayısıyla koruma ve izleme, tek bir temsilci yaşama alanına güvenmek yerine, tuzluluk, alkalilik, besin durumu, su derinliği ve makrofit örtüsü gradyanları boyunca su gövdeslerini kapsamalıdır. Daha geniş anlamda bulgularımız, planktonik trofik gruplar arasında zıtlı tepkiler ve kısmen farklı çevresel ilişkiler olmasına rağmen benzer bölgesel biyoçeşitlilik örüntülerinin ortaya thểbileceğini gösteriyor.
Açıklamalar
Veri erişilebilirliği açıklaması
Bu makalenin sonuçlarını destekleyen ham veriler, authors tarafından gereksiz bir sakınma olmaksızın erişime sunulacaktır.
Ahlak açıklaması
Makale, çalışmaları için etik onay gerektirmeyen hayvanlar üzerinde yapılan araştırmayı sunmaktadır.
Yazar katkıları
XC: Kavramlaştırma, Veri düzenleme, Biçimsel analiz, Kaynak edinme, Araştırma, Metodoloji, Yönetim, Görselleştirme, Yazım – taslak, Yazım – inceleme & düzenleme. XT: Veri düzenleme, Araştırma, Görselleştirme, Yazım – taslak, Yazım – inceleme & düzenleme, Metodoloji. ZW: Veri düzenleme, Araştırma, Metodoloji, Görselleştirme, Yazım – taslak, Yazım – inceleme & düzenleme. YZ: Veri düzenleme, Araştırma, Metodoloji, Yazım – taslak, Yazım – inceleme & düzenleme. CP: Veri düzenleme, Araştırma, Metodoloji, Yazım – taslak, Yazım – inceleme & düzenleme. CM: Kavramlaştırma, Araştırma, Yazım – taslak, Yazım – inceleme & düzenleme. YW: Kavramlaştırma, Veri düzenleme, Araştırma, Metodoloji, Yazım – taslak, Yazım – inceleme & düzenleme.
Kaynaklandırma
Yazar(lar), bu çalışma ve/veya yayımı için finansal destek alındığını beyan etmiştir. Bu çalışma, Çin Ulusal Ana Araştırma ve Geliştirme Programı (no. 2024YFF1306405), Çin Doktora Sonrası Bilim Vakfı (no. 2025M770318) ve Çin Bilimler Akademisi (no. E355S122 ve E529S101) tarafından desteklenmiştir.
Çıkar çatışması
Yazar(lar), bu çalışmanın ticari veya olası bir çıkar çatışması olarak değerlendirilebilecek herhangi bir finansal ilişki olmadan yürütüldüğünü beyan etmiştir.
Üretken yapay zeka beyanı
Yazar(lar), bu metnin oluşturulmasında üretken yapay zekanın kullanılmadığını beyan etmiştir.
Bu makaledeki figürlerle birlikte sağlanan alternatif metinler (alt text), Frontiers tarafından yapay zeka desteğiyle oluşturulmuş olup, mümkün olduğunca yazarların inceleme yaptığı doğruluk sağlamak için makul çabalar gösterilmiştir. Herhangi bir sorunu tespit ederseniz, lütfen bizimle iletişime geçin.
Yayıncının notu
Bu makalede ifade edilen tüm iddialar yalnızca yazarlara aittir ve bağlı oldukları kuruluşların, yayıncının, editörlerin veya hakemlerin görüşlerini mutlaka yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
Ekleme materiali
Bu makalenin Ekleme Materiali çevrimiçi olarak şu adreste bulunabilir: https://www.frontiersin.org/articles/10.3389/fevo.2026.1949514/full#supplementary-material
-
Afonina E. Y. Tashlykova N. A. (2020). Fluctuations in plankton community structure of endorheic soda lakes of southeastern Transbaikalia (Russia). Hydrobiologia 847, 1383–1398. doi: 10.1007/s10750-020-04207-z
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Agra J. Cornelissen T. Viana‐Junior A. B. Callisto M. (2024). A global synthesis and meta‐analysis of the environmental heterogeneity effects on the freshwater biodiversity. Oikos 2024, e10186. doi: 10.1111/oik.10186
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Anderson M. J. (2001). A new method for non‐parametric multivariate analysis of variance. Austral Ecol. 26, 32–46. doi: 10.1111/j.1442-9993.2001.01070.pp.x
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Anton-Pardo M. Armengol X. (2012). Effects of salinity and water temporality on zooplankton community in coastal Mediterranean ponds. Estuar. Coast. Shelf. Sci. 114, 93–99. doi: 10.1016/j.ecss.2011.08.018
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Arndt H. (1993).
Rotiferler mikrobal ağın bileşenlerinin (bakteriler, heterotrofik flagelatlalar, kirpikliler) avcıları olarak? Bir derleme. Hydrobiologia255–256, 231–246. doi: 10.1007/BF00025844- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Badesab S. K. Fugère V. Flinois C. Sacko A. Bertolo A. (2026).
Kara kullanımı ve taşkın rejiminin büyük bir nehir taşkın ovasındaki zooplankton yumurta yataklarına etkileri. Freshw. Biol.71, e70264. doi: 10.1111/fwb.70264- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Balian E. V. Segers H. Lévêque C. Martens K. (2008).
Tatlı su hayvan çeşitliliği değerlendirmesi: sonuçların bir özeti. Hydrobiologia600, 313–313. doi: 10.1007/s10750-008-9302-7- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Bandara K. Varpe Ø. Wijewardene L. Tverberg V. Eiane K. (2021).
Zooplankton dikey göç araştırmalarının iki yüz yılı. Biol. Rev.96, 1547–1589. doi: 10.1111/brv.12715- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Baselga A. (2010).
Beta çeşitliliğinin dönüşüm ve iç içe geçme bileşenlerinin ayrıştırılması. Glob. Ecol. Biogeogr.19, 134–143. doi: 10.1111/j.1466-8238.2009.00490.x- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Baselga A. (2012).
Tür değişimi, iç içe geçmeden türetilen benzeşmezlik ve iç içe geçme arasındaki ilişki. Glob. Ecol. Biogeogr.21, 1223–1232. doi: 10.1111/j.1466-8238.2011.00756.x- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Baselga A., Orme C. D. L. (2012). betapart: R dilinde beta çeşitliliğinin incelenmesi için bir paket. Methods Ecol. Evol. 3, 808–812. doi: 10.1111/j.2041-210X.2012.00224.x
- Pubmed Abstract
- CrossRef
- Google Scholar
- Makale içinde referansı görüntüle
-
Berger E., Frör O., Schäfer R. B. (2019). Tuzluluğun nehir ekosistem süreçleri üzerindeki etkileri: kritik bir mini derleme. Phil. Trans. R. Soc B. 374, 20180010. doi: 10.1098/rstb.2018.0010
- Pubmed Abstract
- CrossRef
- Google Scholar
- Makale içinde referansı görüntüle
-
Bolpagni R. (2026). Tatlı su biyoçeşitliliğinin, işlevlerinin ve sağladığı yararların çöküşünü durdurma aracı olarak su bitkileri temelli çözümler. Discov. Ecol. 2, 8. doi: 10.1007/s44396-026-00027-y
- Pubmed Abstract
- CrossRef
- Google Scholar
- Makale içinde referansı görüntüle
-
Brady S. P., Kang S. J., Wang Z. S., Layne C. D., Calsbeek R. (2025). Tatlı su tuzlluğu, yavaş ve şişkin kurbağalar ile küçük, darbeli embriyolar üretiyor ancak yumurtalarda uyum sağlayıcı karşıt gradyan varyasyonu gösteriyor. Integr. Comp. Biol. 65, 285–298. doi: 10.1093/icb/icaf008
- Pubmed Abstract
- CrossRef
- Google Scholar
- Makale içinde referansı görüntüle
-
Brendonck L., De Meester L. (2003). Tatlı su zooplanktonunda yumurta yatakları: çökeltideki evrimsel ve ekolojik arşivler. Hydrobiologia 491, 65–84. doi: 10.1023/A:1024454905119
- Pubmed Abstract
- CrossRef
- Google Scholar
- Makale içinde referansı görüntüle
-
Carrete Vega G., Wien J. J. (2012). Denizde neden bu kadar az balık var? Proc. R. Soc B. Proc. Biol. Sci. 279, 2323–2329. doi: 10.1098/rspb.2012.0075
- Pubmed Abstract
- CrossRef
- Google Scholar
- Makale içinde referansı görüntüle
-
Celewicz-Gołdyn, S., Kuczyńska-Kippen, N. (2017). Küçük tarım ve orman su gövlerinde makrofit örtüsünün mikroalgler (diatomlar) ve zooplankton (rotiferler ve kabaklılar) için yaşam alanı oluşturmadaki ekolojik değeri. PloS One12, e0177317. doi: 10.1371/journal.pone.0177317
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Chao, A., Jost, L. (2012). Kapsama dayalı nadilleştirme ve dışa aktarma: örneklerin boyut yerine tamamlanıklıkla standardizasyonu. Ecology93, 2533–2547. doi: 10.1890/11-1952.1
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Chung, M. J., Noble, D. W. A., Fox, R. J., Harrison, L. M., Jennions, M. D. (2025). Gelişim sırasında değişken tuzluluk balıkların yaşam tarihlerini etkiler. J. Anim. Ecol.94, 1848–1865. doi: 10.1111/1365-2656.70095
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Collos, Y., Harrison, P. J. (2014). Yüksek amonyum konsantrasyonlarının tek hücreli alglere aklimasyon ve toksikliği. Mar. pollut. Bull.80, 8–23. doi: 10.1016/j.marpolbul.2014.01.006
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Cunillera-Montcusí, D., Beklioğlu, M., Cañedo-Argüelles, M., Jeppesen, E., Ptacnik, R., Amorim, C. A. et al. (2022). Tatlı su tuzlulaşması: daha tuzlu bir dünya için araştırma gündemi. Trends Ecol. Evol.37, 440–453. doi: 10.1016/j.tree.2021.12.005
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Dias, J. D., Bonecker, C. C., Miracle, M. R. (2014). Neotropik taşkın ovasının göllerindeki rotifer topluluğu ve işlevsel rolü. Internat. Rev. Hydrobiol.99, 72–83. doi: 10.1002/iroh.201301706
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Diniz L. P., Braghin L. D. S. M., Pinheiro T. S. A., Melo P. A. M. D. C., Bonecker C. C., Melo Júnior M. D. (2021a).
Çevresel süzgeç, tropikal sığ göllerde zooplanktonun taksonomik ve fonksiyonel β-çeşitliliğini yönlendirir. Hydrobiologia 848, 1881–1895. doi: 10.1007/s10750-021-04562-5- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Diniz L. P., Petsch D. K., Bonecker C. C. (2021b).
Bir Neotropik taşkın ovasında zooplankton β-çeşitliliği dinamikleri ve metakomün yapısı mekânsal ve zamansal ölçeklere bağlıdır. Freshw. Biol. 66, 1328–1342. doi: 10.1111/fwb.13719- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Diniz L. P., Petsch D. K., Mantovano T., Rodrigues L. C., Agostinho A. A., Bonecker C. C. (2023).
Uzun süren bir kuraklık dönemi, bir Neotropik taşkın ovasında zooplankton, phytoplankton ve balık metakomünlerinin zamansal β-çeşitliliğini azalttı. Hydrobiologia 850, 1073–1089. doi: 10.1007/s10750-023-05140-7- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Dory F., Nava V., Spreafico M., Orlandi V., Soler V., Leoni B. (2024).
Sıcaklık ile besin maddeleri arasındaki etkileşim: Phytoplankton topluluğu iklim değişikliğiyle nasıl başa çıkar? Sci. Total Environ. 906, 167566. doi: 10.1016/j.scitotenv.2023.167566- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Dugan H. A., Bartlett S. L., Burke S. M., Doubek J. P., Krivak-Tetley F. E., Skaff N. K. et al. (2017).
Tatlı su göllerimizi tuzlaştırıyoruz. Proc. Natl. Acad. Sci. U.S.A. 114, 4453–4458. doi: 10.1073/pnas.1620211114- Pubmed Abstract
- CrossRef
- Google Scholar
-
Duggan I. C., Green J. D., Thompson K., Sheil R. J. (2001). Bitkilerin sığ bölge rotiferlerinin alan içi dağılımı üzerindeki etkisi. Freshw. Biol. 46, 777–786. doi: 10.1046/j.1365-2427.2001.00718.x
- Pubmed Abstract
- CrossRef
- Google Scholar
-
EPBC (2002). Su ve atık suyun izlenmesi ve analizinde standart yöntemler (Beijing, Çin: Chinese Environmental Science Press).
- Google Scholar
-
Ersoy Z., Abril M., Cañedo-Argüelles M., Espinosa C., Vendrell-Puigmitja L., Proia L. (2022). Zenginleşme koşulları altında tuzlulaşmanın tatlı su zooplankton toplulukları ve besin etkileşimleri üzerindeki etkilerinin deneysel değerlendirmesi. Environ. pollut. 313, 120127. doi: 10.1016/j.envpol.2022.120127
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Fernández-González C., Tarran G. A., Schuback N., Woodward E. M. S., Arístegui J., Marañón E. (2022). Tropikal ve subtropikal Atlantik’ta fitoplankton tepkilerinin artan sıcaklık ve besin kullanılabilirliğine karşı tutarlılığı. Commun. Biol. 5, 1035. doi: 10.1038/s42003-022-03971-z
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Frau D., Pineda A., Mayora G., Gutierrez M. F. (2023). Zenginleşme, ovalık derelerdeki fitoplankton β-çeşitliliğinin homojenleştirici bir süreci olarak. Limnologica 99, 126058. doi: 10.1016/j.limno.2023.126058
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Fu H., Yuan G., Özkan K., Johansson L. S., Søndergaard M., Lauridsen T. L. et al. (2020). İki onyıl süren restorasyon ve iklim değişikliği boyunca göl fitoplankton topluluklarının alan içi heterojenliğinde mevsimsel ve uzun vadeli eğilimler. Sci. Total Environ. 748, 141106. doi: 10.1016/j.scitotenv.2020.141106
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Fugère, V., Paquette, C., Martin, G. K., Garner, R. E., Huot, Y., Walsh, D. A. ve diğerleri (2026). Kanada genelinde göl planktonlarının çoklu trofik alpha ve beta çeşitliliği. Oikos 2026, e12059. doi: 10.1002/oik.12059
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Ge, F., Chen, B., Wang, S., Zhou, Q., Ma, Z., Chen, G. ve diğerleri (2023). Çevresel heterojenilik ile yayılma sınırlamalarının plankton topluluklarının uzamsal örüntüleri üzerindeki göreceli önemi mevsimlere göre değişir. Limnol. Oceanogr. 68, 1995–2007. doi: 10.1002/lno.12401
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Gilbert, J. J. (2022). Planktonik rotiferların besin nişleri: Çeşitlenme ve sonuçları. Limnol. Oceanogr. 67, 2218–2251. doi: 10.1002/lno.12199
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Gutierrez, M. F., Tavşanoğlu, Ü., Vidal, N., Yu, J., Teixeira-de Mello, F. Ç., Çakiroglu, A. I. ve diğerleri (2018). Tuzluluk, su planktonu topluluklarını ve işlevsel çeşitliliği şekillendirir ve göllerdeki boyut yapısı üzerinde karmaşık etkilerde bulunur. Hydrobiologia 813, 237–255. doi: 10.1007/s10750-018-3529-8
- Pubmed Abstract
- CrossRef
- Google Scholar
-
He, F., Arora, R., Mansour, I. (2023). Çok türlü topluluklar ve çoklu stres faktörleri: Tatlı sulardaki deneyimsel araştırmaların durumunu sentezlemek. WIREs Water 10, e1641. doi: 10.1002/wat2.1641
- Pubmed Abstract
- CrossRef
- Google Scholar
-
He, F., Zarfl, C., Bremerich, V., David, J. N. W., Hogan, Z., Kalinkat, G. ve diğerleri (2019). Tatlı suların devasa hayvanlarının küresel azalması. Glob. Change Biol. 25, 3883–3892. doi: 10.1111/gcb.14753
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Hébert, M., Symons, C. C., Cañedo‐Argüelles, M., Arnott, S. E., Derry, A. M., Fugère, V., et al. (2023). Lake salinization drives consistent losses of zooplankton abundance and diversity across coordinated mesocosm experiments. Limnol. Oceanogr. Lett. 8, 19–29. doi: 10.1002/lol2.10239
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Heino, J., Melo, A. S., Bini, L. M., Altermatt, F., Al‐Shami, S. A., Angeler, D. G., et al. (2015). A comparative analysis reveals weak relationships between ecological factors and beta diversity of stream insect metacommunities at two spatial levels. Ecol. Evol. 5, 1235–1248. doi: 10.1002/ece3.1439
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Herbert, E. R., Boon, P., Burgin, A. J., Neubauer, S. C., Franklin, R. B., Ardón, M., et al. (2015). A global perspective on wetland salinization: ecological consequences of a growing threat to freshwater wetlands. Ecosphere 6, 1–43. doi: 10.1890/ES14-00534.1
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Hsieh, T. C., Ma, K. H., Chao, A. (2016). iNEXT: an R package for rarefaction and extrapolation of species diversity (Hill numbers). Methods Ecol. Evol. 7, 1451–1456. doi: 10.1111/2041-210X.12613
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Hu, H., Wei, Y. (2006). The Freshwater Algae of China: Systematics, Taxonomy and Ecology (Beijing, China: Science Press).
- Google Scholar
-
Irigoien, X., Huisman, J., Harris, R. P. (2004). Global biodiversity patterns of marine phytoplankton and zooplankton. Nature 429, 863–867. doi: 10.1038/nature02593
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Jeppesen E. Beklioğlu M. Özkan K. Akyürek Z. (2020).
İklim değişikliği nedeniyle artan tuzluluğun iç sular üzerinde kapsamlı olumsuz etkileri olacak: yerel ve küresel ölçekte çok yönlü araştırmalar için çağrı. Innovation1, 100030. doi: 10.1016/j.xinn.2020.100030- Pubmed Abstract
- CrossRef
- Google Scholar
-
Kaczmarek N. Benlasri M. Schäfer R. B. Aabid A. Nothof M. Lazrak K. ve ark. (2024).
Marokko’daki Draa Havzası’nda tuzlu-tuzlu olmayan birleşim noktaları çevresinde tuzluluğa makro omurgasız topluluklarının verdigi tepkiler. Hydrobiologia851, 2189–2204. doi: 10.1007/s10750-023-05445-7- Pubmed Abstract
- CrossRef
- Google Scholar
-
Kaushal S. S. Likens G. E. Mayer P. M. Shatkay R. R. Shelton S. A. Grant S. B. ve ark. (2023).
İnsan kaynaklı tuz döngüsü. Nat. Rev. Earth Environ.4, 770–784. doi: 10.1038/s43017-023-00485-y- Pubmed Abstract
- CrossRef
- Google Scholar
-
Kelly M. G. Free G. Kolada A. Phillips G. Warner S. Wolfram G. ve ark. (2024).
Tatlı su tuzluluğuna karşı koymak: Mevcut kriterler yeterli mi? WIREs Water11, e1694. doi: 10.1002/wat2.1694- Pubmed Abstract
- CrossRef
- Google Scholar
-
Koste W. (1978). Rotatoria: Die Rädertiere Mitteleuropas (Berlin:
Gebrüder Borntraeger).- Google Scholar
-
Legendre P. Legendre L. (2012). Numerical Ecology. 3rd English Edition (Amsterdam, The Netherlands:
Elsevier Science BV).- Google Scholar
-
Liborio C. H. L. (2025).
Çeşitli taksonomik gruplar arasında beta-çeşitlilik, çevresel heterojenlik ve mekansal yayılım arasındaki ampirik değerlendirmeler. Acta Limnol. Bras.37, e27. doi: 10.1590/s2179-975×10124- Pubmed Abstract
- CrossRef
- Google Scholar
-
LuoL.WangX.WangZ. (2025).
Batı Songnen Ovası’nın sulak alanlarının ekosistem sağlığındaki değişimlerin belirlenmesi (2000–2020). Water17, 3175. doi: 10.3390/w17213175- Pubmed Abstract
- CrossRef
- Google Scholar
-
LynchA. J.CookeS. J.ArthingtonA. H.BaigunC.BossenbroekL.DickensC.et al. (2023).
İnsanlar tatlı su biyoçeşitliliğine muhtaçtır. WIREs Water10, e1633. doi: 10.1002/wat2.1633- Pubmed Abstract
- CrossRef
- Google Scholar
-
MoffettE. R.BakerH. K.BonadonnaC. C.ShurinJ. B.SymonsC. C. (2023).
Sierra Nevada’de tatlı su tuzlaşmasının plankton toplulukları üzerindeki zincirleme etkileri. Limnol. Oceanogr. Lett.8, 30–37. doi: 10.1002/lol2.10177- Pubmed Abstract
- CrossRef
- Google Scholar
-
OksanenJ.SimpsonG. L.BlanchetF. G.KindtR.LegendreP.MinchinP. R.et al. (2026). Vegan: Topluluk Ekoloji Paketi. Çevrimiçi erişim: https://r-project.org (Erişim tarihi: 13 Nisan 2026).
- Google Scholar
-
PadisákJ.CrossettiL. O.Naselli-FloresL. (2009).
Fitoplankton işlevsel sınıflandırmasının kullanım ve kötü kullanımı: güncellemelerle kritik bir inceleme. Hydrobiologia621, 1–19. doi: 10.1007/s10750-008-9645-0- Pubmed Abstract
- CrossRef
- Google Scholar
-
PadisákJ.Naselli-FloresL. (2021).
Aşır ortamlarda fitoplankton: yaşama alanının sürekliliğinin önemi ve sonuçları. Hydrobiologia848, 157–176. doi: 10.1007/s10750-020-04353-4- Pubmed Abstract
- CrossRef
- Google Scholar
-
PereraH.JayawardanaC.ChandrajithR. (2024).
Tatlı su tuzlaşması: nedenlerin, uyum mekanizmalarının, ekolojik etkilerin ve yönetim stratejilerinin ortaya çıkarılması. Environ. Monit. Assess.196, 1195. doi: 10.1007/s10661-024-13388-2- Pubmed Abstract
- CrossRef
- Google Scholar
-
Perri S, Molini A, Hedin L. O., Porporato A. (2022). Kuraklık ve mevsimsellik küresel tuzlanma üzerinde zıt etkiler. Nat. Geosci.15, 375–381. doi: 10.1038/s41561-022-00931-4
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Raven J. A., Gobler C. J., Hansen P. J. (2020). Kıyı, ağız gölü ve karasularında dinamik CO2 ve pH düzeyleri: Zararlı alg patlamaları üzerinde kuramsal ve gözlemlenen etkiler. Harmful Algae91, 101594. doi: 10.1016/j.hal.2019.03.012
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Reid A. J., Carlson A. K., Creed I. F., Eliason E. J., Gell P. A., Johnson P. T. J. ve ark. (2019). Tatlı su biyoçeşitliliği için ortaya çıkan tehditler ve süregelen koruma zorlukları. Biol. Rev.94, 849–873. doi: 10.1111/brv.12480
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Rousseeuw P. J. (1987). Siluetler: Kümelemenin yorumlanması ve doğrulanması için grafiksel bir yardımcı. J. Comput. Appl. Math.20, 53–65. doi: 10.1016/0377-0427(87)90125-7
- CrossRef
- Google Scholar
-
Schmutz S, Sendzimir J. (2018). Nehir Ekosistemi Yönetimi: Sürdürülebilir Bir Gelecek İçin Yönetişim İçin Bilim. Düz. Schmutz S, Sendzimir J. (Cham: Springer International Publishing). doi: 10.1007/978-3-319-73250-3
- CrossRef
- Google Scholar
-
Shao Z, Xie P, Zhuge Y. (2001). Süzerek beslenen balıklarla baskın olan subtropik bir Çin gölündeki planktonik rotiferlerin uzun süreli değişimleri. Freshw. Biol.46, 973–986. doi: 10.1046/j.1365-2427.2001.00731.x
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Shi J, Lu K, Xu L, Liu J, Wu H. (2026). Tuzluluk gradyanları, Kuzeydoğu Çin’in karasularındaki sulak alanların su biyoçeşitliliği örüntülerini ve ağ yapılarını şekillendirir. Ecosyst. Health Sustain.12, 483. doi: 10.34133/ehs.0483
- CrossRef
- Google Scholar
-
Soininen J. Korhonen J. J. Karhu J. Vetterli A. (2011). Prokaryotik ve eukaryotik göl planktonunun topluluk bileşimindeki mekânsal örüntülerin çözülmesi. Limnol. Oceanogr. 56, 508–520. doi: 10.4319/lo.2011.56.2.0508
- CrossRef
- Google Scholar
-
Solano‐Udina C. Carmona M. J. García‐Roger E. M. (2026). Dörtlülerde çevresel değişkenliğe uyum yanıtları: Yorgunluktan çıkışta plastisite ve bet hedging’in bütünleştirilmesi. Ecology 107, e70346. doi: 10.1002/ecy.70346
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Soons M. B. (2006). Tatlı su bataklıklarında rüzgâr yoluyla yayılma: Koruma ve restorasyon için bilgi. Appl. Veg. Sci. 9, 271–278. doi: 10.1111/j.1654-109X.2006.tb00676.x
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Sousa F. D. R. Elmoor-Loureiro L. M. A. Mendonça-Galvão L. Simões N. R. (2025). Bataklıklardaki çevresel heterojenlik, kladoserenlerin (Crustacea, Branchiopoda) yerel ve bölgesel düzeydeki alfa ve beta çeşitliliğini artırır. Acta Limnol. Bras. 37, e101. doi: 10.1590/s2179-975×2624
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Štrojsová M. Suga K. Hagiwara A. Vrba J. (2009). Besin miktarı ve kalitesinin euryalin dörtlü Brachionus plicatilis Müller popülasyon büyüme hızı ve sindirim aktivitesi üzerindeki etkisi. Int. Rev. Hydrobiol. 94, 706–719. doi: 10.1002/iroh.200811138
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Sui F. Zang S. Fan Y. Ye H. (2016). Çin Songnen Ovası göllerindeki fitoplankton topluluklarının özellikleri üzerinde farklı tuzlu-alkali koşulların etkileri. PloS One 11, e0164734. doi: 10.1371/journal.pone.0164734
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Tackley H, Kurylyk B L, Lake C B. (2025). Derya suları girişinin estuarylara yakın toprak ve yeraltı suları hassasiyeti. WIREs Water 12, e70031. doi: 10.1002/wat2.70031
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Teittinen A, Muukkonen P, Soininen J. (2025). Kutup göllerinde fitoplankton ve zooplankton biyoçeşitliliği ile ilişkili taksonlar arası uyum ve faktörler. Freshw. Biol. 70, e70057. doi: 10.1111/fwb.70057
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Vári Á, Podschun S A, Erős T, Hein T, Pataki B, Iojă I.-C. ve ark. (2022). Tatlı su sistemleri ve ekosistem hizmetleri: Disiplinler arası işbirliğinin zorlukları ve olanakları. AMBIO 51, 135–151. doi: 10.1007/s13280-021-01556-4
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Walsh E J, Schröder T, Wallace R L, Ríos-Arana J V, Rico-Martínez R. (2008). Meksika Chihuahuan Çölündeki seçili karasal tuzlu sulardaki rotiferler. Saline. Syst. 4, 7. doi: 10.1186/1746-1448-4-7
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Wang B, Li X, Gao Z, Jia Z, Liang Z. (2025a). Çin Songnen Ovasında 100 m çözünürlükte toprak tuzluluğu dinamiğinin 40 yıllık veri seti (1985–2024). Sci. Data 12, 1783. doi: 10.1038/s41597-025-06057-7
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Wang P, Long Y, Wang L, Lu R, Xiao E, Wu Z. (2025b). Suyun fizikokimyasal özellikleri su altı büyük bitkilerin dağılımını şekillendirir: Songnen Ovası sulak alan restorasyonu için çıkarımlar. Front. Plant Sci. 16, 1716202. doi: 10.3389/fpls.2025.1716202
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Wang Y, Shen X, Jiang M, Lu X. (2020).
2000-2016 yılları arasında Kuzeydoğu Çin’deki Songnen Ovası bataklıklarında bitki örtüsündeki değişim ve bunun değişen iklime tepkisi. Sustainability12, 3569. doi: 10.3390/su12093569- Pubmed Abstract
- CrossRef
- Google Scholar
-
Wang Y, Shen X, Tong S, Zhang M, Jiang M, Lu X. (2022).
Batı Songnen Ovasında iklim değişimi altında nemli alan bitki örtüsünün karasal biyokütlesi. Front. Plant Sci.13, 941689. doi: 10.3389/fpls.2022.941689- Pubmed Abstract
- CrossRef
- Google Scholar
-
Westgate M. J, Barton P. S, Lane P. W, Lindenmayer D. B. (2014).
Küresel meta-analiz, biyoçeşitlilik uyumluluk ilişkilerinin düşük tutarlılığını ortaya koyuyor. Nat. Commun.5, 3899. doi: 10.1038/ncomms4899- Pubmed Abstract
- CrossRef
- Google Scholar
-
Witman J. D, Etter R. J, Smith F. (2004).
Deniz bentonik topluluklarında bölgesel ve yerel tür çeşitliliği arasındaki ilişki: Küresel bir bakış açısı. Proc. Natl. Acad. Sci. U.S.A.101, 15664–15669. doi: 10.1073/pnas.0404300101- Pubmed Abstract
- CrossRef
- Google Scholar
-
Yu H, Wang Z, Mao D, Jia M, Chang S, Li X. (2023).
Çin’in Batı Songnen Ovasında toprak tuzlanmasının mekânsal ve zamansal değişimleri. Land Degrad. Dev.34, 2366–2378. doi: 10.1002/ldr.4613- Pubmed Abstract
- CrossRef
- Google Scholar
-
Zadereev E, Drobotov A, Anishchenko O, Kolmakova A, Lopatina T, Oskina N ve ark. (2022).
Sibirya göllerinde tuzluluk ve besin durumu hayvansal plankton toplulukları ve besin yapısı üzerinde yapılandırıcı etkiler. Water14, 1468. doi: 10.3390/w14091468- Pubmed Abstract
- CrossRef
- Google Scholar
-
Zhou J, Leavitt P. R, Zhang Y, Qin B. (2022).
Sığ göllerde insan kaynaklı ötrofikasyon: Bu rastlantısal mı? Water Res.221, 118728. doi: 10.1016/j.watres.2022.118728- Pubmed Abstract
- CrossRef
- Google Scholar
-
Zhou L, Lemmen K D, Zhang W, Declerck S A J (2018). Kaynak P sınırlamasının doğrudan ve dolaylı etkilerinin bir zooplankton tüketicisinin popülasyon büyümesi, yaşam tarihi ve vücut element bileşimini farklı şekillerde etkilemesi. Front. Microbiol. 9, 172. doi: 10.3389/fmicb.2018.00172
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Zhou B, Sun X, Peng D, Nistal‐García A, García‐Girón J, Jiang X (2026). Çevresel filtrelemenin, yüksek irtifalı bir nehir-göl sisteminde fitoplankton taksonomik ve fonksiyonel beta çeşitliliği ile mekânsal yapılandırma arasında daha güçlü ilişki göstermesi. Freshw. Biol. 71, e70184. doi: 10.1111/fwb.70184
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Zuo W, Peng Y, Zuo A, Jin K (2026). Önerilen Songnen Ovası Turna Anavatanı Ulusal Parkı için biyoçeşitlilik ve ekosistem hizmetlerine dayalı öncelikli koruma alanlarının belirlenmesi. Glob. Ecol. Conserv. 66, e04085. doi: 10.1016/j.gecco.2026.e04085
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Zuur A F, Ieno E N, Elphick C S (2010). Yaygın istatistiksel sorunlardan kaçınmak için veri keşfi protokolü. Methods Ecol. Evol. 1, 3–14. doi: 10.1111/j.2041-210X.2009.00001.x
- Pubmed Abstract
- CrossRef
- Google Scholar
Özet
Anahtar kelimeler
alpha çeşitlilik, beta çeşitliliğinin ayrıştırılması, taksonlar arası karşılaştırma, hill sayısı, tuzlanma
Atıf
Chen X, Tong X, Wang Z, Zhou Y, Pan C, Ma C ve Wang Y (2026) Kuzeydoğu Çin’deki tuzlu-alkali sulak alanlarda fitoplankton ve rotifer topluluklarının yerel tepkilerde farklılık göstermesi ancak bölgesel dönüşümde benzerlik göstermesi. Front. Ecol. Evol. 14:1949514. doi: 10.3389/fevo.2026.1949514
Müracaat tarihi
27 Temmuz 2026
Düzeltme tarihi
06 Eylül 2026
Kabul tarihi
25 Ekim 2026
Yayım tarihi
13 Kasım 2026
14 – 2026
Xiaoyan Zhu, Jilin Jianzhu Üniversitesi, Çin
Fangze Zi, Pekin Kimyasal Teknoloji Üniversitesi, Çin
Rachid Chaibi, Laghouat Üniversitesi, Cezayir
© 2026 Chen, Tong, Wang, Zhou, Pan, Ma ve Wang.
Bu makale, Creative Commons Atıf Lisansı (CC BY) koşulları altında erişime açık olarak dağıtılmıştır. Orijinal yazar(lar)ın ve telif hakkı sahib(lar)ının kabul gören akademik uygulamalar doğrultusunda atıf yapılması ve bu dergideki orijinal yayının gösterilmesi şartıyla, diğer platformlarda kullanım, dağıtım veya çoğaltma mümkündür. Bu koşullara uymayan herhangi bir kullanım, dağıtım veya çoğaltma izin verilmez.
*İletişim: Yingying Wang, wangyy3020@163.com
Bu makalede ifade edilen tüm iddialar yalnızca yazarlara aittir ve bağlı oldukları kuruluşların, ya da yayıncının, editörlerin ve hakemlerin görüşlerini kesin olarak yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.