OJİNAL ARAŞTIRMA MAKALESİ
Front. Ecol. Evol., 10 Kasım 2026
Sec. Popülasyon, Topluluk ve Ekosistem Dinamikleri
Cilt 14 – 2026 | https://doi.org/10.3389/fevo.2026.1951546
- MD
M. Duľa 1,2† *
- RM
R. Michalko 1†
- JK
J. Kubala 3,4†
- JK
J. Krojerová-Prokešová 5,6†
- BG
B. Gajdárová 5,7†
- MB
M. Bojda 1,2
- JB
J. Bučko 8†
- MH
M. Homolka 5†
- JL
J. Labuda 1,2
- BM
B. Machciník 9
- MS
M. Slamka 8†
- BT
B. Tám 10,11†
- MK
M. Kutal 1,2†
-
1. Orman Ekolojisi Bölümü, Orman Bilimleri ve Orman Teknolojisi Fakültesi, Brno Mendel Üniversitesi, Brno, Çekya
-
2. Dünya dostları Çekya Cumhuriyeti, Etçillerin Korunması Programı, Olomouc, Çekya
-
3. Uygulamalı Zooloji ve Yaban Hayatı Yönetimi Bölümü, Orman Bilimleri Fakültesi, Zvolen Teknik Üniversitesi, Zvolen, Slovakya
-
4. DIANA – Karpatlar Yaban Hayatı Araştırmaları, Banská Bystrica, Slovakya
-
5. Çekya Bilimler Akademisi, Omurgalı Biyoloji Enstitüsü, Brno, Çekya
-
6. Zooloji, Balıkçılık ve Hidrobioloji Bölümü, Tarım Bilimleri Fakültesi, Brno Mendel Üniversitesi, Brno, Çekya
-
7. Botanik ve Zooloji Bölümü, Bilimler Fakültesi, Masaryk Üniversitesi, Brno, Çekya
-
8. Orman Politikası, Orman İşletmeciliği ve Av Yönetimi Bölümü, Ulusal Orman Merkezi, Zvolen, Slovakya
-
9. Slovak Cumhuriyeti Devlet Doğal Koruma Kurumu, Strážovské vrchy Korunan Peyzaj Alanı İdaresi, Považská Bystrica, Slovakya
-
10. Ulusal Zoolojik Bahçe Bojnice, Zoolojik Departman, Bojnice, Slovakya
-
11. Tarım Biyolojisi ve Gıda Kaynakları Fakültesi, Küçük Hayvan Bilimleri Bölümü, Nitra Slovak Tarım Üniversitesi, Nitra, Slovakya
Makale metrikleri
Özet
Avrupa tilkisinin (
Lynx lynx carpathicus
Merkez Avrupa’da vaşak koruma ve popülasyon güçlendirmenin en önemli yerel kaynak popülasyonlarından birini temsil eden bu popülasyonun, av seçimini etkileyen ekolojik etkenler hâlâ iyi anlaşılmamış durumdadır. Batı Karpatlar’da vaşakların diyet bileşimini ve av seçimini etkileyen etkenleri araştırdık. Bu araştırmada GPS telemetrisi ile sistematik av ölüm noktaları incelemelerini, kar izi takibini, dışkı analizini, kamera tuzaklarını ve dışkılardan bireysel vaşak tanımlamada kullanılan mikrosatelit genotipleştirmeyi birleştiren entegre bir yaklaşım kullandık. Birden fazla dağ bölgesinde toplanan 446 artan av kalıntısı ve 386 dışkı örneğine dayanarak, vaşak diyetinin baskın biçimde yaban çiftırnaklarıyla domine edildiğini, bunların artan av kalıntılarının %96,0’ını ve tüketilen toplam biyokütlenin %96,3’ünü oluşturduğunu tespit ettik. Keçirisi (
Capreolus capreolus
) başlıca av türüydü; artan av kalıntılarının %64,6’sını ve tüketilen biyokütlenin %69,0’ını temsil ediyordu. Bunu ardıç (
Cervus elaphus
; sırasıyla %27,6 ve %24,8) izledi. Çiftıraklı topluluklarının bileşimindeki ve alternatif avların kullanılabilirliğindeki belirgin değişimlere rağmen keçirisi tüm çalışma alanlarında tutarlı biçimde olumlu yönde seçildi. Buna karşılık ardıç tüketimi, kendi göreli kullanılabilirliğiyle arttı ve özellikle kış aylarında erkeklerde daha sık görüldü; bu da av kullanımında bağlama bağımlı bir esnekliğe işaret ediyor. İkiırnaklı olmayan avlar diyete yalnızca önemsiz düzeyde katkı sağladı ve vaşak yaşı, sosyal statüsü veya popülasyon yoğunluğunun av seçimini önemli ölçüde etkilediğine dair belirgin bir bulgu bulmadık. Bulgularımız, Karpat vaşaklarının keçirisi üzerinde güçlü biçimde özelleşmeye devam ettiğini, ancak belirli ekolojik koşullar altında alternatif ikiırnaklı avları kullanma kapasitesini koruduğunu gösteriyor. Bu bulgular, önemli bir Avrupa vaşak popülasyonundaki avcı-av etkileşimlerine dair anlayışımızı derinleştiriyor ve vaşak ile onun avının koruma ve yönetiminde önemli bir bilimsel dayanak sağlıyor. Entegre yaklaşımımız ve bulularımız aynı zamanda vaşakların eski dağılım alanında doğal yeniden yerleşme, popülasyon güçlendirmesi ve yeniden sokmayla toparlanırken avcı-av ilişkilerini öngörmede ekolojik bir temel değer sağlıyor.
Giriş
Avlanma, av popülasyonlarını düzenleyerek ve besin zincirinin farklı basamakları üzerinde ardıl etkiler oluşturarak ekolojik toplulukları temelden şekillendirebilir; bu özellikle avcı popülasyonlarının ekolojik açıdan işlevsel yoğunluklarda varlığını sürdürdüğü durumlarda söz konusudur. Bu etkilerin gücü dolayısıyla yalnızca avcının varlığına değil, aynı zamanda avcı bolluğuna ve avcı-av etkileşimlerinin yoğunluğuna bağlıdır (Terborgh ve Estes, 2013; Ripple ve ark., 2014). Avcılar rastgele avlanmaz: avın mevcutluğu, savunmasızlığı, sağladığı enerji, risk ve yaşam alanı gibi unsurlara dayanan en iyi beslenme kuramı, avcıların enerji kazancını en üst düzeye çıkarırken riski en aza indiren avları önceliklendirmesini öngörür (MacArthur ve Pianka, 1966; Stephens ve Krebs, 1986). Ampirik çalışmalar, av seçiminin ekolojik gradyanlar boyunca değiştiğini doğrulamıştır (ör. Ståhlberg ve ark., 2017); yine de birkaç etçil beslenme çalışması betimleyici kalmakta, tür içi çeşitliliği ve ekolojik bağlamı sıklıkla göz ardı etmektedir.
Çok sayıda büyük etçil, çeşitli ve bol alternatif av barındıran ekosistemlerde yaşasa bile beslenme uzmanları olarak değerlendirilir (Molinari-Jobin ve ark., 2007). En iyi beslenme kuramı, avcıların av kullanımını avın kârlılığı ve mevcutluğuna göre uyum sağlayacak şekilde düzenlemesi gerektiğini öngörür (Stephens ve Krebs, 1986); ancak ampirik çalışmalar, zıt ekolojik bağlamlarda ısrarlı av tercihlerinin sürdüğünü defalarca göstermiştir (Odden ve ark., 2006; Nagl ve ark., 2022). Avcıların bu özelleşmeyi, esnek av kullanım kapasitesiyle nasıl dengelediklerini anlamak, avcı ekolojisinde önemli bir zorluk olmaya devam etmektedir.
Büyük etcillerin ekosistemler içindeki ekolojik rolünü açıklamak, avcı-av etkileşimlerini şekillendiren faktörleri anlamaya dayanır. Etciller, avlanma yoluyla av popülasyonlarını doğrudan, davranışsal yanıtlar yoluyla dolaylı olarak etkileyebilir ve bu etkilerin besin basamakları boyunca yayılması mümkündür (Treves ve Karanth, 2003; Terborgh ve Estes, 2013; Ripple et al., 2014). Av seçimi, bu etkilerin gücünü ve dağılımını belirlediğinden, avcının avlanma kararlarının ardındaki mekanizmaları anlamak, etcillerin av toplulukları ve ekosistem dinamikleri üzerindeki etkilerini öngörmek için esastır. Önemli olan, besin ekolojisinin güçlü bir insan boyutu olmasıdır; çünkü büyük etcillerin hangi türleri avladığına dair algılar, genellikle onların varlığı ve yönetimine yönelik tutumları şekillendirir. Besin ve avlanma etkileri hakkındaki yanlış anlayışlar, olumsuz kamu tutumlarına katkıda bulunabilir ve koruma çalışmalarını engelleyebilir; özellikle büyük etcillerin tarihsel gerilemelerinin ardından geri döndüğü insan baskınlandışlı alanlarda bu durum söz konusudur (Chapron et al., 2014; Kaczensky et al., 2024a). Dolayısıyla, besin ekolojilerin kesin bir şekilde anlaşılması, ancak ekolojik rollerini değerlendirmek için değil, aynı zamanda kanıta dayalı yönetimi bilgilendirmek ve kamu kabulünü artırmak için de önemlidir. Avrasya aslanı (Lynx lynx), Avrupa’daki yayılış alanının büyük bir bölümünde, yaban ayığının (Capreolus capreolus) özelleşmiş bir avcısı olarak kabul edilir (ör. Breitenmoser ve Haller, 1993; Nowicki, 1997; Molinari-Jobin et al., 2007; Krofel et al., 2011). Ancak, geyik (Cervus elaphus), vaşık (Rupicapra rupicapra), tavşangiller veya büyükbaş küçükbaş hayvanlar gibi alternatif avların önemi bölgelere göre önemli ölçüde değişmektedir (Nowicki, 1997; Breitenmoser ve Haller, 1993; Belotti et al., 2015; Khorozyan ve Heurich, 2023; Buzan et al., 2024). Bu değişkenlik, av seçiminin, tercih edilen avlara yönelik özelleşme ile yerel olarak ulaşılabilir alternatifleri kullanmadaki esneklik arasında bir dengeyi yansıttığını gösterir ve Avrasya aslanını (bundan sonra aslan olarak anılacaktır) av seçiminin ekolojik sürücülerini incelemek için kullanışlı bir model haline getirir.
Yırtıcıların beslenme ve avlanma ekolojisi Avrupa genelinde geniş şekilde incelenmiş olsa da (ör. Jędrzejewski ve ark., 1993; Nowicki, 1997; Odden ve ark., 2006; Molinari-Jobin ve ark., 2007; Krofel ve ark., 2011; Belotti ve ark., 2015; Melovski ve ark., 2022; Khorozyan ve Heurich, 2023), Avrupa’daki en önemli yerel güçlü üreme alanlarından biri olan Karpatlar, buna karşılık görece az incelenmiştir. Başlıca koruma önemi göz önüne alındığında, bu bölgeden beslenme bileşimi, av seçimi ve beslenme davranışına ilişkin nicel kanıtlar son derece sınırlıdır (ör. Okarma, 1984; Hell ve ark., 2004; Duľa ve ark., 2023). Bu nedenle, Karpatların yırtıcılarının (Lynx lynx carpathicus) Avrupa’nın diğer bölgelerinde bildirilen aynı derecede geyik özelleşmesini gösterip göstermediği, yoksa bölgenin çeşitli çift tırnaklı topluluklarına karşı daha esnek bir tepki mi verdiğini söylemek zorudur. Bu açığın giderilmesi hem ekolojik teori hem de uygulanan koruma açısından önem taşır. Karpatların yırtıcıları, Orta ve Batı Avrupa’da süregelen popülasyon güçlendirme ve yer değiştirme programlarının başlıca kaynak popülasyonlarından birini oluşturur (Bonn Lynx uzman Grubu, 2021; Krofel ve ark., 2025); bu da beslenme ekolojilerine dair ayrıntılı bir anlayışı özellikle ilgili kılar. Av tercihlerinin ve trofik esnekliğin nicelendirilmesi, avcı-av dinamiklerine dair anlayışımızı artırırken aynı zamanda koruma planlamasını, popülasyon yönetimini ve hem kaynak hem de geri yerleştirilen popülasyonların uzun vadeli sürdürülebilirliğini bilgilendirebilir.
Kısrakların (geyik) beslenmede baskın olması ve tüm çalışma alanında birincil av türünü temsil etmesi bekleniyordu. Türün Avrupa menzilinin geniş bir alanında kirk sakallıların geyiklere yönelik güçlü özelleşimi rapor edildiği için (Nowicki, 1997; Odden et al., 2006; Molinari-Jobin et al., 2007; Krofel et al., 2011; Belotti et al., 2015; Khorozyan and Heurich, 2023), alternatif ungulat avların bol olduğu alanlarda bile geyiklerin olumlu seçilmeye devam edeceğini varsaydık (Nowicki, 1997; Belotti et al., 2015; Duľa and Krofel, 2020). Aynı zamanda, av kullanımının yerel av topluluklarına göre değişeceğini bekledik. Özellikle, kızıl geyiğin kirk sakallı beslenmesindeki katkının yerel mevcudiyetiyle artacağını, bu da av kullanımında bağlama bağlı esnekliği yansıtacağını öngördük (Nagl et al., 2022). Daha büyük bedenli avların, daha yüksek avlanma kapasitesine sahip bireyler için daha erişilebilir olması nedeniyle, kızıl geyiğin yetişkin kirk sakallıların beslenmesinde, özellikle erkeklerde ve avın maruz kalmasının arttığı dönemlerde daha sık görülmesini bekledik. Son olarak, yerel kirk sakallı yoğunluğunun ve bireysel özelliklerin av seçimini etkileyip etkilemediğini ve av kullanımında bireysel varyasyon kanıtının tespit edilebileceğini araştırdık (Gossow and Honsig-Erlenburg, 1985; Okarma et al., 1997; Belotti et al., 2015).
Bu hipotezleri test etmek için GPS telemetrisi, sistematik ölüm noktaları araştırması, dışkı analizi, kamera tuzakları ve mikrosatelit genotipleştirmesini birleştirdik. Güçleri ve tespit yanlılıkları açısından birbirinden farklı tamamlayıcı yöntemleri entegre ederek bu yaklaşım, kirk sakallı beslenmesinin bileşimi ve av seçiminin kapsamlı bir değerlendirmesini sağlar. Bu nedenle çalışmamız, özelleşmiş büyük bir etcilde, Avrupa’daki en önemli sığınaklardan birinde kalıcı av tercihleriyle ekolojik esnekliği nasıl dengelediğine dair yeni içgörüler sunmaktadır.
Malzemeler ve yöntemler
Çalışma alanı
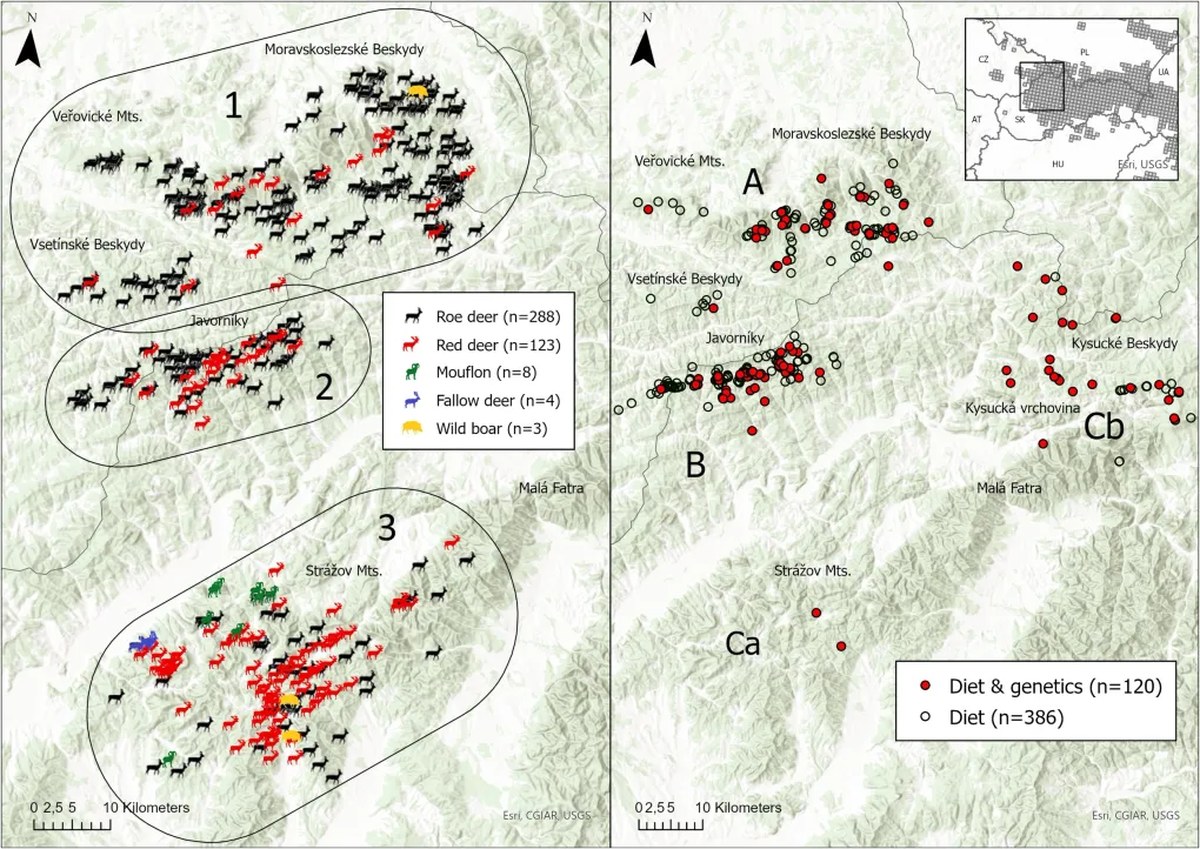
Çalışma, Karpatlar’ın batı ucundaki birkaç dağ sırasında, 0.26 ile 1.85 vaşak/100 km² arasında değişen bir vaşak yoğunluğu kenar-çekirdek gradyanı boyunca yürütüldü (Şekil 1) (Duľa ve ark., 2021). Çalışma bölgesi, 350 ile 1709 m yükseklik arasında değişen belirgin yükseklik farklılıkları göstermekte ve ortada kar kalıcılığının Kasım ortalarından Mart sonu ya da Nisan’a kadar sürdüğü soğuk dağ iklimine katkıda bulunmaktadır (Tolasz ve ark., 2007; Bochníček ve Hrušková, 2015). Tüm çalışma alanı büyük ölçüde ormanlarla kaplıdır. Beskydy ve Javorníky Dağları’nın çevresel bölgelerinde ormanlar başlıca İskandinavya lisesi (Picea abies) baskınlığındadır; doğal ormanlar ise esas olarak korunan doğa rezervlerinde sınırlıdır. Öte yandan Strážov Dağları büyük ölçüde Avrupa meşesi (Fagus sylvatica) ormanlarıyla kaplıdır. Ormancılık, avcılık, turizm ve tarım dahil insan kaynaklı kullanım, farklı habitat parçalanması ve insan etkisi düzeylerine sahip heterojen bir peyzaj oluşturmuştur (Kubala ve ark., 2020; Duľa ve ark., 2021).
Şekil 1
Çizgi ayının dağılım alanının çekirdeğini oluşturan Kysucká vrchovina, Kysucké Beskydy, Oravská Magura, Malá Fatra ve Strážov Dağları’nda Avrasya çizgi ayısının, boz kurdu (Canis lupus) ve kahverengi ayının (Ursus arctos) kalıcı olarak varlığı ve uzun süreli üremesi düzenli olarak belgilenmiştir. Buna karşılık, Javorníky Dağları’nda, dağılım alanının ara bölümünü temsil eden ve çevresine yakın konumlanan Beskydy Dağları’nda ise üreme doğrulaması çoğunlukla çizgi ayısı ve kuşlar için raporlanmıştır (Kutal ve ark., 2017; Kubala ve ark., 2020; Duľa ve ark., 2021; yazarların yayımlanmamış verileri; Şekil 1). Çalışma alanında, ceylan, bükrek geyiği, dam geyiği (Dama dama), muflon (Ovis gmelini) ve yaban domuzu (Sus scrofa) dahil çeşitli ve yoğun bir çift tırnaklı topluluğu bulunur. Buna ek olarak, kahverengi tavşan gibi orta boyutlu ve kemirgenler ya da böcekçiller gibi küçük memeliler de avcilerin envanterleri, hasat raporları ve yazarın yayımlanmamış verileri işaretinde bölgede çizgi ayısı için potansiyel av kaynağı sağlar. Çizgi ayısı popülasyon yoğunluğundaki ve büyük etcillerin varlığındaki farklılıklarla birlikte bu çeşitlilik, zıt ekolojik koşullar altında av seçimi ve beslenme esnekliğini değerlendirmek için bir fırsat sunmuştur.
Avın tespit edilmesi ve dışkı toplama
İriyaka av artıkları, on bir iriyaka birey üzerinde GPS telemetri izlemesi (12/2018−11/2021) ve kar örtüsü üzerinde iriyaka izlerini takiben hem fırsatçı hem de tesadüfen gerçekleştirilen izlenmelerle (2/2010−2/2021) sistematik olarak tespit edildi; çalışma alanları üç bölgeydi: Javorníky Dağları, Beskydy Dağları (Moravskoslezské Beskydy, Vsetínské Beskydy ve Veřovické Dağları’nı içeren) ve Strážov Dağları (Lučánská Malá Fatra’nın bir bölümünü içeren; Şekil 1). Toplamda dokuz erkek ve iki dişi iriyaka, GPS GSM/Iridium tasmalarla donatıldı (Lotek Small WildCell/Litetrack Iridium 250, Lotek Wireless, Newmarket, Ontario, Kanada; Vertex lite, Vectronic Aerospace, Berlin, Almanya; Tellus Iridium, Followit AB, İsveç; Ekleme Tablo 1; Ekleme Veri Sayfası 1). Hayvanların yakalanması ve elle işlenmesi için izinler, Beskydy İdaresi PLA’sinden, Çek Cumhuriyeti Çevre Bakanlığından (izin numaraları: SR/0031/BE/2019; MZP/2020/630/167) ve Slovak Cumhuriyeti Çevre Bakanlığından (izin numarası: 7402/2013-2.2366/2016-2.3; 6933/2019-9.2 [7/19-rozkl.]) alındı. Olası av öldürme noktaları, Inventa Wildlife izleme sisteminin (Vectronic Aerospace) kümeleme hizmet modu, Followit GEO izleme sisteminin (Followit AB) ve GPS Web Hizmetinin (Lotek Wireless) sağladığı olanaklar ya da telemetri verilerinin konum kümelemesi analizi (Krofel ve ark., 2013) ArcGis yazılımı (ESRI, Redlands, CA, ABD) kullanılarak belirlendi. Bu kümeler, av artıklarını bulmak amacıyla sahadan sistematik olarak tarandı; incelemeler Javorníky Dağları’nda 3/2019 ile 11/2019 arasında, Beskydy Dağları’nda 4/2020 ile 10/2021 arasında ve Strážov Dağları’nda 12/2018 ile 9/2021 arasında gerçekleştirildi. Her belirlenen av öldürme noktasında, avın cinsiyeti (erkek, dişi) ve yaş kategorisi (genç, 1 yaşından küçük bireyler ve yetişkin) kaydedildi (Duľa ve Krofel, 2020; Duľa ve ark., 2023). Mümkün olduğu durumlarda, iriyaka ziyaretlerini av artıkları üzerinde belgelemek amacıyla öldürme noktasına kamera tuzakları yerleştirildi; bu tuzaklar iriyaka tanımına yardımcı olmak için görüntü veya video kaydetti.
Kedigillerin beslenmesinde küçük ve orta boyda avların da belirlenmesi ile kedigillerin bireysel ve cinsiyet belirlemesi için genetik analizlerin kolaylaştırılması amacıyla, dışkı örnekleri Ocak 2009’dan Nisan 2021’e kadar çeşitli dağlık bölgelerde toplanmıştır (Şekil 1; Ek Veri Sayfası 1). Dışkı tespiti, kış aylarında kedigillerin kar izlerini takip ederek; daha sıcak mevsimlerde ise orman yolları, patikalar, kayalık sırtlar veya çoğunlukla işaretleme noktalarında yer alan bilinen “kedigiller tuvaletleri” boyunca yürüyerek gerçekleştirilmiştir (Sidorovich, 2006). Sonracier analizler için toplam 446 artığı av kalıntısı ve 386 dışkı örneği toplanmıştır. Örneklerin durum ve yaşındaki farklılıklar nedeniyle, 134 dışkı örneği yalnızca beslenme analizleri için; 120 dışkı örneği ise kedigillerin bireysel genotiplendirmesi için beslenme analizleri ile birlikte kullanılmıştır (Şekil 1; Ek Veri Sayfası 1).
Beslenme bileşiminin analizi
Mütrler, Krofel ve arkadaşlarının (2011) açıkladığı şekilde, 0,5 göz çapında elekten yıkama, 60−70 °C’de kurutma ve tartma dahil olmak üzere standartlaştırılmış protokollerle işlenmiş ve analiz edilmiştir. Av tanımlama, kemikler, kopyalar, arka kopyalar, pençeler, tüyler ve kıl makroskopik muayenesi ile belirleme anahtarları kullanılarak mikroskobik kıl analizi (De Marinis ve Asprea, 2006; Teerink, 1991; Tóth, 2017) ve farklı vücut bölümlerinden, yaş sınıflarından ve mevsimlerden kapsayan, çeşitli çift tırnaklı türlerden toplanan referans kıl örnekleriyle karşılaştırma yoluyla gerçekleştirilmiştir. Tek bir mütre örneği içinde birden fazla besin öğesi tespit edildiğinde, her öğe ayrı ayrı tartılmış veya orani görsel olarak tahmin edilmiştir. Beslenme bileşimi, Krofel ve arkadaşlarının (2011) ve Melovski ve arkadaşlarının (2022) açıkladığı yöntemlere göre oluşum sıklığı (%FO), bağıl oluşum sıklığı (%RFO) ve tüketilen toplam biyokütle yüzdesi (%TCB) kullanılarak niceliksel olarak belirlenmiştir. Sıklık temelli ölçümler ve biyokütle tahminleri beslenme bileşiminin farklı yönlerini yakaladığı için üç ölçüm de raporlanmıştır. Tüketilen toplam biyokütle (%TCB), av kategorilerinin enerjetik katkısını değerlendirmede özellikle bilgilendirici bulunurken, %FO ve %RFO, Avrasya porsuğu beslenme çalışmalarıyla karşılaştırmayı kolaylaştırmaktadır. Beslenme bileşenlerinin biyokütle tahminleri, Rühe ve arkadaşlarının (2008) yöntemine göre kuru madde ağırlığının sindiril katsayılarıyla çarpılmasıyla elde edilmiştir (Tablo 1; Ekle Veri Sayfası 1). Bitki materyali, TCB hesaplamalarından hariç tutulmuştur (Krofel ve arkadaşları, 2011).
Tablo 1
| Av öğesi | %FO | %RFO | %TCB | TCB (g) | CF |
|---|
| Tespit edilemeyen geyikgiller | 32.38 | 28.94 | 30.97 | 48880.66 | 81 |
| Sürüngen Capreolus capreolus | 46.89 | 41.9 | 47.64 | 75199.19 | 81 |
| Kırmızı geyik Cervus elaphus | 13.21 | 11.81 | 17.14 | 27058.05 | 81 |
| Yaban domuzu Sus scrofa | 2.07 | 1.85 | 0.59 | 930.69 | 81 |
| Yaban çift tırnaklılar toplamı | 94.56 | 84.49 | 96.34 | 152068.59 | 81 |
| Yaban tavşanı Lepus europaeus | 4.67 | 4.17 | 2.66 | 4193.94 | 48 |
| Tespit edilemeyen orta boy memeli | 0.26 | 0.23 | 0.07 | 104.64 | 48 |
| Orta boy memeliler toplamı | 4.92 | 4.4 | 2.72 | 4298.58 | 48 |
| Avrupa su sıçanı Arvicola amphibius | 0.26 | 0.23 | ≤ 0.05 | 23.52 | 24 |
| Saz sıçanı Clethrionomys glareolus | 0.26 | 0.23 | ≤ 0.05 | 59.76 | 24 |
| Küçük sincap Mustela nivalis | 0.26 | 0.23 | ≤ 0.05 | 11.28 | 24 |
| Yenilebilir sincap Glis glis | 0.52 | 0.46 | 0.19 | 295.44 | 24 |
| Fareler Apodemus sp. | 1.3 | 1.16 | 0.14 | 221.76 | 24 |
| Yarasa Sorex sp. | 0.52 | 0.46 | ≤ 0.05 | 54.42 | 24 |
| Sincap Mustela sp. | 0.26 | 0.23 | ≤ 0.05 | 1.92 | 24 |
| Sıçan Microtus sp. | 1.3 | 1.16 | 0.18 | 288.24 | 24 |
| Belirlenemeyen küçük memeli | 1.3 | 1.16 | 0.29 | 458.16 | 24 |
| Küçük memeller toplamı | 5.96 | 5.32 | 0.90 | 1414.5 | 24 |
| Ev keçisi Capra hircus | 0.26 | 0.23 | ≤ 0.05 | 65.61 | 81 |
| Bitkisel madde | 6.22 | 5.56 | – | – | – |
| Diğerleri toplamı | 6.48 | 5.79 | ≤ 0.05 | 65.61 | Değişken |
| Toplam dışkı | 386 |
Batı Karpatlar’daki vaşıkların diyeti, dışkı analizlerine (n=386) dayanmakta ve oluşum sıklığı (%FO), bağıl oluşum sıklığı (%RFO) ve tüketilen toplam biyokütle yüzdesi (%TCB) olarak ifade edilmektedir.
Biyokütle tahminleri, Rühe ve ark. (2008) tarafından belirlenen düzeltme faktörleri (CF) kullanılarak hesaplanmıştır. Bitkisel madde, TCB hesaplamalarından hariç tutulmuştur.
Kalın metin ve değerler ana av kategorilerini göstermektedir.
Beslenme örüntülerindeki değişimler
Ana türlerin (keçiboğası, bökürtü ve kahverengi tavşan) oluşumunun ve av demografik özelliklerinin (cinsiyet ve yaş sınıfı) vaşık cinsiyeti, yaş sınıfı ve sosyal durumuna göre değişip değişmediğini inceledik. Her türün tespitini ikili bir yanıt değişkeni olarak ele alan, logit bağlantılı ikili genelleştirilmiş karışık modeller (GLMM’ler) kullandık (1 = tespit edildi, 0 = tespit edilmedi; Ekleme Veri Sayfası 2). Av cinsiyeti ve yaşının analizlerinde yanıt benzer şekilde ikiliydi: erkek/genç av 1, dişi/yetişkin av ise 0 olarak kodlandı. Vaşık cinsiyeti, yaş sınıfı ve sosyal durum sabit etkiler olarak, bireysel vaşık kimliği ise aynı bireyden alınan tekrarlı örnekleri dikkate almak için rastlantısal eğim olarak modele dahil edildi. Model terimleri, tam modeli her bir açıklayıcı çıkarılarak oluşturulan indirgenmiş modellerle karşılaştıran olasılık oranı testleriyle değerlendirildi. Tüm modeller başarıyla ıslah oldu, tekillik göstermedi, aşırı dağılıma dair bir kanıt bulunmadı ve açıklayıcılar arasındaki doğrusal ilişki düşüktü. Bireysel vaşık için rastlantısal eğimler, bireyler arası değişkenliği yakaladı; tahmin edilen etkilerin güvenilirliğini artırdı ve tespit edilen örüntülerin bireysel vaşıklar arasındaki farklardan kaynaklanmadığını gösterdi.
Bireysel vaşakların av kullanımı arasındaki bireysel farklılıkları değerlendirmek için, bireysel diyetlerde geyik oluşumunun göreli sıklığındaki farklılıkları inceledik. Analizler, bireysel av kullanımı örüntülerinin sağlam tahminlerini sağlamak amacıyla yalnızca en az on av gözlemi bulunan bireylerle sınırlandı (Ek Veri Sayfası 2). Gözlemlenen erkekler arası farklılığın rastlantısal beklentiyi aşıp aşmadığını değerlendirmek için permütasyon temelli testler kullanıldı. Her permütasyonda geyik etiketleri, geyik kayıtlarının toplam sayısı ve her erkek başına düşen av kayıtları sayısı korunarak av kayıtları arasında rastlantısal olarak yeniden dağıtıldı. Bu, geyik oluşumunun erkek kimliğinden bağımsız olduğu bir sıfır dağılımı üretti. İlk olarak, test istatistiği olarak bireysel geyik RFO değerlerinin standart sapması kullanılarak küresel bir permütasyon testi uygulandı. Bu, erkeklerin geyik kullanımında rastlantısal olarak beklenenden daha fazla farklılık gösterip göstermediğini test etti. İkinci olarak, en uç gözlemlenen erkeğin, rastlantısal av ataması altında beklenenden daha uç olup olmadığını belirlemek için sağlam max-statistik permütasyon testi kullanıldı. Bu testte, diğer tüm erkeklerin ortalamasından maksimum pozitif sapma her permütasyonda yeniden hesaplandı. Bu prosedür, en uç bireyin post hoc seçimini hesaba katarak bireysel özelleşme için muhafazakâr bir test sağlar. Son olarak, her erkeğin gözlemlenen sapması diğer tüm erkeklerin ortalamasına karşı max-statistik permütasyon dağılımının maksimum sapmasıyla karşılaştırılarak bireysel düzeyde max-düzeltilmiş p-değerleri hesaplandı. Erkekler, yalnızca sapmaları pozitifse ve max-statistik düzeltme sonrasında anlamlılığını koruyorsa, sağlam potansiyel geyik özelleşmecileri olarak sınıflandırıldı. Tüm analizler R’da gerçekleştirildi (R Core Team, 2025).
Av erişilebilirliğinin hesaplanması
Her çalışma alanında (Beskyda Dağları, Javorníky Dağları, Strážov Dağları; Şekil 1) çift tırnaklıların tür bileşimi ve göreceli bolluğu, avcı envanterleri ve hasat raporlarına dayanarak tahmin edilmiştir. Veriler Ulusal Orman Merkezi’nin resmi veri tabanlarından (Strážov Dağları, Slovak Beskyda kısmı ve Javorníky Dağları) ve Beskyda’nın Çek kısmındaki yedi yerel idari birimden ile Javorníky Dağları’ndan (PLA Beskydy) elde edilmiştir. Yalnızca avlanma sahalarından, av artıkları ve dışkıların toplandığı alanda alınan veriler dikkate alınmıştır. Çift tırnaklı popülasyonlarının olası düşük tahmininden kaynaklanabilecek hataları en aza indirmek için, Plhal ve Kamler (2012) tarafından geliştirilen ters hesaplama yöntemi kullanılmış; her tür için beklenen üreme oranı (RR) ve popülasyonun öngörülen cinsiyet oranı kullanılmıştır. Ceylan, bökü, yaban domuzu, dağ koyunu veHint bozayı için aşağıdaki RR değerleri uygulanmıştır: sırasıyla 0,80, 0,75, 3,20, 0,85 ve 0,85 (Değerler Çek Tarım Bakanlığı’nın av planlarının oluşturulması hakkındaki 491/2002 sayılı yönetmeliğinden alınmıştır). Bu değerler, her tür için mevcut aralığın alt ucundan seçilmiş ve Kutal ve ark. (2016)’nın belirttiği dağ ormanlarında azalmış üretkenlik hesaba katılmıştır. Son olarak, çalışma alanları ve zaman dilimleri için seçilen çift tırnaklı türlerinin (ceylan, bökü, Hint bozayı, dağ koyunu, yaban domuzu) göreceli bolluğu (yüzde) ve yoğunluğu (birey/km²) ayrı ayrı hesaplanmış ve bu değerler çalışma alanları boyunca av erişilebilirliğini karakterize etmek için kullanılmıştır (Ekleme Veri Sayfası 2, 3).
Bireysel tanıma ve demografik özelliklerin atanması
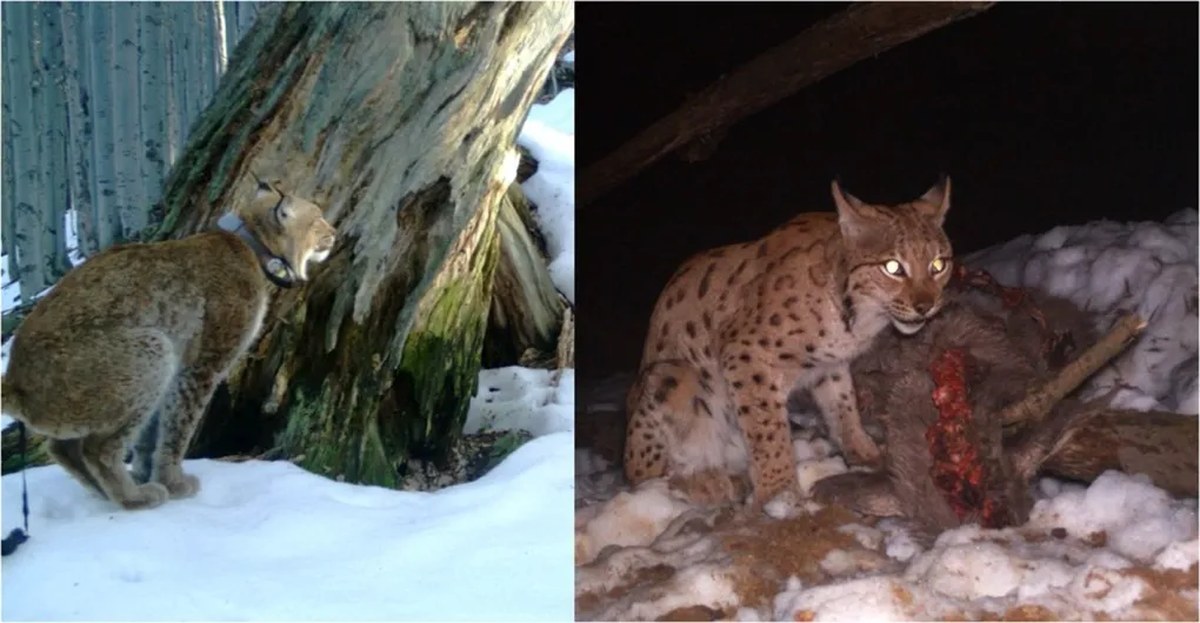
Bireysel düzeyde beslenme bileşimi ve av seçimi değerlendirmek için, toplanan dışkıların mikrosatelit genotipleme analizleri, Krojerová-Prokešová ve ark. (2019) ile Gajdárová ve ark. (2021) yöntemlerine uygun olarak telemetri verileriyle desteklendi. Bireysel kimlik ve demografik özellikler (cinsiyet, yaş grubu ve sosyal statü); genetik analizler, telemetri izleme ve işaretleme alanlarından veya kar izi takibinden (n=10) ve öldürme alanlarından (n=46) elde edilen kamera tuzak kayıtlarından yapılan fotoğraflı tanımlamanın birleşimiyle belirlendi (Şekil 2; Ekleme Veri Sayfası 1). Porsuk yaş grubu iki kategoriye ayrıldı: yetişkin (A), iki yaşından büyük birey olarak tanımlanır; yetişkin olmayan (S), bilinen yaşam geçmişi (bilinen anne kimliği ve doğum yılı dahil) olan, yaşamının ikinci yılında bağımsızlaşmış birey olarak tanımlanır (Duľa ve ark., 2021). Sosyal statü iki kategoriye ayrıldı: yalnız bireyler, bir yaşından büyük tüm bağımsız yetişkin veya yetişkin olmayan porsukları kapsar; aile grupları ise yavruları eşlik eden yetişkin dişileri kapsar (Duľa ve ark., 2021). Atamalar, çok mevsimli sistematik kamera tuzaklamasıyla oluşturulan uzun süreli bir fotoğraflı veri tabanıyla çapraz doğrulandı (Krojerová-Prokešová ve ark., 2019; Kubala ve ark., 2020; Duľa ve ark., 2021; yazarın yayımlanmamış verileri).
Şekil 2
Av seçiminin değerlendirmesi ve etki eden faktörlerin analizi
Besin seçimi analizleri, artıklardan ve dışkıdan belirlenen çift tırnaklılardan ve besin erişilebilirliği tahminlerine dayanmaktaydı. Bireysel çift tırnaklı türlerinin besin topluluğundaki erişilebilirliklerine göre tercihleri, her bir bölge alanında (Beskydy Dağları, Javorníky Dağları, Strážov Dağları) için Jacobs’ın seçicilik indeksi D (Jacobs, 1974) kullanılarak nicelendirildi. Seçicilik indeksinin hesaplanmasına ilişkin formül aşağıdaki gibidir: D= (r−p)/(r + p−2rp), burada r karaca tarafından öldürülen toplam çift tırnaklı içinde belirli bir besin türünün oranını, p ise bu türün çift tırnaklı topluluğundaki oranını temsil eder. D değerleri −1 (türün tamamen kaçınıldığını gösterir) ile 1 (türün maksimum pozitif seçildiğini gösterir) arasında değişir. Seçicilik indeksi üç karaca kategorisi için hesaplandı: 1) tüm bireyler (erkekler, dişiler/aile grupları, belirsiz), 2) erkekler, 3) dişiler (aile gruplarını dahil ederek; Ek Veri Sayfası 3).
Peyin seçiminin geyik ve kızıl yaban koyunu arasındaki değişimi ile potansiyel ilişkili faktörleri belirlemek için, peyin kimliğini ikili bir yanıt değişkeni olarak modelledik (kızıl yaban koyunu = 1; geyik = 0). Mufflon, yaban koyunu ve yaban domuzu tanımlanan peyin artıkları arasında nadiren yer aldığından, sonraki analizler iki baskın toynaklı türle sınırlandı. Peyin erişilebilirliği, peyin yoğunluğu, pardin yoğunluğu ve pardin demografik özelliklerinin peyin seçimi üzerindeki etkisini değerlendirmek için bilgi kuramsal bir yaklaşım kullanıldı. Süreklilik kovaryatların (ör. peyin erişilebilirliği/yoğunluğu ve pardin yoğunluğu) ve kategorik öngörücülerin (ör. pardin cinsiyeti, pardin sosyal durumu ve mevsim) birleşimlerini içeren 31 rekabetçi model geliştirildi (Ek Tablo 2; Ek Veri Sayfası 2). Modeller, Akaike Bilgi Kriteri (AIC) ile derecelendirildi; iki AIC biriminden az fark gösteren modeller (ΔAIC < 2,0) benzer ampirik destek taşıdığı kabul edildi. Doğrusal olmayan ilişkilerin beklenmesi nedeniyle, binom hata dağılımı ve logit bağlantı fonksiyonu içeren Genişletilmiş Katışıklı Etki Modelleri (GAMM) (GAMM-b) kullanıldı (Baudrot ve ark., 2016). Kızıl yaban koyunu yoğunluklarının yalnızca altı benzersiz değere sahip olması nedeniyle, düğüm sayısı beşe indirildi. Bireysel pardin kimliği tüm modellerde rastlantısal etki olarak dahil edildi. Peyin seçimini değerlendirmek için, uydurma ilişkilerin güven aralıklarının geyik ve kızıl yaban koyununun eşit seçimini temsil eden kuramsal çizgiyle örtüşüp örtüşmediğini inceledik (Baudrot ve ark., 2016). GAMM ve GLMM’ler, basit rastlantısal etkilerin dahil edilmesine olanak tanıyan R ‘mgcv’ paketinin ‘gam’ fonksiyonu ile uyduruldu (Pekar ve Brabec, 2019). Model tanımlamaları, aşırı dağılımın etkisi olmadığını gösterdi (φ = 1,0). İstatistiksel çıkarım, tahmin edilen etki büyüklükleri, ilgili belirsizlik ve test istatistikleri üzerine kuruldu ve α = 0,05 geleneksel bir eşik değeri olarak kullanıldı. Tüm analizler R’da gerçekleştirildi (R Core Team, 2022).
Sonuçlar
Peyin bileşimi
Toplamda 446 artan av kalıntısı ve 386 dışkıdan belirlenen 22 farklı av türü bulunuyor (Tablo 1, 2 ; Ekleme Veri Sayfası 1). Keçeişiği, tüm belirlenen av kalıntılarının %64,6’sını (n = 288) oluşturarak en sık rastlanan av türüydü; onu %27,6 oranıyla (n=123) merkeci ve %2,2 oranıyla (n=10) yaban koyonu izledi. Geriye kalan tüm av türleri, kaydedilen av öğelerinin bireysel olarak %2’sinden azını oluşturdu (Tablo 2; Ekleme Tablosu 1).
Tablo 2
| Beskyda Dağları | Javorníky Dağları | Strážov Dağları | Toplam | |||||
|---|---|---|---|---|---|---|---|---|
| Avcı türü | Sayı | % | Sayı | % | Sayı | % | Sayı | % |
| Keçeişiği (Capreolus capreolus) | 185 | 83,3 | 55 | 67,9 | 48 | 33,6 | 288 | 64,6 |
| Büyükayı (Cervus elaphus) | 20 | 9,0 | 23 | 28,4 | 80 | 55,9 | 123 | 27,6 |
| Yaban koyunu (Ovis gmelini) | 1 | 0,5 | 0 | 0,0 | 9 | 6,3 | 10 | 2,2 |
| Şuh tavşan (Lepus europaeus) | 6 | 2,7 | 2 | 2,5 | 0 | 0,0 | 8 | 1,8 |
| Ev güvercini (Columba livia f. domestica) | 4 | 1,8 | 1 | 1,2 | 0 | 0,0 | 5 | 1,1 |
| Sika geyiği (Dama dama) | 0 | 0,0 | 0 | 0,0 | 4 | 2,8 | 4 | 0,9 |
| Kızıl tilki (Vulpes vulpes) | 3 | 1,4 | 0 | 0,0 | 0 | 0,0 | 3 | 0,7 |
| Yaban domuzu (Sus scrofa) | 1 | 0,5 | 0 | 0,0 | 2 | 1,4 | 3 | 0,7 |
| Ev tavuğu (Gallus gallus domesticus) | 1 | 0,5 | 0 | 0,0 | 0 | 0,0 | 1 | 0,2 |
| Sıradan ötleğen (Turdus merula) | 1 | 0,5 | 0 | 0,0 | 0 | 0,0 | 1 | 0,2 |
Av kalıntıları, Batı Karpatlar’daki üç çalışma alanında tilkiden tespit edilmiştir: Beskyda Dağları (Moravskoslezské Beskydy, Veřovické Dağları ve Vsetínské Beskydy dahil), Javorníky Dağları ve Strážov Dağları (Lučanská Malá Fatra’nın bir kısmı dahil).
Vertigiller, 12/2018–11/2021 tarihleri arasında avlanan bireylerin GPS ile izlenmesi ve 2/2010–2/2021 arasında gerçekleştirilen olası kar izi taramalarıyla elde edildi.
Kalın değerler, her bir av türü için kayıtların toplam sayısını göstermektedir.
Çalışma alanları arasında av bileşiminde belirgin coğrafi değişkenlik gözlemlendi. Beskydy Dağları’nda (av kalıntılarının %83,3’ü) ve Javorníky Dağları’nda (%67,9) beslenmede yaban ayısı baskındı; Strážov Dağları’nda ise ana av türü 55,9%’luk tanımlanmış av kalıntısı oranıyla geyik olurken, yaban ayısı oranı %33,6 olarak kaydedildi. Strážov Dağları’nda muflon ve ceylan yerel düzeyde beslenmeye katkı sağlarken, domuz ayısı ve diğer av türleri tüm çalışma alanlarında yalnızca nadiren görüldü (Tablo 2; Ekleme Tablo 1).
Kedi dışkılarının analizi, av kalıntılarından gözlemlenen beslenme örüntüsüne benzer bir desen ortaya koydu. Yabani çift tırnaklılar, tüketilen toplam biyokütlenin (%TTB) %96,3’ünü oluştururken, orta boy ve küçük memeliler sırasıyla TTB’nin yalnızca %2,7 ve %0,9’unu katkıda bulundu. Tanımlanmış çift tırnaklı avlar arasında (n=261) yaban ayısı, tüketilen biyokütlenin en büyük oranını oluştururken, onu sırasıyla geyik (%24,8) izledi. Kahverengi tavşan en önemli olmayan çift tırnaklı av türü olsa da, tüketilen toplam biyokütlenin yalnızca %2,7’sini sağladı. Kemirgenler, böcekçiller ve küçük gelincikgiller dahil diğer tüm av öğeleri yalnız nadiren görüldü ve beslenmeye kolektif olarak ihmal edilebilir düzeyde katkıda bulundu (Tablo 1).
Toplam 392 av kalıntısı (%87,9) ve 142 dışkı (%36,8), 61 ayrı kedi bireyine (40 dişi ve 21 dişi) atandı; bu da demografik gruplar arasında av kullanımındaki değişkenliğin sonraki analizlerini olanaklı kıldı (Ekleme Veri Sayfası 1). Yabani çift tırnaklılar, bireysel beslenmede baskındı ve oluşum sıklığının (OS) %96,5’ini oluştururken, orta boy ve küçük memeliler önemli ölçüde daha az yaygındı ve sırasıyla OS’nin %2,4 ve %1,3’ünü oluşturdu.
Avlanma örüntüleri genel olarak tilki demografik kategorileri arasında tutarlıydı (Şekil 3). Kızıl geyik avları arasında, tilki erkekleri kızıl geyik avını diilere göre daha sık tüketmişti (23,3% ile 6,6%; OR ≈ 4,3; GLMM’ler, χ² = 4,28, p = 0,0385). Buna karşılık, ova geyiği ve kahverengi tavşanın oluşumu tilki cinsiyeti, yaş sınıfı veya sosyal durum açısından anlamlı biçimde farklılık göstermedi. (Şekil 3). Tilkiler öncelikle yetişkin (68,4%) ve dii (74,4%) çift tırnaklıları avladı (Ekleme Tablosu 1). Tilki kategorileri arasında av yaş sınıfı veya cinsiyet bileşiminde, genç av tüketimi hariç, anlamlı bir farklılık tespit edilmedi. Yetişkin tilkilerin genç çift tırnaklıları genç yetişkinlere göre tüketme olasılığı daha yüksekti (36,6% ile 19,5%; GLMM’ler, χ² = 4,61, p = 0,0318). Sosyal durum ayrıca genç av oluşumunun anlamlı bir öngörücüsü olarak korundu (GLMM’ler, χ² = 5,10, p = 0,024); ancak bunun aile grubu kategorisindeki küçük örneklem büyüklüğünden (n = 5) muhtemelen etkilendiği söylenebilir.
Şekil 3
Erkek lınkların kırmızı geyiklerin oluşum frekansının göreli oranında (RFO) belirgin bireysel değişkenlik gösterdi. Bireysel kırmızı geyik RFO değeri 0.060 ile 0.793 arasında değişti (n=10; Şekil 4A). Genel permütasyon testi, erkekler arasındaki kırmızı geyik RFO değişkenliğinin, kırmızı geyik kayıtlarının rastlantısal ataması altında beklenenden çok daha büyük olduğunu gösterdi. Bireysel RFO değerlerinin gözlenen standart sapması 0.280 iken, permütasyon değerleri belirgin şekilde daha düşüktü. Bu fark son derece anlamlıydı (p = 0.0001) ve erkek lınklar arasında kırmızı geyik kullanımında belirgin bireysel heterojenliği ortaya koydu (Ekleme Şekil 1). Sağlam max-statistik permütasyon testi, gözlenen en güçlü bireysel sapmanın tesadüfen ortaya çıkmasının olası olmadığını doğruladı. En uçtaki erkek ile diğer tüm erkeklerin ortalama RFO arasındaki gözlenen maksimum fark 0.503’tü ve max-statistik düzeltme sonrasında da anlamlı kaldı (p = 0.0012). Böylece, en uçtaki bireyin post hoc seçimi dikkate alındıktan sonra bile veriler, erkeklerin bir alt kümesinde olağandışı yüksek kırmızı geyik kullanımının varlığını destekledi (Ekleme Şekil 2). Bireysel düzeyde max-düzeltmeli testler, iki erkeği sağlam olası kırmızı geyik uzmanları olarak belirledi. İlk erkek Benadik, geri kalan erkeklere göre en güçlü pozitif sapmayı gösterdi (fark = 0.503, p = 0.0012; Şekil 4B), onu Roman izledi (fark = 0.383, p = 0.0084; Şekil 4B). Erkek Olda ve Zoro da yükselmiş kırmızı geyik RFO’su göstermiş olsa da, sapmaları max-statistik düzeltme sonrasında anlamlı değildi (sırasıyla p = 0.0841 ve p = 0.0895; Şekil 4B). Bu bireyler dolayısıyla, yüksek kırmızı geyik oluşumuna sahip erkekler olarak yorumlanmalı, ancak istatistiksel olarak sağlam uzmanlar olarak değil.
Şekil 4
Av seçimi ve etkileyici faktörlerin etkisi
Jacob’ün seçicilik indeksi, iribaşın tüm çalışma alanlarında tutarlı şekilde olumlu seçildiğini gösterdi (Dtoplam=0.46−0.78); oysa çift tırnaklı topluluklar içindeki temsil oranı nispeten düşüktü (3.71−14.67%; Ek Tablo 3). Buna karşın, geyik yalnızca Javorníky ve Strážov Dağları’nda olumlu seçilirken (Dtoplam sırasıyla 0.28 ve 0.25), Beskydy Dağları’nda olumsuz seçildi (Dtoplam=−0.35). Mufflon yalnızca mevcut olduğu yerlerde (Strážov Dağları; Dtoplam=0.73) güçlü biçimde seçilirken, yaban domuzu tüm çalışma alanlarında tutarlı şekilde kaçınıldı (Şekil 5; Ek Tablo 3). Prey seçilişi cinsiyetler arasında genel olarak benzerdi. Hem erkek hem de dişi aslanlar, tüm çalışma alanlarında iribaş için güçlü olumlu seçicilik gösterdi (Derkekler=0.46−0.75; Ddişiler=0.46−0.83). Ancak geyik için olumlu seçicilik yalnızca erkek aslanlarda, Javorníky ve Strážov Dağları’nda gözlemlendi (D=0.40 ve 0.27); her iki cinsiyet de Beskydy Dağları’nda geyik için olumsuz seçicilik gösterdi (D=−0.32; Şekil 5; Ek Tablo 3).
Şekil 5
Jacob’ün seçicilik indeksi iribaşın çalışma alanlarında kalıcı olumlu seçiciliğini göstermiş olsa da, GAMM analizleri iribaşa göre artan geyik kullanımıyla ilişkili faktörleri ortaya koydu. En iyi uyum sağlayan modelde geyiğin göreceli erişilebilirliği, aslan cinsiyeti ve mevsim yer aldı (Ek Tablo 2; R²düzeltilmiş=0.26). Diyetdeki geyik bulunma olasılığı, geyiğin görel erişilebilirliği arttıkça yükseldi (GAMM-b; χ²=40.2, P<0.001; Şekil 6A). Erkek aslanların geyik tüketme olasılığı dişilerden yüksekti (GAMM-b; χ²₂=13.4, P=0.001; Şekil 6A). Ayrıca, prey seçilişi mevsimlere göre değişti (GAMM-b; χ²₃=12.8, P=0.005; Şekil 6B); geyik kullanımının en düşük olasılığı yazın, en yüksek olasılığı ise kışın görüldü.
Şekil 6
Kırmızı geyiklerin varolma olasılığının göreceli bulunurluğuyla artmasına rağmen, oğlan geyiği gözlemlenen bulunurluk yelpazesinin çoğunda baskın av olarak kalmış, özellikle dişilerde (Şekil 6A) bu durum belirgindir. Bu etki erkeklerde dişilere göre belirgin derecede daha güçlüydü. Dişi aslanlar, kırmızı geyiklerin av topluluğunda baskın çift tırnaklı türü oluşturduğu durumlarda bile predominantly oğlan geyiği tüketmeye devam etmiştir (Şekil 6A).
Tartışma
Western Carpathians’ın üç çalışma alanında elde edilen kapsamlı, çoklu yöntemlere dayalı veri setini kullanan araştırmacılar, Avrasya porsuğunun yerel Carpathian popülasyonunda beslenme bileşimini ve av seçimini şekillendiren ekolojik faktörleri değerlendirmiştir. Bulgular, güçlü biçimde çift tırnaklılara dayanan bir beslenmeyi ortaya koymuştur; vahşi çift tırnaklılar hem belirlenen av artıklarının hem de tüketilen biyokütlenin %96’sını oluşturmaktadır. Çift tırnaklı topluluk bileşimindeki belirgin alansal farklılıklara rağmen, ova geyiği tüm çalışma alanlarında tutarlı biçimde olumlu seçilmişken, merkezi geyiğin kullanımı göreceli erişilebilirliğiyle artmış ve avcı cinsiyeti ile mevsime göre değişmiştir. Buna karşılık, çift tırnaklı olmayan avlar beslenmeye yalnızca önemsiz düzeyde katkı sağlamış ve porsuğun yaşı, sosyal statüsü veya popülasyon yoğunluğunun av seçimini önemli ölçüde etkilediğine dair belirgin bir bulgu bulunmamıştır. Genel olarak bu bulgular, ova geyiğinin başlıca av olduğu ve yerel düzeyde bolca bulunan alternatif çift tırnaklıların kullanımında belirgin bağlama bağlı esneklik gösteren birçok Avrupa porsuğu popülasyonundan bildirilen genel örüntüyü desteklemektedir. Çalışmanın merkezinde yer alan bulgulardan biri, ova geyiğinin yerel çift tırnaklı toplulukların yalnızca küçük bir oranını oluşturmasına rağmen tüm çalışma alanlarında olumlu seçilmeye devam etmesidir. Ova geyiği, diğer birkaç Avrupa popülasyonundan bildirilenlere göre beslenmede daha küçük bir oranı oluşturmuş olsa da, en sık tüketilen ve tutarlı biçimde seçilen av türü olarak kalmıştır. Ova geyiğinin beslenmedeki daha düşük katkısı büyük ölçüde Western Carpathians’daki alternatif çift tırnaklı avların daha fazla çeşitliliği ve erişilebilirliğiyle açıklanabilir. Yine de, bolca mevcut alternatif avlara rağmen ova geyiği tutarlı biçimde en yüksek seçicilik değerlerini göstermiş, bu da artan av çeşitliliğinin beslenme esnekliğini teşvik ettiğini ancak ova geyiğine yönelik temel tercihi ortadan kaldırmadığını göstermektedir. Bu benzer tercihler diğer Avrupa popülasyonlarından da elde edilmiş ve genellikle ova geyiğinin beden boyutu, davranışı ve avlanmaya açık olmasıyla açıklanmaktadır; bunlar porsuğun avlanma stratejisi ve enerji gereksinimleriyle yakından örtüşmektedir (Jędrzejewski ve ark., 1993; Jobin ve ark., 2000; Krofel ve ark., 2011;
Mysłajek ve ark., 2021; Odden ve ark., 2006).
Kırmızı geyik, genel olarak ikinci en önemli av türüydü ve yüksek yoğunlukta bulunduğu alanlarda vaşık beslenmesinin önemli bir bileşenini oluşturuyordu. Beskydy ve Javorníky Dağları’nda beslenme içinde yaban keçisi baskındıysa da, Strážov Dağları’nda en sık avlanan tür kırmızı geyik haline geldi; bu da av kaynaklarında belirgin bölgesel farklılıklar olduğunu gösteriyor. Benzer örüntüler, Białowieża Ormanı (Jędrzejewski ve ark., 1993; Okarma ve ark., 1997) ve Bohemya Ormanı (Červený ve Bufka, 1996; Belotti ve ark., 2015) gibi yaban keçisi ve kırmızı geyiğin aynı anda yaşadığı diğer Avrupa bölgelerinden bildirilmiştir. Buna ek olarak, Strážov Dağları’nda muflon ve semiz geyik yerel düzeyde beslenmeye katkıda bulundu; bu da vaşıkların uygun olduğunda alternatif toynaklı avları kolayca değerlendirebildiklerini gösteriyor. Benzer örüntüler, muflon popülasyonlarının bulunduğu Böhm Karstı ve Šumava bölgesi gibi bölgelerden de bildirilmiştir (Červený ve Bufka, 1996; Duľa ve Krofel, 2020). Önemlisi, alternatif av kullanımının artması yaban keçisine yönelik temel tercihi ortadan kaldırmadı. Av bileşiminde belirgin bölgesel değişkenliğe ve bazı alanlarda kırmızı geyiğin yerel baskınlığına rağmen, yaban keçisi tüm çalışma alanlarında tutarlı şekilde seçildi. GAMM sonuçlarıyla birlikte bu bulgular, vaşıkların yerel av kaynaklarına yanıt olarak önemli besin esnekliği gösterdiklerini ancak yaban keçisine yönelik tutarlı tercihi koruduklarını işaret ediyor. Buna karşılık, yaban domuzu ve hayvancılık türleri çalışma alanlarında beslenmeye önemsiz katkıda bulundu. Her iki av türü de bazı Avrupa popülasyonlarında yerel önem kazanabilir; ancak Białowieża Milli Parkı veya Balkan bölgesi gibi diğer bölgelerde vaşıkların yaban domuzunu daha sık avladığı gözlemlenmiştir (Jędrzejewski ve ark., 1993; Melovski ve ark., 2022). Ayrıca, hayvancılık türleri özellikle koyun, Skandinavya’da vaşıklar için vegetasyon döneminde nispeten önemli bir besin bileşeni oluşturmakla birlikte (Sunde ve ark., 2000; Odden ve ark., 2002, 2006; Gervasi ve ark., 2014), çalışma alanındaki düşük görülme sıklığı, yoğun yaban toynaklıların vaşıkların …
Western Carpathians’daki vaşakların enerji gereksinimleri.
Belirlenen çift tırnaklı avların çoğu yetişkin bireyler ve dişilerdi; bu örüntü, Dinar Dağları (Krofel ve ark., 2011), Białowieża Ormanı (Jędrzejewski ve ark., 1993), İsviçre Jura Dağları (Molinari-Jobin ve ark., 2002) ve Norveç’in merkez ile güneydoğusu (Andersen ve ark., 2007) dahil olmak üzere diğer Avrupa popülasyonlarından elde edilen gözlemlerle tutarlıdır. Benzer örüntüler genellikle av demografik grupları arasındaki hassaslık farklarına bağlanmıştır; yetişkin dişiler ve yavrular belirli ekolojik koşullar altında avlanmaya daha açık olabilir (Andersen ve ark., 2007; Krofel ve ark., 2011; Mattison ve ark., 2014). Vaşak demografik kategorileri arasındaki farklar genel olarak zififti, ancak yetişkin vaşakların beslenmelerinde genç bireylerin oranı yetişkinleşmemiş bireylere göre daha yüksekti. Bu bulgu, tersi bir örüntünün gözlemlendiği Norveç’in güneyi ile çelişmektedir (Mejlgaard ve ark., 2013). Ancak bu çalışmada, bu bulgunun çalışma alanında av kullanımındaki biyolojik açıdan tutarlı bir yaşa bağlı farktan çok, veri setindeki yetişkinleşmemiş bireylerin nispeten az sayıda olmasından kaynaklanıyor olması olası olduğundan dikkatle değerlendirilmelidir. Önceki çalışmalar, vaşakların av seçiminin mevsimsel olarak değişebileceğini, doğum döneminde yavrulara yönelik avlanmanın arttığını ve çift tırnaklı av bileşiminin av davranışları ve hassaslığındaki mevsimsel değişimlerle birlikte kayabildiğini göstermiştir (Molinari-Jobin ve ark., 2004; Breitenmoser ve ark., 2010; Mattison ve ark., 2014). Bütün olarak bu bulgular, av demografik özelliklerinin av kullanımındaki çeşitliliğe katkıda bulunabileceğini göstermekle birlikte, altında yatan mekanizmaların daha ayrıntılı incelenmesi gerekmektedir.
Yırtıcılar temel olarak çift tırnaklıların avlarına uzmanlaşmış olsa da, Avrupa’daki tüm yayılış alanında tavşangiller, kemirgenler ve kuşlar dahil geniş bir alternatif av yelpazesi bildirilmiştir (Jobin ve ark., 2000; Krofel ve ark., 2011; Molinari-Jobin ve ark., 2007; Odden ve ark., 2006; Okarma ve ark., 1997; Valdmann ve ark., 2005; Sidorovich, 2006; Vogt ve ark., 2018; Khorozyan ve Heurich, 2023). Bu çalışmada, çift tırnaklı olmayan avlar beslenmenin yalnızca küçük bir oranını oluşturmuş, av kalıntılarının %4’ünü ve tüketilen biyokütlenin %3,7’sini temsil etmiştir. Yaygın tavşan, en sık kaydedilen alternatif av türü olmuştur; ancak katkısı düşük kalmış ve Slovak Karpatları’ndan bildirilen değerlerle (tüketilen biyokütlenin %2,5’i, Hell ve ark., 2004), Dinari Alpları’ndan (tüketilen biyokütlenin %2’si, Krofel ve ark., 2011) ve İsviçre Jurası’ndan (bulunan av kalıntılarının %2’si, Jobin ve ark., 2000) karşılaştırılabilir düzeyde olmuştur. Tetraonidlerin beslenmeden tamamen yokluğu, Slovakya’daki önceki çalışmalardaki varlıkları göz önüne alındığında beklenmedik bir bulgudur; ancak bu durumun, bu türlerin daha sık bulunduğu dağlık çekirdek alanlara kıyasla çalışma alanlarında düşük yoğunluklu olduklarını veya yerel olarak ortadan kalktıklarını yansıtması muhtemeldir (Hell ve ark., 2004; Mikoláš ve ark., 2018a, b). Genel olarak, alternatif avların sınırlı önemi, Batı Karpatlar’daki yırtıcıların wild tırnaklılara yönelik güçlü bağımlılığını bir kez daha vurgulamaktadır.
Lynx beslenmesinin bileşimi, çevresel gradyan boyunca oldukça büyük ölçüde değişmektedir (Jędrzejewski ve ark., 1993; Nowicki, 1997; Khorozyan ve Heurich, 2023) ve bu bileşim, toynaklı avın mevcutluğu ve yoğunluğu, alternatif av türlerinin bolluğu, yırtıcıların demografik özellikleri ve mevsimsel koşullar gibi birbiriyle etkileşen birden fazla faktör tarafından etkilenmektedir (Jędrzejewski ve ark., 1993; Pulliainen ve ark., 1995; Molinari-Jobin ve ark., 2007; Krofel ve ark., 2011; Odden ve ark., 2006; Melovski ve ark., 2020; Khorozyan ve Heurich, 2023). Toynaklı avın az olduğu bölgelerde, porsuklar av ölüm oranlarını düşürebilir ve alternatif av kaynaklarına daha fazla dayanabilir (örneğin, Makedonya’daki Mavrovo Milli Parkı’nda, Melovski ve ark., 2020). Buna karşılık, Batı Karpatlar hem ceylan hem de karaca için son derece zengin popülasyonları desteklemekte ve porsukların son derece toynaklı temelli bir beslenme sürdürmelerine ve Avrupa’daki en yüksek toynaklı av ölüm oranlarından bazılarını korumalarına olanak tanıyan koşullar yaratmaktadır (Duľa ve ark., 2023; Oliveira ve ark., 2025). Bulgularımız, böyle koşullar altında, av kullanımındaki değişimin öncelikle toynaklı topluluk bileşimindeki farklardan kaynaklandığını, alternatif av yönündeki kaymalardan değil (Khorozyan ve Heurich, 2023).
Sonuçlarımız, vaşakların bağlama bağlı besin zinciri esnekliğine dair kanıt sağlıyor. Geyik tüm çalışma alanlarında tutarlı şekilde av olarak seçilirken, merkei geyiğin kullanımı kendi göreceli kullanılabilirliğiyle artmış ve Strážov Dağları’nda beslenmenin geyikten daha büyük bir oranını oluşturmuş. Yaban koyunu ve keçi gibi alternatif çift tırnaklı avlara benzer kaymalar, çayır koyununun önemli bir besin öğesi haline geldiği Alp vaşakları popülasyonları da dahil olmak üzere diğer Avrupa popülasyonlarında kaydedilmiştir (Breitenmoser ve Haller, 1993; Jobin ve ark., 2000; Molinari-Jobin ve ark., 2007; Vogt ve ark., 2018; Nagl ve ark., 2022). Önemlisi, merkei geyiğin artan kullanımı, geyiğe dair temel tercihi ortadan kaldırmamış; geyik, göreceli bolluğu düşük olduğu yerlerde bile olumlu şekilde seçilmeye devam etmiştir. Bu örüntü, vaşakların av kullanımını yerel av kullanılabilirliğine göre ayarladığını ancak geyiğe dair kalıcı bir tercihi koruduğunu gösteriyor. Tahminimize tersine, vaşak popülasyon yoğunluğundaki değişimin beslenmede merkei geyiğin geyiğe göre ortaya çıkma olasılığını etkilediğine dair bir kanıt bulamadık. Bu nedenle sonuçlar, çalışma sistemimizde av seçimini şekillendirmede tür içi rekabetin büyük bir rolü olduğuna dair bir dayanak sunmuyor. Bununla birlikte, yoğunluğa bağlı besin kaymaları başka yerlerde bildirilmiştir; en olası olarak, çayır koyununun artan kullanımı yüksek vaşak yoğunluklarıyla ilişkilendirilen Alp vaşakları popülasyonlarında. Bu nedenle, vaşak av seçimini şekillendirmede tür içi rekabetin rolü bağlama bağlı olabilir ve daha kapsamlı incelemeler gerektiriyor.
Önceki çalışmalar, birkaç Avrupa popülasyonunda (örneğin, Molinari-Jobin ve ark., 2007; Okarma ve ark., 1997; Krofel ve ark., 2011) pardinin beslenmesinde cinsiyet, yaş ve sosyal statüye göre değişkenlik bildirmiştir; ancak bu farkların Skandinavya ve Karelya’da daha az belirgin olduğu görülmüştür (Pulliainen ve ark., 1995; Sunde ve Kvam, 1997; Odden ve ark., 2006). Bu çalışmalarla uyumlu olarak, av kullanımında nispeten sınırlı demografik değişkenlik tespit ettik. Keçiboğası tüketimi pardi kategorileri boyunca dikkate değer derecede kararlı kaldı; önemli farklar başlıca merkei (bökücü) geyiği kullanımında belirlendi. Erkek pardiler, dişilere göre bökücü geyiği tüketme olasılığının daha yüksek olduğunu gösterdi; bu da avcının cinsiyetinin daha büyük alternatif av türlerinin kullanımını etkileyebileceğini düşündürüyor. Erkek pardiler, bökücü geyiği kullanımında belirgin bireysel değişkenlik göstermiş olsa da, istatistiksel analizler belirgin bireysel özelleşmeyi; daha önceki anlatısal gözlemler ise aynı yönde işaret etmiştir (Gossow ve Honsig-Erlenburg, 1985); bu örüntü dikkatle yorumlanmalıdır. Olası bir bökücü geyiği özelleşmecisi olarak tanımlanan iki erkek, çalışma alanlarının tümü içinde bökücü geyiği erişiminin en yüksek olduğu Strážov Dağları’nda bulunuyordu. Bu mekânsal örtüşme, gözlemlenen farkların başlıca yerel av erişimi ve buna bağlı karşılaşma fırsatları tarafından yönlendiriliyor olabileceği; bireysel pardilerin içsel özelleşmesinden çok, bu yönde güçlü bir işareti işaret ediyor. Ayrıca, bökücü geyiği kullanımı mevsimsel olarak değişmiş ve beslenmede en yüksek oluşum olasılığı kışın gözlemlenmiştir. Benzer cinsiyete özgü ve mevsimsel örüntüler Bohemya Ormanları, Białowieża Ormanları ve Güney Norveç’ten bildirilmiştir (Okarma ve ark., 1997; Belotti ve ark., 2013; Gervasi ve ark., 2014). Makul bir açıklama, kış koşullarının hareket kabiliyetinde azalma ve fiziksel durumun kötüleşmesi yoluyla bökücü geyiğinin savunmasızlığını artırarak pardiler için avlanma fırsatlarını iyileştirmesi olabilir (Gossow ve Honsig-Erlenburg, 1985; Nilsen ve ark., 2009). Genel olarak, mevsimsel hava koşulları ve av savunmasızlığındaki değişimlerin, geniş kapsamlı büyük etciller sisteminde avcı-av etkileşimlerini etkilediği bilinmektedir (Huggard, 1993).
Son çalışmalar, moleküler yaklaşımların özellikle DNA metabarkoding’in, geleneksel dışkı analizleriyle tespit edilmesi zor olabilecek nadir veya düşük sıklıklı besin ögelerinin tespitini iyileştirebileceğini göstermiştir (McInnes ve ark. 2017; Massey ve ark., 2021; Buzan ve ark., 2024). Bu nedenle çalışmamızda bazı az miktarda bulunan av türlerinin miktarı düşük tahmin edilmiş olabilir. Ancak geleneksel yöntemler tüketilen biyokütle hakkında bilgi sağlar ve karaca beslenme ekolojisine dair geniş kapsamlı önceki araştırma birikimiyle doğrudan karşılaştırma imkanı sunar. Gelecek çalışmalar, hem taksonomik ayrımı hem de besinin nicel değerlendirmesini iyileştirmek için moleküler ve geleneksel yaklaşımları bir araya getirmekten yararlanabilir. Ayrıca av kullanılabilirliği, doğrudan nüfus araştırmaları yerine av istatistikleri ve ters hesaplama yöntemleriyle tahmin edilmiştir. Bu tahminler dolayısıyla göreceli av kullanılabilirliğinin standartlaştırılmış göstergeleri olarak yorumlanmalı ve tekne popülasyonundaki yerel değişimi tam olarak yansıtmayabilir. Ayrıca cinsiyete dayalı karşılaştırmalar dikkatli yorumlanmalıdır; çünkü taksıllı kadın karacaların sayısı ve kadınlara atanan av kayıtları erkeklerdekinden daha azdır. Analizler çoklu örnekleme yaklaşımlarını birleştiren daha kapsamlı bir veri setini içerse de bu dengesizlik, cinsiyete ilişkin farkları tespit etmede istatistiksel gücü azaltmış olabilir.
Sadece dışkıların %31’inin birleştirilmiş analizlere (beslenme ve genetik) uygun bulunduğu ve örneklerin %65,2’sinin (dışkıların %36,8’i ve av artıklarının %87,9’u) bireysel karacalara atanabildiği bu çalışmada, telemetri, av artıkları analizi, dışkı analizi, kamera tuzakları ve genetik tanımlamanın birleştirilmesi, av kullanımındaki bireysel farklılıkları incelemek için sağlam bir çerçeve sunmuştur. Farklı güçlü ve zayıf yönleri olan çoklu tamamlayıcı yöntemi birleştiren çalışmamız, Karpatlar Bölgesi’nden elde edilen en kapsamlı karaca beslenme ekolojisi değerlendirmelerinden birini sunmaktadır.
Açıklamalar
Veri erişilebilirliği açıklaması
Çalışmada sunulan özgün katkılar makalede ve Ekleme Materyali‘nde yer almaktadır. İleri düzeydeki başvurular ilgili yazar’a yönlendirilebilir.
Etik beyanı
Hayvan çalışması, yakalama ve elde tutma izinleri Çek Cumhuriyeti Çevre Bakanlığı’ndan (izin numaraları: SR/0031/BE/2019; MZP/2020/630/167) ve Slovak Cumhuriyeti Çevre Bakanlığı’ndan (izin numarası: 7402/2013-2.2366/2016-2.3; 6933/2019-9.2 [7/19-rozkl.]) alınarak onaylanmıştır. Çalışma, yerel mevzuat ve kurumsal gerekliliklere uygun olarak yürütülmüştür.
Yazar katkıları
MD’A: Kavramsal çerçeve, Veri düzenleme, Biçimsel analiz, Fon edinme, Araştırma, Metodoloji, Proje yönetimi, Kaynaklar, Doğrulama, Görselleştirme, Yazım – taslak, Yazım – inceleme & düzenleme. RM: Biçimsel analiz, Araştırma, Yazım – inceleme & düzenleme, Metodoloji, Görselleştirme. JK: Veri düzenleme, Fon edinme, Araştırma, Proje yönetimi, Kaynaklar, Doğrulama, Yazım – inceleme & düzenleme. JK-P: Biçimsel analiz, Fon edinme, Araştırma, Metodoloji, Proje yönetimi, Kaynaklar, Doğrulama, Yazım – inceleme & düzenleme. BG: Veri düzenleme, Biçimsel analiz, Araştırma, Doğrulama, Yazım – inceleme & düzenleme. MB: Veri düzenleme, Araştırma, Doğrulama, Yazım – inceleme & düzenleme. JB: Veri düzenleme, Fon edinme, Araştırma, Kaynaklar, Doğrulama, Yazım – inceleme & düzenleme. MH: Veri düzenleme, Biçimsel analiz, Araştırma, Doğrulama, Yazım – inceleme & düzenleme. JL: Veri düzenleme, Araştırma, Doğrulama, Yazım – inceleme & düzenleme. BM: Veri düzenleme, Araştırma, Doğrulama, Yazım – inceleme & düzenleme. MS: Veri düzenleme, Fon edinme, Proje yönetimi, Kaynaklar, Doğrulama, Yazım – inceleme & düzenleme. BT: Veri düzenleme, Araştırma, Kaynaklar, Doğrulama, Yazım – inceleme & düzenleme. MK: Veri düzenleme, Fon edinme, Araştırma, Proje yönetimi, Kaynaklar, Gözetim, Doğrulama, Yazım – inceleme & düzenleme.
Fonlar
Sorumlu yazar(lar), bu çalışma ve/veya yayının finansal destek aldığını beyan etmiştir. Bu araştırma, EEA Grantları (No. EHP-CZ02-OV-1-063-01-2014), Interreg V-A Slovakya Cumhuriyeti – Çek Cumhuriyeti (No. 304021D016) ve Interreg Tuna Ulusalüstü Programı (DTP3-314-2.3 “SaveGREEN”) kapsamında desteklenen birkaç proje çerçevesinde yürütülmüştür.
Teşekkürler
Bu çalışmada veri toplama ve saha çalışmalarına katkı sağlayan “Lynx and Wolf Patrols” (Kurt ve Porsuk Devriyecileri) gönüllülerine, Friends of the Earth Czech Republic’ın Etçilleri Koruma Programı’na, rangers’lara, PLA ve Milli Parklar’ın zoolojistlerine ve işbirliği yapanlara katkılarından dolayı teşekkür ederiz. Ayrıca Çek Cumhuriyeti PLA İdaresi Beskydy Doğa Koruma Ajansı, Slovak Cumhuriyeti State Nature Conservancy PLA İdaresi Kysuce ve PLA İdaresi Strážovské vrchy, Malá Fatra Milli Park İdaresi, Çek Bilimler Akademisi Omurgalılar Biyoloji Enstitüsü, Çek Cumhuriyeti Devlet Orman Şirketi, Frýdek-Místek Orman İdaresi, ilgili avcılık alanları ile yerel ormancılar ve avcılara işbirliği ve proje desteği için müteşekkiriz.
Çıkar çatışması
Yazar(lar), bu çalışmanın ticari veya olası bir çıkar çatışması olarak değerlendirilebilecek herhangi bir ticari ya da finansal ilişki içermediğini beyan etmiştir.
Üretken yapay zeka beyanı
Yazar(lar), bu metnin oluşturulmasında üretken yapay zekanın kullanılmadığını beyan etmiştir.
Bu makaledeki figürlerle birlikte sağlanan alternatif metinler (alt text) Frontiers tarafından yapay zekanın desteğiyle oluşturulmuş olup, mümkün olduğunca yazarların gözden geçirmesini de içeren doğruluk sağlamak için makul çabalar sarf edilmiştir. Herhangi bir sorunu tespit ederseniz, lütfen bizimle iletişime geçin.
Yayıncı notu
Bu makalede ifade edilen tüm iddialar yalnızca yazarların görüşlerini yansıtır ve mutlaka bağlı oldukları kuruluşların, yayıncının, editörlerin veya hakemlerin görüşlerini temsil etmez. Bu makalede değerlendirilen herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
Ekleme materiali
Bu makalenin Ekleme Materiali çevrimiçi olarak şu adreste bulunabilir: https://www.frontiersin.org/articles/10.3389/fevo.2026.1951546/full#supplementary-material
Ekleme Veri Sayfası 1
Pişki ve av artılarının ham veri seti.
Ekleme Veri Sayfası 2
GAMM, GLMM ve Permütasyon testi analizlerinde kullanılan ham veri seti.
Ek Veri Sayfası 3
Av erişilebilirliği ve seçicilik endeksi hesaplaması.
-
Andersen R., Karlsen J., Austmo L. B., Odden J., Linnell J. D. C., Gaillard J.-M. (2007).
Selectivity of eurasian lynx Lynx lynx and recreational hunters for age, sex and body condition in roe deer Capreolus capreolus. Wildl. Biol.13, 467–474. doi: 10.2981/0909-6396(2007)13[467:SOELLL]2.0.CO;2
-
Baudrot V., Perasso A., Fritsch C., Giraudoux P., Raoul F. (2016).
The adaptation of generalist predators’ diet in a multi-prey context: insights from new functional responses. Ecology97, 1832–1841. doi: 10.1890/15-0427.1
-
Belotti E., Červený J., Šustr P., Kreisinger J., Gaibani G., Bufka L. (2013).
Foraging sites of Eurasian lynx Lynx lynx: relative importance of microhabitat and prey occurrence. Wildl. Biol.19, 188–201. doi: 10.2981/12-077
-
Belotti E., Kreisinger J., Romportl D., Heurich M., Bufka L. (2014).
Eurasian lynx hunting red deer: is there an influence of a winter enclosure system? Eur. J. Wildl. Res.60, 441–457. doi: 10.1007/s10344-014-0801-8
-
Belotti E., Weder N., Bufka L., Kaldhusdal A., Küchenhoff H., Seibold H. et al. (2015).
Patterns of lynx predation at the interface between protected areas and multi-use landscapes in Central Europe. PloS One10, e0138139. doi: 10.1371/journal.pone.0138139
-
Bochníček O. Hrušková K. (2015). Slovakya İklim Atlası (Bratislava: Slovak Hidrometeoroloji Enstitüsü, Bratislava), 131.
-
Bonn Lynx Uzman Grubu (2021). Batı ve Orta Avrupa’daki Avrasya Porsuğunun Korunması Önerileri: Almanya’daki Bonn şehrinde 16-19 Haziran 2019 tarihlerinde düzenlenen “Bonn porsuz uzman grubu” çalıştayından sonuçlar. Cat. N. Spec. (14), 78-86.
-
Breitenmoser U. Haller H. (1993). İsviçre Alplerinde yeniden yerleştirilen Avrupa porsuğunun avlanması kalıpları. J. Wildl. Manage. 57, 135-144. doi: 10.2307/3809010
-
Breitenmoser U. Ryser A. Molinari-Jobin A. Zimmermann F. Haller H. Molinari P. ve ark. (2010). “İsviçre’de avcılar ile yeniden yerleştirilen porsuklar arasındaki çatışmanın bir kaynağı olarak avlanmanın değişen etkisi,” in Yabani Kedigillerin Biyolojisi ve Korunması (Oxford: Oxford University Press), 493-506.
-
Buzan E. Potočnik H. Pokorny B. Potušek S. Iacolina L. Gerič U. ve ark. (2024). Dışkılarının moleküler analizi, Dinar Dağları ile Alpler arasındaki temas bölgesindeki gri kurtlar ve Avrasya porsuğunun beslenmesini ve av seçimini ortaya koydu. Front. Zool. 21, 9. doi: 10.1186/s12983-024-00530-6
-
Červený J. Bufka L. (1996). “Güney Bohemya’da porsuk (Lynx lynx),” in Cek ve Slovak Cumhuriyetlerinde porsuk, cilt 30. Eds. Koubek P. Červený J. (Brno: Acta Scientiarum Naturalium Brno), 16-33.
-
Chapron, G., Kaczensky, P., Linnell, J. D. C., Arx, M., Huber, D., Andrén, H. ve ark. (2014). Avrupa’nın modern insan hâkimiyetindeki alanlarında büyük etcillerin geri dönüşü. Science346, 1517–1519. doi: 10.1126/science.1257553
-
De Marinis, A. M., Asprea, A. (2006). Güney Avrupa’dan vahşi ve evcil çift tırnaklıların tüy tanıma anahtarı. Wildl. Biol.12, 305–320. doi: 10.2981/0909-6396(2006)12[305:hikowa]2.0.co;2
-
Duľa, M., Bojda, M., Chabanne, D. B., Drengubiak, P., Hrdý, Ľ., Krojerová-Prokešová, J. ve ark. (2021). Çok mevsimli sistematik kamera tuzakları, yerel alanının batı sınırında Karpatik vaşakların dalgalı yoğunluklarını ve yüksek yenilenme oranlarını ortaya koyuyor. Sci. Rep.11, 9236. doi: 10.1038/s41598-021-88348-8
-
Duľa, M., Krofel, M. (2020). Cennette bir kedi: bol ve tecrübesiz avlar arasında Avrasya vaşaklarının avlanma ve beslenme davranışı. Mamm. Biol.100, 685–690. doi: 10.1007/s42991-020-00070-6
-
Duľa, M., Nicol, C., Bojda, M., Labuda, J., Slamka, M., Kutal, M. (2023). Batı Karpatlarda Avrasya vaşakının avlanma ve beslenme davranışı üzerine ilk bakış. Mammal Res.68, 237–242. doi: 10.1007/s13364-022-00662-2
-
ESRI Inc (2025). Arcgis Pro (Sürüm 3.6) (Redlands, CA: EsRI Inc). Çevrimiçi erişim: https://www.esri.com/en-us/arcgis/products/arcgis-pro/overview (Erişim tarihi: 1 Mart 2025).
-
Gajdárová, B., Belotti, E., Bufka, L., Duľa, M., Cleven, O., Kutal, M., ve diğerleri (2021). Uzun mesafe Avrasya parsı yayılımı: Orta Avrupa’da yerli ve yeniden sokulan popülasyonları birbirine bağlamak için bir fırsat. Conserv. Genet. 22, 799–809. doi: 10.1007/s10592-021-01363-0
-
Gervasi, V., Nilsen, E. B., Odden, J., Bouyer, Y., Linnell, J. D. C. (2014). Çok amaçlı bir peyzajda pars av seçimi. J. Zool. 292, 175–183. doi: 10.1111/jzo.12088
-
Hell, P., Slamečka, J., Gašparík, J. (2004). Rys a Divá Mačka V Slovenských Karpatoch a Vo Svete (Bratislava: PaRPRESS). Slovakca.
-
Huggard, D. J. (1993). Kar derinliğinin gri kurtlar tarafından avlanma ve leşçilik üzerindeki etkisi. J. Wildl. Manage. 57 (2), 382–388. doi: 10.2307/3809437
-
Jędrzejewski, W., Schmidt, K., Miłkowski, L., Jędrzejewska, B., Okarma, H. (1993). Parslar tarafından avlanma ve toynaklıların ölümü üzerindeki rolleri: yerel (Białowieża Ormanı) ve Palearktik bakış açıları. Acta Theriol. 38, 385–403. doi: 10.4098/AT.arch.93-30
-
Jacobs J. (1974). Oecologia14, 413–417. doi: 10.1007/BF00384581
-
Jobin A., Molinari P., Breitenmoser U. (2000). İsviçre Jura Dağları’nda Avrasya tilkisinin av spektrumu, av tercihi ve tüketim oranları. Acta Theriol.45, 243–252. doi: 10.4098/at.arch.00-26
-
Kaczensky P., Ranc N., Hatlauf J., Payne J. C., Acosta-Pankov I., Álvarez F. et al. (2024b). Avrupa’da büyük etçillerin dağılım haritaları 2017 – 2022/23. Dryad. doi: 10.5061/dryad.3xsj3txrc
-
Kaczensky P., Ranc N., Hatlauf J., Payne J. C., Acosta-Pankov I., Drouet-Hoguet N. et al. (2024a). Büyük etçillerin dağılım haritaları ve 2017–2022/23 nüfus güncellemeleri. Avrupa Komisyonu’na N° 09.0201/2023/907799/SER/ENV.D.3 sözleşmesi altında sunulan rapor: “Büyük Etçilerle Birlikte Varoluşa Destek”, “B.4 Dağılım Haritalarının Güncellenmesi”. IUCN/SSC Avrupa’da Büyük Etçiler Girişimi (LCIE) ve Istituto Di Ecologia Applicata (IEA).
- Google Scholar
-
Khorozyan I., Heurich M. (2023). Yayılış alanı boyunca Avrasya tilkisi (Lynx lynx) tarafından avlanma örüntüleri: ekolojik ve koruma açısından sonuçları. Mam. Rev.53, 177–188. doi: 10.1111/mam.12317
-
Krofel M., Flležar U., Černe R., Hočevar L., Konec M., Majić Skrbinšek A. et al. (2025). Disiplinlerarası izleme ve paydaş katılımı, insan baskınlı peyzajda büyük etçilerin yeniden yerleşimine destek oluyor. Ecol. Appl.35, e70052. doi: 10.1002/eap.70052
-
Krofel M, Huber D, Kos I. (2011).
Avrenk Eurasian lynx Lynx lynx in the northern Dinaric Mountains (Slovenia and Croatia) importance of edible dormouse Glis glis as alternative prey. Acta Theriol.56, 315–322. doi: 10.1007/s11284-012-1005-x
-
Krofel M, Skrbinšek T, Kos I. (2013).
Use of GPS location clusters analysis to study predation, feeding, and maternal behavior of the Eurasian lynx. Ecol. Res.28, 103–116. doi: 10.1007/s11284-012-1005-x
-
Krojerová-Prokešová J, Turaková B, Jelenčič M, Bojda M, Kutal M, Skrbinšek T. et al. (2019).
Genetic constraints of population expansion of the Carpathian lynx at the western edge of its native distribution range in Central Europe. Heredity122, 785–799. doi: 10.1038/s41437-018-0167-x
-
Kubala J, Tám B, Machciník B, Belák M, Klinga P, Smolko P. et al. (2020). Monitoring rysa ostrovida (Lynx lynx) v Strážovských vrchoch a jeho význam pre národný a európsky manažment a ochranu druhu. Technická správa (Zvolen:
Technical University).- Google Scholar
-
Kutal M, Belotti E, Volfová J, Mináriková T, Bufka L, Poledník L. et al. (2017).
Occurrence of large carnivores—Lynx lynx, Canis lupus, and Ursus arctos—and of Felis silvestris in the Czech Republic and western Slovakia in 2012–2016 (Carnivora). Lynx. New Ser.48, 93–107. doi: 10.2478/lynx-2017-0006
-
Kutal M, Váňa M, Suchomel J, Chapron G, López-Bao J. V. (2016).
Trans-boundary edge effects in the western carpathians: the influence of hunting on large carnivore occupancy. PloS One11, e0168292. doi: 10.1371/journal.pone.0168292
-
MacArthur R. H., Pianka E. R. (1966). On optimal use of a patchy environment. Am. Nat. 100, 603–609. doi: 10.1086/282454
-
Massey A. L., Roffler G. H., Vermeul T., Allen J. M., Levi T. (2021). Comparison of mechanical sorting and DNA metabarcoding for diet analysis with fresh and degraded wolf scats. Ecosphere 12, e03557. doi: 10.1002/ecs2.3557
-
Mattisson J., Arntsen G. B., Nilsen E. B., Loe L. E., Linnell J. D. C., Odden J. et al. (2014). Lynx predation on semi-domestic reindeer: do age and sex matter? J. Zool. 292, 56–63. doi: 10.1111/jzo.12084
-
McInnes J. C., Alderman R., Deagle B. E., Lea M.-A., Raymond B., Jarman S. N. (2017). Optimised scat collection protocols for dietary DNA metabarcoding in vertebrates. Methods Ecol. Evol. 8, 192–202. doi: 10.1111/2041-210X.12677
-
Mejlgaard T., Loe L. E., Odden J., Linnell J. D. C., Nilsen E. B. (2013). Lynx prey selection for age and sex classes of roe deer varies with season. J. Zool. 289, 222–228. doi: 10.1111/j.1469-7998.2012.00980.x
-
Melovski D., Ivanov G., Stojanov A., Avukatov V., Gonev A., Pavlov A. et al. (2020). First insight into the spatial and foraging ecology of the critically endangered Balkan lynx (Lynx lynx balcanicus, Buresh 1941). Hystrix. Ital. J. Mammal. 31, 26–34. doi: 10.4404/hystrix-00254-2019
-
Melovski,D.Krofel,M.Avukatov,V.Fležar,U.Gonev,A.Hočevar,L. ve ark. (2022).
Balkan vaşarı ile komşu popülasyonlar arasındaki ayrışan ekolojik özellikler: genetik kurtarma planlamasının temeli. Mamm. Biol.102, 1697–1708. doi: 10.1007/s42991-022-00268-w
-
Mikoláš,M.Vysoký,J.TesákJ.,Tejkal,M.Klinga,P.Semelbauer,M. ve ark. (2018a). Kırmızı Türkan Koruma Programı (Tetrao Urogallus Linnaeus, 1758) için 2018–2022 Yılları (Slovakça: Slovak Cumhuriyeti Devlet Doğal Koruma Kurumu, Banská Bystrica), 78.
- Google Scholar
-
Mikoláš,M.Vysoký,J.TesákJ.,Tejkal,M.Klinga,P.Semelbauer,M. ve ark. (2018b). Siyah Türkan Koruma Programı (Tetrao Tetrix Linnaeus, 1758) için 2018–2022 Yılları (Slovakça: Slovak Cumhuriyeti Devlet Doğal Koruma Kurumu, Banská Bystrica), 50.
- Google Scholar
-
Molinari-Jobin,A.Molinari,P.Breitenmoser-Würsten,C.Breitenmoser,U. (2002).
İsviçre Jura Dağları’nda vaşar (Lynx lynx) avlanmasının keçirgen (Capreolus capreolus) ve vaşak (Rupicapra rupicapra) ölüm oranlarındaki önemi. Wildl. Biol.8, 109–115. doi: 10.2981/wlb.2002.015
-
Molinari-Jobin,A.Molinari,P.Loison,A.Gaillard,J.–. M. J. -.-M.Breitenmoser,U. (2004).
Avların yaşam döngüsü dönemi ve aktivitesi, avcılarına karşı savunmasızlıklarını etkiler. Ecography27, 323–329. doi: 10.1111/j.0906-7590.2004.03862.x
-
Molinari-Jobin,A.Zimmermann,F.Ryser,A.Breitenmoser-Würsten,C.Capt,S.Breitenmoser,U. ve ark. (2007).
İsviçre’de Avrasya vaşarının (Lynx lynx) beslenmesi, av seçiciliği ve yurt alanı boyutundaki değişim. Wildl. Biol.13, 393–405. doi: 10.2981/0909-6396(2007)13[393:vidpsa]2.0.co;2
-
Mysłajek R. W., Stachyra P., Figura M., Nowak S. (2021).
Avrenin Avrasya pisi (Lynx lynx)ın beslenme alışkanlıkları: Güneydoğu Polonya. J. Vertebr. Biol.71, 21061–21061. doi: 10.25225/jvb.21061
-
Nagl D., Breitenmoser U., Hackländer K., Ryser A., Zimmermann F., Signer S. ve ark. (2022).
İsviçre’de yeniden yerleştirilen Avrasya pisi (Lynx lynx) popülasyonunda habitat seçimi ve av yelpazesindeki uzun vadeli değişimler. Ecol. Evol.12, e8614. doi: 10.1002/ece3.8614
-
Nilsen E. B., Linnell J. D. C., Odden J., Andersen R. (2009).
İklim, mevsim ve sosyal statü, verimli bir avlanıcı yırtıcının işlevsel tepkisini düzenler: Avrasya pisi. J. Anim. Ecol.78, 741–751. doi: 10.1111/j.1365-2656.2009.01547.x
-
Nowicki P. (1997).
Avrasya pisinin (Lynx lynx) Avrupa’da beslenme alışkanlıkları ve besin. J. Wildl. Res.2, 161–166.- Google Scholar
-
Odden J., Linnell J. D., Andersen R. (2006).
Avrasya pisinin (Lynx lynx) Güneydoğu Norveç’in boreal ormanlarındaki besini: Düşük yaban keçisi yoğunluğunda hayvancılık ve tavşanların göreli önemi. Eur. J. Wildl. Res.52, 237–244. doi: 10.1007/s10344-006-0052-4
-
Odden J., Linnell J. D., Moa P. F., Herfindal I., Kvam T., Andersen R. (2002).
Norveç’te aslan kemikleri ev koyunlarına yönelik avcılık. J. Wildl. Manage.66 (1), 98–105. doi: 10.2307/3802876
-
Okarma H. (1984).
Karpat Dağları’nda kurt ve pisi tarafından avlanan ve avlanan kızıl geyiklerin fiziksel durumu. Acta Theriol.29, 283–290. doi: 10.4098/at.arch.84-28
-
Okarma, H., Jedrzejewski, W., Schmidt, K., Kowalczyk, R., Jedrzejewska, B. (1997).
Avrupa tilkisinin Białowieża İlkel Ormanındaki pusu ve kuyruksuz geyik avcılığı. Acta Theriol.42, 203–224. doi: 10.4098/at.arch.97-22
-
Oliveira, T., Mattisson, J., Vogt, K., Linnell, J., Odden, J., Oeser, J., ve ark. (2025).
Kıtasal ölçekte Avrupa tilkisinin avlanma parametrelerinin ekolojik ve içsel belirleyicileri. J. Anim. Ecol.94, 154–167. doi: 10.1111/1365-2656.14228
-
Pekar, S., Brabec, M. (2019). Biyojik Verilerin Modern Analizi. Cilt 3, R Ortamında Doğrusal Olmayan Modeller (Brno, Çince: Masaryk Üniversitesi Yayınları).
- Google Scholar
-
Plhal, R., Kamler, J. (2012).
Çekya’da av planının doğruluğunun analizi. Acta Univ. Agric. Silvic. Mendelianae. Brun.LX, 165–172. doi: 10.11118/actaun201260030165
-
Pulliainen, E., Lindgren, E., Tunkkari, P. S. (1995).
Besin erişilebilirliği ve üreme durumunun Finlya’daki Avrupa tilkisinin beslenmesi ve beden koşulu üzerindeki etkileri. Acta Theriol.40, 181–196. doi: 10.4098/at.arch.95-19
-
R Core Team (2022). R: İstatistiksel Hesaplama için Dil ve Ortam. Sürüm 4.2.2. (Vienna: İstatistiksel Hesaplama Vakfı)
- Google Scholar
-
R Core Team (2025). R: İstatistiksel Hesaplama için Dil ve Ortam. Sürüm 4.5.1. (Vienna: İstatistiksel Hesaplama Vakfı)
- Google Scholar
-
Ripple W. J., Estes J. A., Beschta R. L., Wilmers C. C., Ritchie E. G., Hebblewhite M. ve ark. (2014). Dünyanın en büyük etçillerinin durumu ve ekolojik etkileri. Science343, 1241484. doi: 10.1126/science.1241484
-
Rühe F., Ksinsik M., Kiffner C. (2008). Etçilerde dışkı analizinde dönüşüm faktörleri: yanlılık kaynakları. Wildl. Biol.14, 500–506. doi: 10.2981/0909-6396-14.4.500
-
Sidorovich V. E. (2006). Kuzey Belarus’ta av erişilebilirliği ile Avrasya porsuğunun popülasyon dinamiği ve beslenmesi arasındaki ilişki. Acta Theriol.51, 265–274. doi: 10.1007/bf03192678
-
Ståhlberg S., Bassi E., Viviani V., Apollonio M. (2017). Kuzey ve Güney Avrupa kurtlarının (Canis lupus) av seçiminin nicelendirilmesi. Mamm. Biol.83, 34–43. doi: 10.1016/j.mambio.2016.11.001
-
Stephens D. W., Krebs J. R. (1986). Beslenme Kuramı Cilt 6 (Princeton, NJ: Princeton University Press).
- Google Scholar
-
Sunde P., Kvam T. (1997). Avrasya porsuğu Lynx lynx’in beslenme örüntüleri: cinsiyete bağlı av boyutu ayrışmasını ne oluşturuyor? Acta Theriol.42, 189–201. doi: 10.4098/at.arch.97-21
-
Sunde P., Kvam T., Bolstad J. P., Bronndal M. (2000). Yönetilen boreal-alpin ortamda porsukların beslenmesi. Ecography23, 291–298. doi: 10.1034/j.1600-0587.2000.d01-1637.x
-
Teerink B. J. (1991). Batı Avrupa Memelilerinin Tüyleri: Atlas ve Tanıma Anahtarı (Cambridge University Press).
- Google Scholar
-
Terborgh J. Estes J. A. (2013). Trophic Cascades: Predators, Prey, and the Changing Dynamics of Nature (Washington, DC: Island Press).
- Google Scholar
-
Tolasz R. Brázdil R. Bulíř O. Dobrovolný P. Dubrovský M. Hájková L. et al. (2007). Altas Podnebí Česka (Český hydrometeorologický ústav, Universita Palackého). Çekçe.
- Google Scholar
-
Tóth M. (2017). Hair and Fur Atlas of Central European Mammals (Prague and Olomouc: Nagykovácsi, Hungary: Pars Limited).
- Google Scholar
-
Treves A. Karanth K. U. (2003). Human-carnivore conflict and perspectives on carnivore management worldwide. Conserv. Biol. 17, 1491–1499. doi: 10.1111/j.1523-1739.2003.00059.x
-
Valdmann H. Andersone-Lilley Z. Koppa O. Ozolins J. Bagrade G. (2005). Winter diets of wolf Canis lupus and lynx Lynx lynx in Estonia and Latvia. Acta Theriol. 50, 521–527. doi: 10.1007/BF03192645
-
Vogt K. Vimercati E. Ryser A. Hofer E. Signer S. Signer C. et al. (2018). Suitability of GPS telemetry for studying the predation of Eurasian lynx on small-and medium-sized prey animals in the Northwestern Swiss Alps. Eur. J. Wildl. Res. 64, 73. doi: 10.1007/s10344-018-1225-7
-
Wood S. N. (2017). Generalized Additive Models: An Introduction With R, Second Edition (2nd Ed.) (Boca Raton, FL: Chapman and Hall/CRC). doi: 10.1201/9781315370279
Özet
Anahtar Kelimeler
diyet, GPS telemetrisi, Lynx lynx, av seçimi, dışkı analizleri, Batı Karpatlar
Başvuru
Duľa M, Michalko R, Kubala J, Krojerová-Prokešová J, Gajdárová B, Bojda M, Bučko J, Homolka M, Labuda J, Machciník B, Slamka M, Tám B ve Kutal M (2026) Farklı av toplulukları boyunca yaygınlaşan ömür: Orman Yaylası’nda Avrasya aslanının diyeti ve av seçimi. Front. Ecol. Evol. 14:1951546. doi: 10.3389/fevo.2026.1951546
Başvuru tarihi
28 Temmuz 2026
Düzeltme tarihi
16 Ekim 2026
Kabul tarihi
16 Ekim 2026
Yayınlanma tarihi
10 Kasım 2026
Cilt
14 – 2026
Dennis Murray, Trent University, Kanada
Dominik Werner Melville, University of Ulm, Almanya
Stefano Palmero, Bavyera Ormanı Milli Parkı, Almanya
© 2026 Duľa, Michalko, Kubala, Krojerová-Prokešová, Gajdárová, Bojda, Bučko, Homolka, Labuda, Machciník, Slamka, Tám ve Kutal.
Bu açık erişimli makale, Creative Commons Atıf Lisansı (CC BY) koşulları altında dağıtılmıştır. Orijinal yazar(lar)ın ve telif hakkı sahibinin(lerin) atıf edilmesi ve kabul edilen akademik uygulamalar doğrultusunda bu dergideki orijinal yayının kaynak gösterilmesi şartıyla, diğer forumlarda kullanım, dağıtım veya çoğaltma izinlidir. Bu koşullara uymayan herhangi bir kullanım, dağıtım veya çoğaltma izinlidir.
*İletişim: M. Duľa, martin.dula@mendelu.cz
†ORCID: M. Duľa, orcid.org/0000-0003-2675-4575; R. Michalko, orcid.org/0000-0003-0831-0823; J. Kubala, orcid.org/0000-0003-2051-508X; J. Krojerová-Prokešová, orcid.org/0000-0002-0067-6196; B. Gajdárová, orcid.org/0000-0002-6912-0284; J. Bučko, orcid.org/0000-0002-0916-6379; M. Homolka, orcid.org/0000-0001-9650-1288; M. Slamka, orcid.org/0009-0004-6571-8985; B. Tám, orcid.org/0009-0000-8135-7666; M. Kutal, orcid.org/0000-0003-3857-5419
Bu makalede ifade edilen tüm görüşler yalnızca yazarların görüşüdür ve bağlı oldukları kuruluşların, yayıncının, editörlerin veya hakemlerin görüşlerini zorunlu olarak yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.